来源:Experimental and model-based analysis of H2/CO2 mixotrophic lactate metabolism reveals thermodynamic constraints on carbon efficiency in Clostridium luticellarii(Chemical Engineering Journal)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
乳酸基链延长是实现废弃物增值的重要平台,但常受限于氧化还原瓶颈和对乙酸补加的需求。本研究以产乙酸菌Clostridium luticellarii为对象,通过实验与基因组尺度代谢模型相结合的手段,系统考察了H₂/CO₂混合营养共进料对乳酸代谢的影响。结果表明,提高H₂分压可加速菌体生长和乳酸利用速率,同时降低净CO₂产量;H₂/CO₂共进料还能在无外源乙酸添加时恢复生长。约束模型揭示,Wood–Ljungdahl通量是满足氧化还原与产物形成约束的必要条件,模型预测的内部乙酸需求(约81.7 mM)与实验外源供给量(100 mM)相近。
研究背景
从可再生原料可持续生产化学品和燃料,是缓解气候变化、减少化石资源依赖的重要方向。然而,传统基于糖的微生物发酵因原料和加工成本高昂,在经济上难以与石化工艺竞争。此外,有机底物(尤其是糖类)在转化为乙酰辅酶A的过程中,相当一部分碳以CO₂形式流失。乙酰辅酶A是微生物发酵生产化学品和生物燃料的关键代谢中间体。异养过程如非氧化糖酵解可将糖转化为乙酰辅酶A,但其高效生产受限于ATP生成和还原当量(NADPH)的供给,需产生CO₂,从而损失三分之一的碳。
厌氧非光合混合营养为解决这一局限提供了有前景的方案——微生物可同时利用有机底物(如糖、甲醇或乳酸)与无机底物(包括CO₂、CO和H₂)。通过将碳固定与异养代谢整合,混合营养过程可提高碳效率并增强产物得率。在此背景下,产乙酸菌因其独特的Wood–Ljungdahl途径(WLP)而备受关注。C. luticellarii既能以乳酸为底物生长,也能以H₂/CO₂为底物生长,但H₂/CO₂共进料在其乳酸代谢中的角色尚不清楚。
研究方法
2.1 接种物与培养基制备
Clostridium luticellarii购自德国微生物与细胞培养物保藏中心(DSMZ,德国)。菌株通过在以强化梭菌培养基(RCM)中、37 °C、pH 7.2条件下培养进行活化,方法参照[13]所述。菌株在以基础培养基(含200 mM甲醇和40 mM NaHCO₃作为碳源)、pH 6.5、10% v/v接种比例条件下进行传代培养,之后再转移至乳酸基培养基。为检查污染,每次传代培养时同步设置未接种对照,并定期通过16S rRNA基因的Sanger测序确认培养物纯度。
基础培养基每升组成包括:0.36 g NH₄H₂PO₄、0.133 g CaCl₂、0.325 g MgCl₂·6H₂O、0.197 g MgSO₄·7H₂O、0.149 g KCl、19.524 g 2-(N-吗啉代)乙磺酸(MES)缓冲液、0.001 g刃天青。培养基在1 L Duran Schott瓶中配制,用N₂吹扫30 min,在N₂气氛下分装至250 mL血清瓶中,工作体积100 mL。瓶顶空间用N₂/CO₂(90/10 v/v%)冲洗至少15 min,加压至150 kPa后灭菌。接种前,从厌氧过滤灭菌的储备液中添加以下额外组分:维生素和微量元素(表S1、S2和S3)、30 mM NaHCO₃、200 mM甲醇、7 mM胰蛋白胨和0.4 mM柠檬酸钛(III)。检查培养基pH并通过添加无菌NaOH和/或HCl调节至6.5。
【数据】菌株:Clostridium luticellarii(DSMZ);活化温度:37°C;活化pH:7.2;传代pH:6.5;接种比例:10% v/v;传代碳源:200 mM甲醇 + 40 mM NaHCO₃;MES缓冲液:19.524 g/L;刃天青:0.001 g/L;N₂吹扫时间:30 min;顶空冲洗:N₂/CO₂(90/10 v/v%)≥15 min;顶空压力:150 kPa;工作体积:100 mL;NaHCO₃:30 mM;胰蛋白胨:7 mM;柠檬酸钛(III):0.4 mM;pH调节:6.5
2.2 C. luticellarii在乳酸与H₂/CO₂顶空条件下的生长
为评估C. luticellarii在乳酸与H₂/CO₂组合条件下的生长,培养物在含200 mM乳酸和100 mM乙酸的基础培养基中,于两种不同条件下培养:(i) N₂/CO₂(80/20 v/v%)顶空;(ii) H₂/CO₂(80/20 v/v%)顶空。为获得基线,还设置了第三种自养条件,即H₂(80 v/v%)和CO₂(20 v/v%)。基础培养基按上一节所述制备,并按各自浓度添加乳酸和乙酸。
实验在1 L Duran pressure plus Schott瓶中进行,工作体积100 mL。顶空组成通过使用各自独立的质量流量控制器(Bronkhorst EL-Flow Select,荷兰)混合气体实现。灭菌后,H₂/CO₂顶空条件经过额外步骤,用过滤灭菌的H₂/CO₂冲洗并加压至150 kPa。接种前,从厌氧过滤灭菌的储备液中添加维生素和微量元素、30 mM NaHCO₃、7 mM胰蛋白胨和0.4 mM柠檬酸钛(III),并使用无菌2 M NaOH和/或2 M HCl将pH调至6.5。所有条件均设三个平行,瓶子在37 °C下静态水平孵育。
顶空压力在接种后立即以及每个时间点取样前后使用张力计(GMH 3111配备603,310 MSD 2.5 BAE传感器,Greisinger)和针头测量。取5 mL气体样品立即进行气相色谱分析,取2 mL液体样品立即进行光密度(OD)、pH和高效液相色谱(HPLC)分析。
【数据】乳酸:200 mM;乙酸:100 mM;顶空条件:(i) N₂/CO₂(80/20 v/v%),(ii) H₂/CO₂(80/20 v/v%),(iii) 自养H₂/CO₂(80/20 v/v%);工作体积:100 mL;顶空加压:150 kPa;NaHCO₃:30 mM;胰蛋白胨:7 mM;柠檬酸钛(III):0.4 mM;pH:6.5;温度:37°C;平行数:n=3;气体样品:5 mL;液体样品:2 mL
2.3 不同H₂分压对生长和乳酸利用的影响
为进一步探究H₂可用性如何影响生长和乳酸利用,菌株在200 mM乳酸和100 mM乙酸条件下,于两组不同实验中的一系列H₂分压(PH₂)下培养。在第一组实验中,在固定总压150 kPa下测试不同H₂比例(20%、40%、60%和80%),CO₂保持20%,N₂作为平衡气。该策略产生以下氢分压(PH₂):(i) 30 kPa,(ii) 60 kPa,(iii) 90 kPa,(iv) 120 kPa。
在第二组实验中,H₂/CO₂以固定比例80/20 v/v%在不同总顶空压力(100 kPa、125 kPa、150 kPa和200 kPa)下供给。这对应以下PH₂:(i) 80 kPa,(ii) 100 kPa,(iii) 120 kPa,(iv) 160 kPa。需要指出的是,在实验组2中,保持H₂/CO₂比例固定为80/20 v/v%而改变总顶空压力,导致H₂和CO₂分压同时成比例增加——PH₂从80增至160 kPa,PCO₂从20增至40 kPa。该实验设计未能完全解耦H₂和CO₂分压对C. luticellarii代谢的独立效应。H₂分压的独立效应在实验组1中评估,其中CO₂分压固定为30 kPa(150 kPa总压下的20% v/v),而H₂比例变化,从而在恒定PCO₂下实现H₂可用性的直接剂量-响应表征。
N₂/CO₂(80/20 v/v%)顶空、总顶空压力150 kPa的对照条件产生PCO₂ = 30 kPa和PH₂ = 0 kPa,该条件下N₂替代H₂作为平衡气,其他所有实验参数相同,在图3和图4中称为0 kPa条件。本研究测试的所有实验条件(包括顶空组成、总压力、H₂和CO₂分压以及底物浓度)的完整概览见补充材料表S4。
基础培养基按2.1节所述制备,添加200 mM乳酸和100 mM乙酸。实验在1 L Duran pressure plus Schott瓶中进行,工作体积100 mL。灭菌后,所有含H₂的条件通过混合过滤灭菌气体(H₂、CO₂和N₂)冲洗以达到所需组成,随后按相应条件加压。其余步骤与2.2节所述相同。
【数据】乳酸:200 mM;乙酸:100 mM;实验组1:总压150 kPa,H₂比例20/40/60/80%,CO₂ 20%,N₂平衡,PH₂ = 30/60/90/120 kPa;实验组2:H₂/CO₂固定80/20 v/v%,总压100/125/150/200 kPa,PH₂ = 80/100/120/160 kPa,PCO₂ = 20/25/30/40 kPa;对照:N₂/CO₂(80/20 v/v%),总压150 kPa,PCO₂ = 30 kPa,PH₂ = 0 kPa;工作体积:100 mL
2.4 无乙酸添加条件下乳酸与H₂/CO₂的生长评估
为评估初始培养基中无乙酸对生长和乳酸代谢的影响,菌株在200 mM乳酸条件下于以下两种气氛中培养:(i) N₂/CO₂(80/20 v/v%),(ii) H₂/CO₂(80/20 v/v%)。基础培养基按2.1节所述制备,添加200 mM乳酸。其余制备和取样步骤与2.2节所述相同。
【数据】乳酸:200 mM;无外源乙酸添加;顶空条件:(i) N₂/CO₂(80/20 v/v%),(ii) H₂/CO₂(80/20 v/v%)
2.5 代谢建模
#### 2.5.1 不同H₂分压下的约束基建模
用于模型约束推导的实验数据集来自本研究2.3节所述实验测试条件(PH₂ 0、80、100、120和160 kPa),其中H₂/CO₂与乳酸和乙酸在不同分压下一起供给。具体而言,实验推导的底物摄取、代谢物产生和生物量相关生长速率被转化为交换通量约束(mmol gDW⁻¹ h⁻¹),而通过WLP、RNF复合体、ATP合酶和氢化酶反应的内部通量通过优化和通量采样推断。约束基模拟使用iSJ444基因组尺度代谢模型(GEM)进行,该模型包括中心碳代谢、Wood–Ljungdahl途径(WLP)、铁氧还蛋白依赖性氢化酶、RNF复合体和ATP合酶(ATPS4r)。模拟使用COBRApy通过optlang兼容求解器进行线性优化[27]。实施了氢筛选框架,其中绝对H₂摄取(|H₂|)逐步增加以反映实验测试条件。使用简约通量平衡分析(pFBA)计算最优通量分布,在最优目标的99.9%处进行通量变异性分析(FVA)以评估可行范围。使用COBRApy中的optGpSampler进行随机通量采样。每个条件在稀释后生成10³–10⁴个通量样本。
【数据】模型:iSJ444 GEM;约束条件:PH₂ 0、80、100、120、160 kPa;通量单位:mmol gDW⁻¹ h⁻¹;pFBA目标:最优目标99.9%;通量采样:10³–10⁴个样本/条件;软件:COBRApy + optGpSampler
研究结果
结果围绕三个机制性问题组织:(i) H₂/CO₂可用性如何影响C. luticellarii的乳酸代谢和碳效率,包括H₂分压与代谢性能之间的定量关系;(ii) H₂驱动的WLP活性是否能减轻对外源乙酸的需求并影响产物分布;(iii) 胞内通量重分布和能量保守机制如何解释观察到的H₂依赖性代谢响应。3.1和3.2节讨论H₂可用性的生理和碳平衡效应,3.3节考察乙酸依赖性在乳酸氧化中的作用,3.4–3.5节使用约束基建模研究底层代谢机制。
3.1 H₂/CO₂支持的混合营养代谢增强乳酸利用和CO₂再同化
为确定C. luticellarii能否同时在乳酸和H₂/CO₂上混合营养生长,并量化H₂/CO₂共进料对乳酸利用、生长速率和碳效率的影响,菌株在乳酸(200 mM)和乙酸(100 mM)条件下,于N₂/CO₂(80/20 v/v%)或H₂/CO₂(80/20 v/v%)顶空中培养。为获得参考基线,还设置了第三种条件,即仅以H₂/CO₂(80/20 v/v%)培养而不添加乳酸或乙酸。
在N₂/CO₂顶空下,C. luticellarii在21天孵育后达到最大OD 0.30 ± 0.05,生长速率为0.010 ± 0.007 h⁻¹(图2A)。同期,菌株以2.18 ± 1.17 mmol gDW⁻¹ h⁻¹的速率消耗189 ± 24 mM乳酸,产生乙酸、丁酸和异丁酸,终浓度分别为37.89 ± 6.05、46.37 ± 5.58和41.54 ± 4.08 mM(图2D)。N₂/CO₂条件的气体测量显示实验结束时净产生125.58 ± 21.64 mM CO₂。
与N₂/CO₂顶空条件相比,H₂/CO₂与乳酸和乙酸共存时,生长速率加快(0.034 ± 0.16 h⁻¹),仅在7天内达到最大OD 0.50 ± 0.04(图2A),伴随乳酸以5.08 ± 0.65 mmol gDW⁻¹ h⁻¹的速率完全消耗,此后在剩余孵育期内OD逐渐下降。菌株消耗207 ± 3 mM乳酸和200 ± 8 mM H₂,产生乙酸、丁酸和异丁酸,终浓度分别达105.58 ± 13.09、40.88 ± 0.25和50.76 ± 1.57 mM(图2C)。气体测量显示,21天内总共消耗200.05 ± 7.54 mM H₂,其中82.72 ± 17.70 mM H₂在孵育前7天与乳酸同时消耗。
这些结果表明,H₂存在时乳酸消耗速率(5.08 ± 0.65 mmol gDW⁻¹ h⁻¹)比顶空中无H₂时(2.18 ± 1.17 mmol gDW⁻¹ h⁻¹)高约2倍,证明C. luticellarii能以混合营养方式同时消耗这些底物。碳和电子平衡揭示,H₂存在时净CO₂产量降低,仅产生25 ± 10 mM CO₂(图2E和2F)。CO₂产量降低对应H₂/CO₂下每摩尔乳酸消耗产生0.2 mol CO₂,而N₂/CO₂对照为每摩尔乳酸消耗产生0.63 mol CO₂。产生的C2当量与消耗乳酸的摩尔比从N₂/CO₂下的1.15 ± 0.036增加到H₂/CO₂下的1.28 ± 0.035(表S5),与混合营养生长期间WLP介导的CO₂同化带来的额外碳掺入一致。
在参考条件中,C. luticellarii在H₂ + CO₂(80 + 20 v/v%)上自养生长,达到最大OD 0.15 ± 0.010(图2A),产生乙酸作为唯一产物,终浓度为85.8 ± 4.07 mM(图2B)。气体测量显示净消耗247.80 ± 30.12 mM H₂和78.93 ± 10.10 mM CO₂。
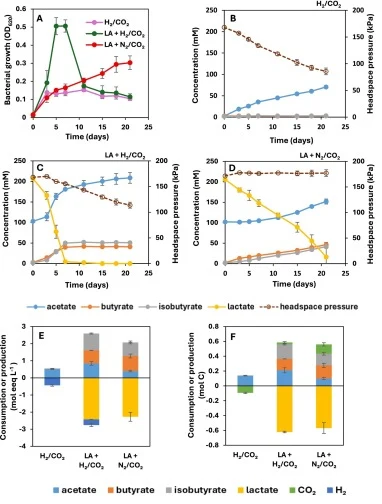
【数据】N₂/CO₂条件:最大OD 0.30 ± 0.05,生长速率0.010 ± 0.007 h⁻¹,21天,乳酸消耗189 ± 24 mM,速率2.18 ± 1.17 mmol gDW⁻¹ h⁻¹,乙酸37.89 ± 6.05 mM,丁酸46.37 ± 5.58 mM,异丁酸41.54 ± 4.08 mM,净CO₂ 125.58 ± 21.64 mM;H₂/CO₂条件:生长速率0.034 ± 0.16 h⁻¹,最大OD 0.50 ± 0.04,7天,乳酸消耗207 ± 3 mM,速率5.08 ± 0.65 mmol gDW⁻¹ h⁻¹,H₂消耗200 ± 8 mM(21天总计200.05 ± 7.54 mM,前7天82.72 ± 17.70 mM),乙酸105.58 ± 13.09 mM,丁酸40.88 ± 0.25 mM,异丁酸50.76 ± 1.57 mM,净CO₂ 25 ± 10 mM;CO₂/乳酸:H₂/CO₂下0.2 mol/mol vs N₂/CO₂下0.63 mol/mol;C2/乳酸比:1.15 ± 0.036(N₂/CO₂)vs 1.28 ± 0.035(H₂/CO₂);自养条件:最大OD 0.15 ± 0.010,乙酸85.8 ± 4.07 mM,H₂消耗247.80 ± 30.12 mM,CO₂消耗78.93 ± 10.10 mM
3.2 不同H₂分压对C. luticellarii生长和乳酸代谢的影响
为量化对递增H₂分压的剂量依赖性代谢响应,并确定额外H₂供给产生递减回报的操作阈值,培养物在乳酸(200 mM)和乙酸(100 mM)条件下于一系列H₂分压(PH₂)下生长。使用两种实验策略:(i) 固定总顶空压力(150 kPa)下改变H₂比例,对应PH₂ 30、60、90、120 kPa条件;(ii) 保持H₂/CO₂固定为80/20 v/v%而改变总顶空压力,对应PH₂ 80、100、120、160 kPa条件。两组实验中均包含N₂/CO₂(80/20 v/v%)顶空对照,对应图3和图4中的0 kPa(PH₂: 0 kPa)条件。
在两组实验中,C. luticellarii在N₂/CO₂顶空下均表现出最慢生长和最低乳酸消耗。实验组1中培养物达到终OD 0.35 ± 0.038(图3A和4A),实验组2中为0.22 ± 0.021,分别仅消耗103 ± 7和46 ± 8 mM乳酸。对应的比生长速率约为0.020 h⁻¹和0.024 h⁻¹,乳酸消耗速率约为3.68和1.95 mmol gDW⁻¹ h⁻¹。尽管两组实验中对照条件设置相同,但绝对生长和乳酸消耗速率不能直接比较。这些差异可归因于每组实验所用起始培养物活性或OD水平的轻微差异。因此,绝对值应在各实验内部比较,而非跨实验比较。
H₂与乳酸共存时,在所有测试的H₂分压下,生长和乳酸利用均比各自无H₂对照更快。在实验组1中,当PH₂从30增至120 kPa时,生长和乳酸消耗均逐步增加。6天后,最低PH₂(30 kPa)和最高PH₂(120 kPa)下培养物OD分别达到0.49 ± 0.04(μ ≈ 0.029 h⁻¹)和0.64 ± 0.03(μ ≈ 0.038 h⁻¹)(图3A),分别消耗166 ± 17 mM和206 ± 3 mM乳酸。与N₂/CO₂对照条件(约3.68 mmol gDW⁻¹ h⁻¹)相比,最低和最高PH₂下乳酸消耗速率分别高约1.3倍(约4.93 mmol gDW⁻¹ h⁻¹)和约2倍(约7.81 mmol gDW⁻¹ h⁻¹)。值得注意的是,90和120 kPa PH₂条件下的生长和乳酸消耗速率几乎相同,表明在固定总压150 kPa下,最大比H₂消耗速率在PH₂ ≥ 90 kPa时已接近,超过此值额外H₂供给不再转化为成比例的代谢改善(图3D)。
在实验组2中,增加总压(对应PH₂从80增至160 kPa)同样导致生长和乳酸消耗相比无H₂参考条件改善。最低PH₂ 80 kPa下培养物OD为0.30 ± 0.01,最高PH₂ 160 kPa下增至0.47 ± 0.03,分别对应生长速率约0.040至约0.044 h⁻¹(图4A)。乳酸消耗从117 ± 2 mM增至160 ± 10 mM(图4D)。这与乳酸消耗速率相比无H₂参考条件(约1.95 mmol gDW⁻¹ h⁻¹)分别增加约2.5倍(约4.87 mmol gDW⁻¹ h⁻¹)至约3.4倍(约6.71 mmol gDW⁻¹ h⁻¹)相关。当每组实验与其自身N₂/CO₂对照评估时,H₂的存在一致导致生长和乳酸消耗速率加快,确认了H₂跨实验的刺激效应。所有条件下的产物谱一致包含乙酸、丁酸和异丁酸。在N₂/CO₂条件下,基于电子的乙酸选择性……
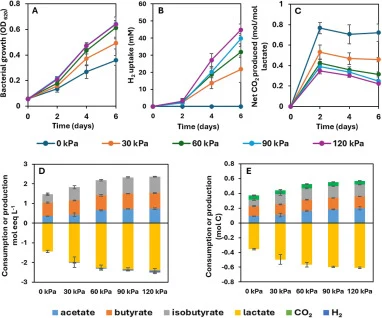
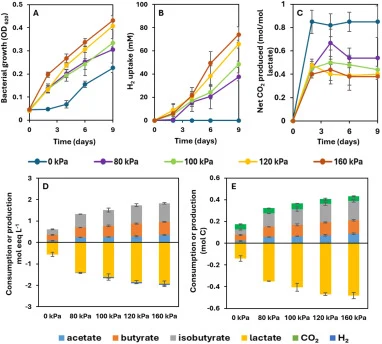
【数据】实验组1对照(0 kPa):终OD 0.35 ± 0.038,乳酸消耗103 ± 7 mM,生长速率约0.020 h⁻¹,乳酸消耗速率约3.68 mmol gDW⁻¹ h⁻¹;实验组2对照(0 kPa):终OD 0.22 ± 0.021,乳酸消耗46 ± 8 mM,生长速率约0.024 h⁻¹,乳酸消耗速率约1.95 mmol gDW⁻¹ h⁻¹;实验组1 PH₂ 30 kPa:OD 0.49 ± 0.04,μ ≈ 0.029 h⁻¹,乳酸消耗166 ± 17 mM,速率约4.93 mmol gDW⁻¹ h⁻¹(约1.3倍);PH₂ 120 kPa:OD 0.64 ± 0.03,μ ≈ 0.038 h⁻¹,乳酸消耗206 ± 3 mM,速率约7.81 mmol gDW⁻¹ h⁻¹(约2倍);实验组2 PH₂ 80 kPa:OD 0.30 ± 0.01,μ ≈ 0.040 h⁻¹,乳酸消耗117 ± 2 mM,速率约4.87 mmol gDW⁻¹ h⁻¹(约2.5倍);PH₂ 160 kPa:OD 0.47 ± 0.03,μ ≈ 0.044 h⁻¹,乳酸消耗160 ± 10 mM,速率约6.71 mmol gDW⁻¹ h⁻¹(约3.4倍);阈值:PH₂ ≥ 90 kPa(实验组1)
讨论与解读
4.1 H₂可用性通过偶联乳酸代谢与产乙酸作用加速生长和乳酸氧化
结果表明,Clostridium luticellarii能同时消耗乳酸和H₂,且H₂可用性增强了细菌生长和乳酸利用。在N₂/CO₂下,C. luticellarii表现出缓慢生长(约0.010–0.024 h⁻¹)和低乳酸利用速率(约1.95–3.68 mmol gDW⁻¹ h⁻¹)。乳酸转化为乙酸、丁酸和异丁酸,同时净产生CO₂,这与经典乳酸基链延长一致——乳酸氧化提供电子和能量,但受氧化还原平衡约束[15,29]。N₂/CO₂下跨实验观察到的净CO₂产量(0.63–0.85 mol CO₂/mol乳酸)反映了C. luticellarii特有的化学计量电子分配:通过RBO同时产生丁酸和异丁酸消耗了乳酸氧化期间大部分可用电子当量,仅剩一小部分可用于WLP介导的CO₂再同化[22,23]。这使C. luticellarii区别于以乙酸为唯一产物、能实现完全CO₂固定的产乙酸菌如Acetobacterium woodii,因为乳酸氧化的所有电子均可用于WLP[21,22]。该化学计量约束的机制基础及其定量意义在4.2.1节讨论。
在H₂/CO₂下,生长速率提高(约0.034–0.044 h⁻¹),乳酸……
编译者解读
本研究将实验生理学与约束基建模紧密结合,清晰揭示了H₂/CO₂混合营养对乳酸代谢的热力学约束本质。方法上的亮点在于通过两组独立实验设计部分解耦了H₂与CO₂分压效应,并利用pFBA/FVA/通量采样量化了WLP、RNF和ATP合酶的通量重分布。然而,实验组2中H₂与CO₂分压的同步增加限制了因果推断的精度。从应用角度看,该工作为产乙酸菌混合营养发酵的碳效率优化提供了可量化的操作窗口——PH₂ ≥ 90 kPa时边际收益递减,这对工业气体供给策略具有直接参考价值。
参考来源
期刊:Chemical Engineering Journal, 2026
DOI: 10.1016/j.cej.2026.179806
DOI: 10.1016/j.cej.2026.179806