来源:A 6His-2Flag dual-tag strategy enables high-yield production of antimicrobial peptide N6 in Pichia pastoris to combat multidrug-resistant Klebsiella pneumonia(Synthetic and Systems Biotechnology)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
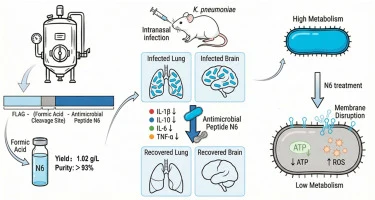
多重耐药肺炎克雷伯菌(Klebsiella pneumoniae)的全球蔓延对临床治疗构成严峻威胁。本研究在毕赤酵母X-33中建立了一种高效的抗菌肽N6异源表达系统。研究者采用创新的6His-2Flag双标签融合策略,结合甲酸介导的切割工艺,实现了N6的高产——最终产量达1.02 g/L,显著超越既往报道,达到规模化工业生产阈值。表达产物N6对临床分离肺炎克雷伯菌株表现出强效广谱抗菌活性(MIC 2–8 μg/mL),通过膜破坏、代谢干扰和氧化应激诱导的多模式机制发挥快速杀菌和生物膜清除作用。在小鼠全身感染模型中,N6治疗将小鼠存活率提升至70%,并降低了关键器官中的细菌负荷。
研究背景
多重耐药细菌感染已成为紧迫的全球公共卫生危机。肺炎克雷伯菌是一种临床常见的革兰阴性机会致病菌,可通过生物膜形成、外排泵上调及耐药基因水平转移等多种机制获得耐药性。尤其令人担忧的是碳青霉烯耐药高毒力肺炎克雷伯菌(CR-HVKP)的出现,其整合了“难治性耐药”与“高致病性”,给临床治疗带来巨大挑战。因此,亟需开发新型替代抗菌策略。
抗菌肽(AMPs)因其快速杀菌活性、广谱抗菌性和低耐药诱导倾向,成为极具前景的治疗候选分子。海洋无脊椎动物来源的抗菌肽因长期适应复杂极端的海洋环境,展现出显著的结构多样性和功能特异性。例如,源自海洋无脊椎动物沙蚕(Arenicola marina)的arenicin-3变体NZ17074对革兰阴性菌具有强效抗菌活性,但其对宿主细胞的固有细胞毒性阻碍了高效的微生物表达。为解决这一问题,研究者开发了N6——通过将第3位和第20位半胱氨酸残基替换为丙氨酸而生成的衍生物。
研究方法
2.1 菌株与细胞系
菌株:9株临床分离肺炎克雷伯菌(76、77、111、113、K11、S469、YB43、YB47、JB22)由宁波市疾病预防控制中心提供;金黄色葡萄球菌ATCC 43300、表皮葡萄球菌ATCC 12228、无乳链球菌ATCC 13813和鼠伤寒沙门菌ATCC 14028购自美国典型培养物保藏中心(ATCC);金黄色葡萄球菌CVCC 546和鸡白痢沙门菌CVCC 1802来源于中国兽医微生物菌种保藏管理中心(CVCC);白色念珠菌CICC 98001购自中国工业微生物菌种保藏管理中心(CICC);毕赤酵母X-33购自Invitrogen(北京,中国)。人正常支气管上皮细胞(BEAS-2B)由宁波大学王晓博士惠赠。
【数据】菌株:肺炎克雷伯菌临床分离株9株(76、77、111、113、K11、S469、YB43、YB47、JB22);金黄色葡萄球菌ATCC 43300;表皮葡萄球菌ATCC 12228;无乳链球菌ATCC 13813;鼠伤寒沙门菌ATCC 14028;金黄色葡萄球菌CVCC 546;鸡白痢沙门菌CVCC 1802;白色念珠菌CICC 98001;毕赤酵母X-33;细胞系:BEAS-2B
2.2 N6的表达、纯化、切割与鉴定
#### 2.2.1 表达载体的构建
基于毕赤酵母密码子使用偏好性(www.kazusa.or.jp/codon/),使用Reverse Translate Tool(www.bio-informatics.org/sms2/rev_trans.html)对6His-2Flag-N6基因序列进行优化。随后使用T4 DNA连接酶将DNA片段连接至pPICZαA质粒。重组载体经PmeI线性化后电穿孔导入毕赤酵母X-33感受态细胞,以空载pPICZαA质粒作为阴性对照。阳性转化子在含100 μg/mL Zeocin的YPDS培养基(1%酵母提取物、2%葡萄糖、2%蛋白胨、2%琼脂、1 M山梨醇)上筛选,并通过菌落PCR进一步验证。
【数据】培养基:YPDS(1%酵母提取物、2%葡萄糖、2%蛋白胨、2%琼脂、1 M山梨醇);抗生素:100 μg/mL Zeocin;限制性内切酶:PmeI、XhoI、XbaI;连接酶:T4 DNA连接酶;宿主:毕赤酵母X-33、大肠杆菌DH5α
#### 2.2.2 6His-2Flag-N6的表达
在补充100 μg/mL Zeocin的YPD液体培养基中筛选阳性转化子,于30°C培养14–18 h。随后将培养物转接至200 mL BMGY培养基,每24 h添加1%甲醇,总诱导时间为120 h。诱导结束后收集发酵上清液,通过SDS-PAGE进行验证。选择表达水平最高的菌株进行5 L规模发酵表达,方法参照既往描述。
【数据】培养基:YPD液体培养基、BMGY培养基;抗生素:100 μg/mL Zeocin;温度:30°C;培养时间:14–18 h;诱导剂:1%甲醇(每24 h添加);总诱导时间:120 h;发酵规模:5 L
#### 2.2.3 6His-2Flag-N6的纯化、切割与表征
发酵液以5000 rpm离心30 min,收集上清液,使用镍亲和层析纯化6His-2Flag-N6融合蛋白。纯化产物经脱盐、冻干后,在50%甲酸溶液中于50°C进行切割。切割后,反应混合物进行第二轮镍亲和层析。由于目标N6蛋白不含组氨酸标签,其不与树脂结合,收集于流穿液中,从而有效实现标签去除。切割效率通过Tricine-SDS-PAGE、基质辅助激光解吸电离飞行时间质谱(MALDI-TOF MS)和抑菌圈试验进行验证。
【数据】离心条件:5000 rpm、30 min;切割条件:50%甲酸、50°C;纯化方法:镍亲和层析(两轮);验证方法:Tricine-SDS-PAGE、MALDI-TOF MS、抑菌圈试验
2.3 肺炎克雷伯菌的耐药性与致病性
#### 2.3.1 肺炎克雷伯菌的药物敏感性
按照临床和实验室标准协会(CLSI)指南,采用Kirby-Bauer纸片扩散法测定9株临床分离肺炎克雷伯菌的抗菌药物敏感性。细菌悬液调整至0.5麦氏浊度标准。使用无菌棉签将细菌悬液均匀涂布于MHA平板上。用无菌镊子将抗生素纸片置于琼脂表面。每种抗生素放置三个平行纸片,间距至少24 mm,距平板边缘至少15 mm。37°C孵育18 h后,测量抑菌圈直径并根据CLSI标准判读。需注意,黏菌素药敏试验仅采用微量肉汤稀释法,折点仅限于中介(I)和耐药(R)。
【数据】方法:Kirby-Bauer纸片扩散法;菌液浓度:0.5麦氏浊度;培养基:MHA平板;温度:37°C;时间:18 h;纸片间距:≥24 mm;距边缘:≥15 mm;平行数:3个
#### 2.3.2 肺炎克雷伯菌毒力基因检测
通过PCR检测13个毒力相关基因(peg344、iutA、mrkD、allS、kfu、entB、aerobactin、iroN、rmpA2、magA、rmpA、ybtS、fimH)的存在,引物序列参考Xu。使用DNA提取试剂盒(天根生化科技(北京)有限公司,中国)按制造商说明提取细菌基因组DNA作为PCR模板。PCR总反应体积为25 μL,包含2.5 μL 10× PCR Buffer、2 μL dNTPs、0.5 μL Taq DNA聚合酶、3 μL DNA模板、正向和反向引物各1 μL,加ddH₂O至终体积25 μL。在Applied Biosystems PCR仪(美国)上进行扩增,程序如下:94°C预变性5 min;随后30个循环(94°C变性30 s,58°C退火30 s,72°C延伸20 s);最后72°C终延伸5 min。PCR产物经2%琼脂糖凝胶电泳分离,使用Geliance 200凝胶成像系统(PerkinElmer,美国)可视化。
【数据】PCR反应体积:25 μL;组分:2.5 μL 10× PCR Buffer、2 μL dNTPs、0.5 μL Taq DNA聚合酶、3 μL DNA模板、正反向引物各1 μL;预变性:94°C、5 min;循环数:30;变性:94°C、30 s;退火:58°C、30 s;延伸:72°C、20 s;终延伸:72°C、5 min;凝胶浓度:2%琼脂糖
2.4 N6的抗菌与抗生物膜活性
#### 2.4.1 最低抑菌浓度与最低杀菌浓度
采用微量稀释肉汤法测定N6的最低抑菌浓度(MIC)和最低杀菌浓度(MBC)。简言之,将菌株在MHB培养基中于37°C培养至对数生长期。将细菌悬液(1 × 10⁵ CFU/mL)加入含N6倍比稀释液(0.5–128 μg/mL)的96孔板中,37°C孵育18–24 h。PBS作为阴性对照,MHB作为空白对照。MIC值定义为未观察到细菌生长的最低N6浓度。MBC测定时,从MIC试验中无可见生长的孔中取样,亚培养于MHA平板。进一步孵育后,记录无集落形成的最低浓度为MBC。所有实验均设三组平行。
【数据】菌液浓度:1 × 10⁵ CFU/mL;N6浓度范围:0.5–128 μg/mL;培养基:MHB、MHA;温度:37°C;时间:18–24 h;平行数:3组
#### 2.4.2 体外杀菌动力学
按既往方法测定N6对肺炎克雷伯菌的体外时间-杀菌曲线。简言之,将对数生长期的肺炎克雷伯菌S469在新鲜MHB培养基中稀释至1 × 10⁵ CFU/mL,于37°C、250 rpm振荡培养。将N6以终浓度1×、2×和4× MIC加入10 mL细菌悬液(50 mL锥形瓶)中,评估杀菌效果。在孵育后0、0.5、1、2、4、6、8、10、12和24 h取样100 μL进行菌落计数。黏菌素作为阳性对照。
【数据】菌液浓度:1 × 10⁵ CFU/mL;N6浓度:1×、2×、4× MIC;培养条件:37°C、250 rpm;取样时间点:0、0.5、1、2、4、6、8、10、12、24 h;取样体积:100 μL;阳性对照:黏菌素
#### 2.4.3 与抗生素的协同作用
采用棋盘微量滴定法测定N6与多种抗生素的联合效果,包括林可霉素、万古霉素、黏菌素、红霉素、庆大霉素、卡那霉素和盐酸金霉素。简言之,将180 μL对数期肺炎克雷伯菌S469(1 × 10⁵ CFU/mL)分配至96孔板,随后加入10 μL N6(1/32×至4× MIC)和10 μL抗生素。采用分级抑菌浓度(FIC)指数评估联合效果:FIC指数(FICI)= MIC(联合时肽)/MIC(单用肽)+ MIC(联合时抗生素)/MIC(单用抗生素)。FICI ≤ 0.5表示协同效应,0.5 < FICI ≤ 1表示相加效应,1 < FICI ≤ 4表示无相互作用,FICI > 4表示拮抗效应。
【数据】菌液浓度:1 × 10⁵ CFU/mL;菌液体积:180 μL;N6浓度范围:1/32×至4× MIC;N6体积:10 μL;抗生素体积:10 μL;抗生素种类:林可霉素、万古霉素、黏菌素、红霉素、庆大霉素、卡那霉素、盐酸金霉素;FICI判读标准:≤0.5协同,0.5–1相加,1–4无相互作用,>4拮抗
#### 2.4.4 生物膜清除试验
采用结晶紫染色法评估肽对肺炎克雷伯菌生物膜形成的抑制及破坏能力。未处理细菌作为阴性对照(A),新鲜MHB培养基作为空白对照(A0)。生物膜生物量按以下公式定量:生物膜(%)= ((A肽−A0)/(A−A0)) × 100%。对新生生物膜的影响:将对数期肺炎克雷伯菌S469(1 × 10⁸ CFU/mL,180 μL)加入……
【数据】菌液浓度:1 × 10⁸ CFU/mL;菌液体积:180 μL;方法:结晶紫染色法;阴性对照:未处理细菌(A);空白对照:新鲜MHB(A0);公式:生物膜(%)= ((A肽−A0)/(A−A0)) × 100%
研究结果
3.1 N6的表达、纯化、切割与鉴定
#### 3.1.1 重组质粒的构建
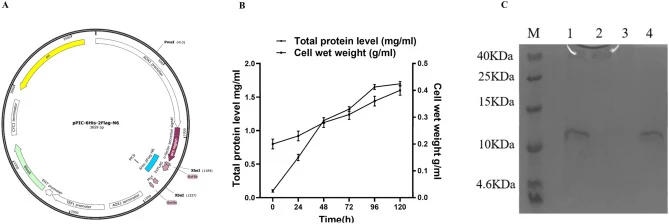
6His-2Flag-N6基因经XhoI和XbaI酶切后,插入pPICZαA质粒并转化至大肠杆菌DH5α,成功构建重组载体pPIC-6His-2Flag-N6(图1A)。随后使用PmeI线性化重组载体并转入毕赤酵母X-33。使用100 μg/mL Zeocin筛选阳性转化子。
【数据】限制性内切酶:XhoI、XbaI、PmeI;宿主:大肠杆菌DH5α、毕赤酵母X-33;筛选抗生素:100 μg/mL Zeocin;载体:pPICZαA
#### 3.1.2 6His-2Flag-N6融合蛋白的高密度表达
阳性转化子在5 L生物反应器中进行高密度发酵培养。目标融合蛋白的表达在整个诱导期间持续增加,在120 h达到最大。在此表达峰值点,总分泌蛋白浓度和生物量分别达到1.66 g/L和0.4 g/mL(图1B)。
【数据】发酵规模:5 L生物反应器;总分泌蛋白浓度:1.66 g/L;生物量:0.4 g/mL;峰值时间:120 h
#### 3.1.3 目标蛋白的纯化、切割与功能表征
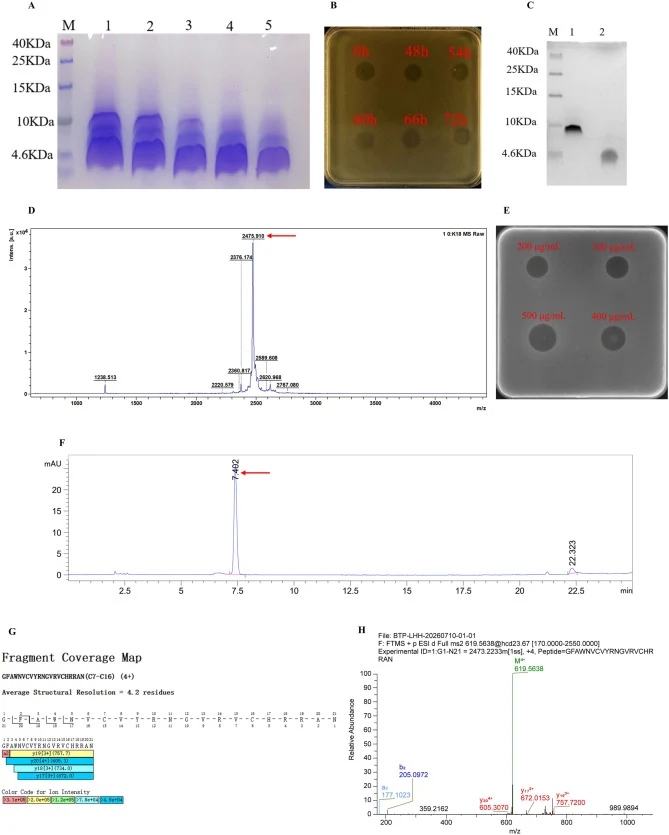
使用镍亲和层析纯化6His-2Flag-N6融合蛋白。SDS-PAGE分析显示250 mM咪唑洗脱组分呈现单一显著条带,表明纯度较高(图1C,第4泳道)。为系统评估工艺经济性,基于5 L发酵罐三批平行实验计算了逐步回收率。发酵上清液中总分泌融合蛋白达1.66 g/L,经初步Ni-NTA亲和层析后获得1.31 g/L纯化融合蛋白,对应回收率为78.9%,损失主要归因于上清液杂质和未结合融合蛋白。纯化融合蛋白随后进行甲酸切割,有效将目标N6肽段与6His-2Flag标签分离,66 h实现完全切割(图2A)。切割粗反应混合物分析显示对金黄色葡萄球菌43300具有抗菌活性(图2B),证实成功生成了具有生物活性的产物。随后纯化无标签N6肽段(图2C)。切割后,采用第二轮Ni-NTA层析去除His标签残留物,收集含天然N6的流穿液。切割和第二轮纯化步骤的合并回收率为77.9%。因此,从发酵上清液到最终纯化N6的总回收率计算约为61.5%,最终产量为1.02 g/L,纯度超过93%(图2F)。MALDI-TOF MS验证其分子量为2475.9 Da,与理论值一致(图2D)。为进一步确认一级结构完整性,进行了LC-MS/MS肽段测序。MS/MS碎片离子全面覆盖了N端和C端区域,证明两端均未发生截短或修饰,完整序列与理论序列一致(图2G和H)。此外,纯化N6肽对肺炎克雷伯菌S469表现出强效、浓度依赖性的抗菌活性(图2E)。
【数据】洗脱液:250 mM咪唑;发酵上清液总分泌融合蛋白:1.66 g/L;Ni-NTA纯化后融合蛋白:1.31 g/L;回收率:78.9%;完全切割时间:66 h;切割及二次纯化合并回收率:77.9%;总回收率:61.5%;最终产量:1.02 g/L;纯度:>93%;分子量:2475.9 Da;靶菌:金黄色葡萄球菌43300、肺炎克雷伯菌S469
3.2 肺炎克雷伯菌的耐药性与致病性
#### 3.2.1 肺炎克雷伯菌的药物敏感性
如表1所示,抗生素敏感性试验显示所有受试菌株对氨苄西林和亚胺培南均耐药,而大多数对第二代和第三代头孢菌素及美罗培南敏感。值得注意的是,菌株113和111对某些头孢菌素表现出部分耐药。所有受试菌株对黏菌素的MIC值均较低。
【数据】耐药:氨苄西林、亚胺培南(全部菌株);敏感:第二代和第三代头孢菌素、美罗培南(大多数菌株);部分耐药:菌株113和111对某些头孢菌素;黏菌素:所有菌株MIC值低
#### 3.2.2 肺炎克雷伯菌毒力基因检测
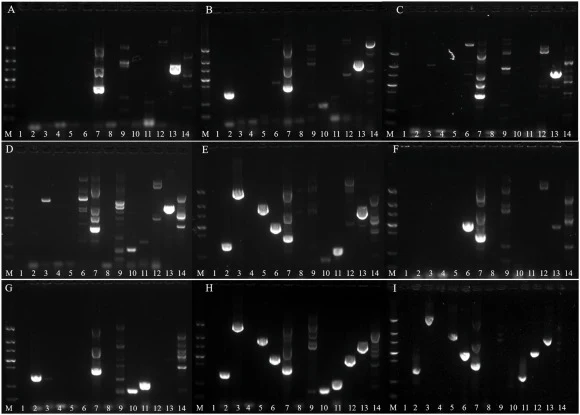
对9株临床分离肺炎克雷伯菌进行毒力基因检测,结果见图3。所有菌株至少携带4个毒力基因:菌株K11和YB47携带最多(6个基因),其次为菌株77和JB22(5个基因)。毒力基因分布差异显著:fimH(8/9)和entB(8/9)携带率最高;ybtS(7/9)和peg344(6/9)也较为常见;magA(4/9)、iutA(2/9)和rmpA(2/9)携带率相对较低。
【数据】毒力基因总数:13个;所有菌株至少携带:4个毒力基因;K11和YB47:6个基因;77和JB22:5个基因;fimH:8/9;entB:8/9;ybtS:7/9;peg344:6/9;magA:4/9;iutA:2/9;rmpA:2/9
3.3 N6的抗菌活性
#### 3.3.1 N6的MIC和MBC结果
通过测定N6对不同细菌和真菌菌株的MIC和MBC评估其抗菌活性。如表2所示,N6对革兰阴性菌表现出显著的抑菌活性(MIC 1–8 μg/mL)。值得注意的是,对9株临床分离肺炎克雷伯菌,MIC值在2–8 μg/mL范围内。对革兰阳性菌,仅表现出中等活性,对无乳链球菌的抑制较弱(MIC ≥ 64 μg/mL)。此外,N6对白色念珠菌也有一定抑制作用(MIC 32 μg/mL)。所有临床肺炎克雷伯菌分离株的MBC/MIC比值为1–4,符合杀菌标准(≤4)。
【数据】革兰阴性菌MIC:1–8 μg/mL;临床肺炎克雷伯菌MIC:2–8 μg/mL;无乳链球菌MIC:≥64 μg/mL;白色念珠菌MIC:32 μg/mL;MBC/MIC比值:1–4;杀菌标准:≤4
#### 3.3.2 体外杀菌动力学
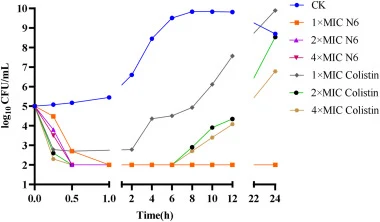
如图4所示,杀菌曲线表明N6在1×、2×和4× MIC浓度下均在处理后1 h内完全清除肺炎克雷伯菌S469,后续无细菌反弹。杀菌动力学呈现浓度依赖性模式。相比之下,黏菌素虽表现出浓度依赖性抑菌效果,但未能实现完全细菌清除。
【数据】N6浓度:1×、2×、4× MIC;完全清除时间:1 h内;细菌反弹:无;黏菌素:浓度依赖性抑菌,未完全清除
#### 3.3.3 与抗生素的协同作用
表3展示了抗菌肽N6与7种抗生素联合处理肺炎克雷伯菌S469的体外药敏试验结果。N6与庆大霉素(FICI = 0.5625)和红霉素(FICI = 1.0)联合表现出相加效应。值得注意的是,与庆大霉素联合使其MIC值降低了16倍。相比之下,与其他5种抗生素(盐酸林可霉素、万古霉素、黏菌素、卡那霉素和盐酸金霉素)联合产生无关效应(FICI > 1),表明N6与这些药物之间无协同或相加相互作用。
【数据】N6+庆大霉素:FICI = 0.5625(相加),庆大霉素MIC降低16倍;N6+红霉素:FICI = 1.0(相加);N6+盐酸林可霉素/万古霉素/黏菌素/卡那霉素/盐酸金霉素:FICI > 1(无关)
#### 3.3.4 生物膜清除试验
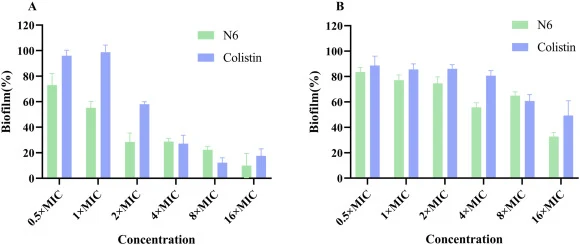
如图5A所示,N6对新生生物膜发挥浓度依赖性清除效果。16× MIC处理24 h后,生物膜形成率降至约9.9%。在0.5–2× MIC范围内,N6的清除效果优于黏菌素;在2× MIC以上浓度,两者效果相当。N6对成熟生物膜也表现出清除活性(图5B)。0.5–2× MIC处理清除了约20%的成熟生物膜,效果随浓度增加而增强;16× MIC时清除率达约61%,表明N6对成熟肺炎克雷伯菌生物膜具有显著清除效果。相比之下,黏菌素在所有测试浓度下对成熟生物膜的清除效果均弱于N6。
【数据】新生生物膜:16× MIC、24 h后形成率降至约9.9%;0.5–2× MIC:N6优于黏菌素;成熟生物膜:0.5–2× MIC清除约20%;16× MIC清除约61%;黏菌素:各浓度均弱于N6
3.4 N6对肺炎克雷伯菌的体外和体内效果
#### 3.4.1 N6对BEAS-2B细胞的细胞毒性
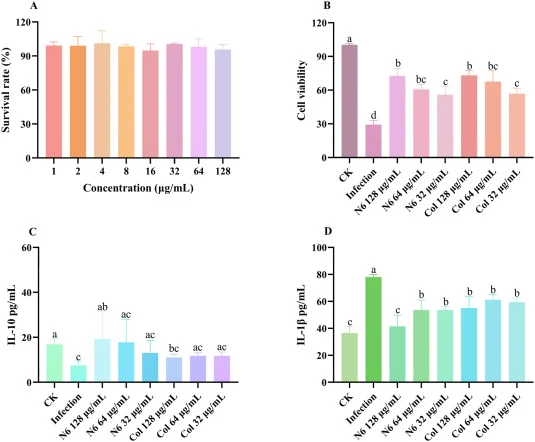
为评估N6的生物安全性,检测了其对BEAS-2B的细胞毒性作用。如图6A所示,CCK-8实验结果显示N6在1–128 μg/mL浓度下无显著细胞毒性,细胞活力持续超过90%。
【数据】N6浓度:1–128 μg/mL;细胞活力:>90%;方法:CCK-8
#### 3.4.2 N6处理BEAS-2B细胞感染
N6显著减轻了肺炎克雷伯菌诱导的BEAS-2B细胞死亡。如图6B所示,肺炎克雷伯菌感染显著降低细胞活力至29.79%(P < 0.01),证实感染模型成功建立。N6和黏菌素干预均以浓度依赖性方式提高感染细胞活力。在128 μg/mL时,N6和黏菌素表现出相当的保护效果,分别恢复细胞活力至72.75%和73.80%。当浓度降至64和32 μg/mL时,两种药物的保护效果相应减弱,对应组间无统计学显著差异。
【数据】感染后细胞活力:29.79%(P < 0.01);128 μg/mL N6:细胞活力72.75%;128 μg/mL黏菌素:细胞活力73.80%;浓度:128、64、32 μg/mL;趋势:浓度依赖性
3.5 N6对肺炎克雷伯菌感染小鼠的保护效果
#### 3.5.1 小鼠存活率
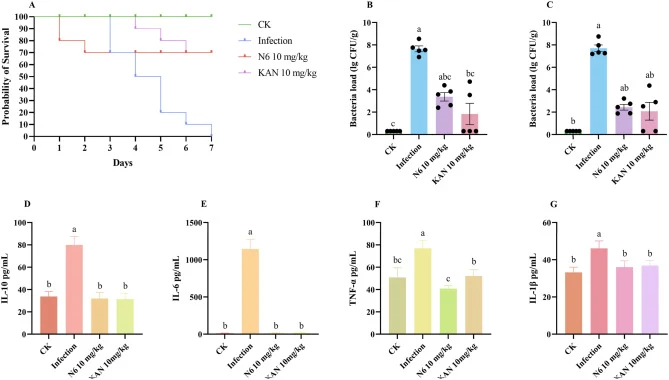
如图7A所示,在小鼠全身感染模型中评估N6的保护效果。感染后7天内,N6治疗组小鼠存活率显著提高至70%。
【数据】观察时间:7天;N6治疗组存活率:70%
#### 3.5.2 器官细菌负荷
如图7B和C所示,感染后7天,N6治疗显著降低了小鼠肺组织和脑组织中的细菌负荷(lg CFU/g)。
【数据】时间:感染后7天;检测指标:肺组织和脑组织细菌负荷(lg CFU/g);N6组:显著降低
#### 3.5.3 血清细胞因子水平
如图7D–G所示,N6治疗调节了感染小鼠的血清细胞因子水平。
【数据】检测指标:血清细胞因子水平;时间:感染后7天
#### 3.5.4 组织病理学观察
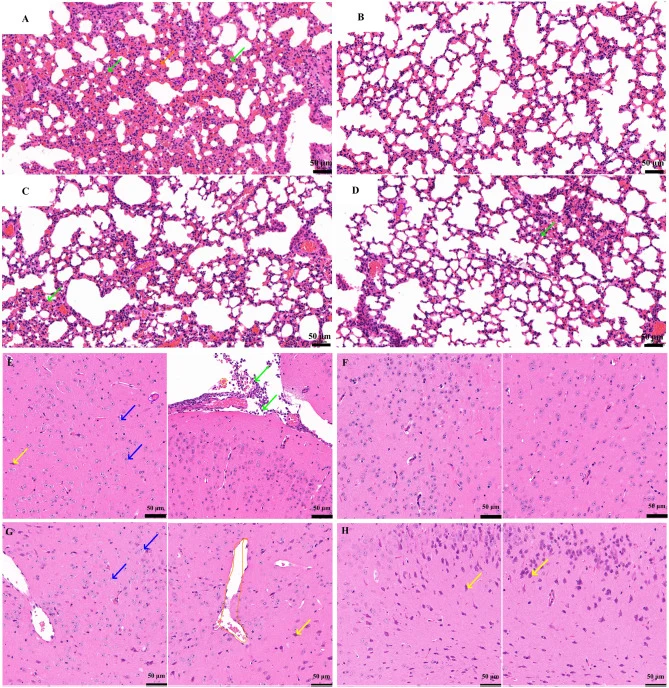
如图8所示,HE染色组织病理学观察显示,N6对肺炎克雷伯菌感染小鼠的肺和脑组织具有保护效果。感染组肺泡壁中性粒细胞浸润显著(绿色箭头),肺泡内散在坏死细胞碎片。
【数据】染色方法:HE染色;观察组织:肺和脑;感染组:肺泡壁中性粒细胞浸润、肺泡内坏死细胞碎片
3.6 N6对肺炎克雷伯菌膜通透性的影响
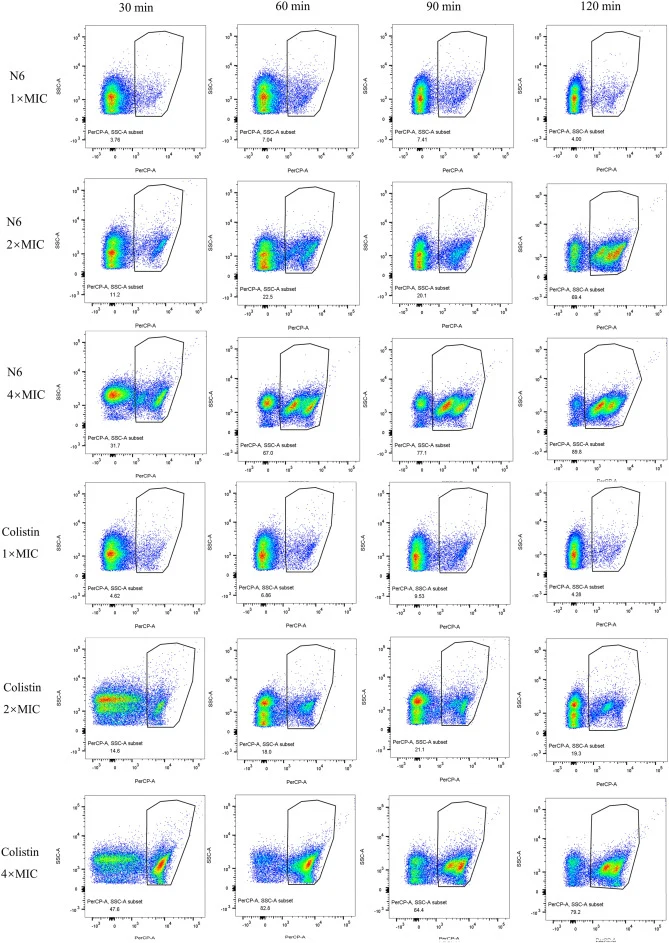
如图9所示,流式细胞术分析显示N6和黏菌素对肺炎克雷伯菌S469膜通透性的时间和浓度依赖性影响。行对应N6(1×、2×、4× MIC)和黏菌素(1×、2×、4× MIC)处理组,列代表暴露时间(30、60、90 min……)。
【数据】方法:流式细胞术;N6浓度:1×、2×、4× MIC;黏菌素浓度:1×、2×、4× MIC;暴露时间:30、60、90 min等
3.7 N6对肺炎克雷伯菌形态的影响
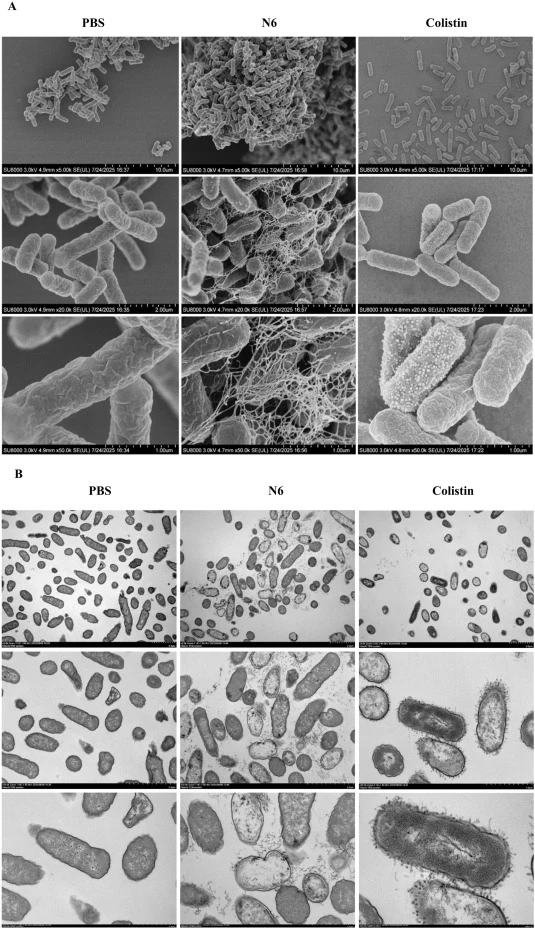
如图10所示,扫描电镜(SEM)和透射电镜(TEM)观察显示N6或黏菌素处理后肺炎克雷伯菌S469的形态变化。SEM图像显示PBS对照组、N6处理组和黏菌素处理组(从左至右)在×5k、×20k和×50k放大倍数下(从上至下)的形态。
【数据】方法:SEM、TEM;放大倍数:×5k、×20k、×50k;分组:PBS对照、N6处理、黏菌素处理
3.8 N6对肺炎克雷伯菌代谢活性的影响
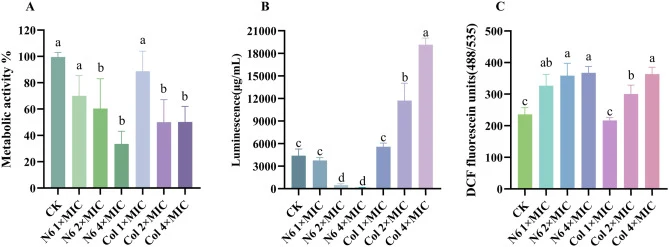
如图11所示,所有面板中:CK为空白对照;N6为N6处理组;Col为黏菌素处理组。1×、2×和4× MIC分别表示最低抑菌浓度的1、2和4倍。不同字母(a–d)标记显著差异。
【数据】分组:CK(空白对照)、N6处理组、Col(黏菌素处理组);浓度:1×、2×、4× MIC;显著性标记:不同字母(a–d)表示显著差异
讨论与解读
抗菌肽的大规模异源表达是其临床转化的关键瓶颈。宿主系统选择、融合标签设计和发酵工艺优化是决定目标产物产量、生物活性和工业化潜力的关键因素。针对N6的固有特性——如强正电荷可能导致宿主毒性——本研究采用了“6×His-2×Flag双标签加甲酸切割位点”的融合表达策略。2×Flag标签有效中和N6的正电荷以确保宿主兼容性,6×His标签则通过镍亲和层析实现高效下游纯化。与既往依赖大标签(如SUMO)的策略相比,短肽标签显著提高了切割后目标肽的产量,凸显了短肽标签在高产抗菌肽表达中的实用性。在纯化方面,整合甲酸切割位点实现了标签与N6的高效、低成本分离。与成本高昂的蛋白酶切割方法不同,甲酸处理实现了完全切割,兼顾了高效率和成本效益。切割后,第二轮镍柱纯化步骤一步去除了游离标签、未切割融合蛋白和其他杂质,显著简化了下游流程。通过该整合策略,我们实现了……
编译者解读:本研究的方法学核心在于“短肽双标签+甲酸切割”这一简洁而高效的设计逻辑。相比SUMO等大标签融合系统,6His-2Flag策略在保证宿主兼容性的同时降低了切割成本,1.02 g/L的产量和61.5%的总回收率在抗菌肽毕赤酵母表达体系中处于较高水平。该平台的可推广性值得关注——甲酸切割位点的引入使下游纯化从三步简化为两步,对工业化生产具有实际意义。局限在于甲酸切割的特异性是否适用于其他序列的抗菌肽仍需验证,且N6的体内半衰期和免疫原性尚未在文中充分表征。
参考来源
期刊:Synthetic and Systems Biotechnology, 2027
DOI: 10.1016/j.synbio.2026.08.012
DOI: 10.1016/j.synbio.2026.08.012