来源:Temperature dependence of Bacillus cereus spores: effects on sporulation, germination behavior, and inner membrane protein responses(Food Research International)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
蜡样芽孢杆菌是肉制品保鲜中难以根除的食源性病原菌,其休眠孢子能耐受热加工并在适宜条件下萌发,导致食品腐败和食源性疾病。本研究系统考察了产孢温度(18–40 °C)对蜡样芽孢杆菌孢子产孢效率、含水量、耐湿热性、分子组成及萌发行为的影响,并进一步提取孢子内膜蛋白(IMPs),分析不同热激活温度(60–80 °C)下IMPs的理化响应。研究发现25–30 °C产孢效率最高,30 °C为最适产孢温度;产孢温度升高导致孢子含水量降低、耐湿热性增强;65 °C为最佳热激活条件,可显著提升萌发效率并引起IMPs适度的构象重排。
研究背景
芽孢杆菌属因能产生高抗逆性孢子而成为食品安全的重要威胁。与梭菌属相比,蜡样芽孢杆菌等芽孢杆菌产孢效率更高,孢子耐热性更强。孢子若在食品热加工中存活,后续萌发恢复营养生长,可产生毒素,引发食品腐败和人类疾病。营养细胞与孢子在胁迫耐受性上差异显著,因此细菌的生理状态是食品杀菌策略中的关键考量因素。产孢过程中形成的保护性结构和DNA修复机制增强了孢子的胁迫抗性。从原料处理到终端消费的复杂加工与流通链,可导致特性异质的细菌孢子污染食品。芽孢杆菌孢子的生理特性高度依赖温度,其中产孢温度和后续热激活处理是两个最重要的影响因素。然而,针对食品腐败和人类疾病相关孢子的研究仍相对有限。本研究以从食品中分离的蜡样芽孢杆菌为对象,从产孢能力、萌发行为及提取的内膜相关蛋白组分的理化响应等方面,系统分析温度对孢子特性的影响。
研究方法
2.1 材料
NaCl、MnSO₄·4H₂O、碘克沙醇(Iodixanol)、KCl、TbCl₃·6H₂O、肌酐和L-丙氨酸(Ala)购自国药集团化学试剂有限公司(中国上海)。2.5%戊二醛和乙醇由源叶生物科技有限公司(中国上海)提供。营养琼脂(NA)、溶菌肉汤(LB)、营养肉汤(NB)和平板计数琼脂(PCA)购自海博生物技术有限公司(中国青岛)。
【数据】试剂来源:国药集团化学试剂有限公司、源叶生物科技有限公司、海博生物技术有限公司;试剂纯度:原文未详述;浓度:2.5%戊二醛
2.2 菌株与产孢条件
将保藏菌株划线接种于NA平板,37 °C培养24–48 h。挑取单菌落接种于LB液体培养基,37 °C振荡培养12–18 h。Difco产孢培养基(DSM)的制备方法为:在100 mL NB中加入1.5 g琼脂和MnSO₄至终浓度50 mg/L。将细菌培养物以1:100比例转接至DSM培养基,继续培养24–96 h。在相差显微镜(BA410,麦克奥迪中国集团有限公司,中国厦门)下验证产孢率超过95%。通过离心(8000 rpm,10 min,4 °C)收集孢子悬液,用无菌水反复洗涤以去除残留营养物和杂质(Setlow, 2019)。采用碘海醇密度梯度离心进一步分离高纯度孢子(Liang et al., 2021)。产孢温度选择为4 °C、10 °C、18 °C、25 °C、30 °C、37 °C、45 °C和50 °C。进行平板计数以量化总细菌数和孢子数。孢子数通过在80 °C热灭活20 min消除营养细胞后测定。产孢效率也通过相差显微镜评估。
【数据】菌株:蜡样芽孢杆菌(Bacillus cereus);培养基:NA、LB、NB、DSM;DSM配方:100 mL NB + 1.5 g琼脂 + MnSO₄(终浓度50 mg/L);培养温度:37 °C(NA平板、LB);培养时间:24–48 h(NA平板)、12–18 h(LB)、24–96 h(DSM);转接比例:1:100;产孢率:>95%;离心条件:8000 rpm,10 min,4 °C;产孢温度:4、10、18、25、30、37、45、50 °C;热灭活条件:80 °C,20 min
2.3 孢子含水量测定
将孢子悬液调整至初始浓度约10⁸ CFU/mL。孢子悬液在20 °C、33%相对湿度(RH)下风干3 d至恒重,置于预称重的铝舟中。随后将样品在110 °C烘箱中干燥24 h,冷却至室温,称重至质量稳定。孢子含水量计算公式如下:(1)含水量% = (风干重量 − 烘干重量) / 烘干重量 × 100
【数据】孢子浓度:约10⁸ CFU/mL;风干条件:20 °C,33% RH,3 d;烘干条件:110 °C,24 h;计算公式:含水量% = (风干重量 − 烘干重量) / 烘干重量 × 100
2.4 孢子耐湿热性测定
蜡样芽孢杆菌孢子的耐湿热性测定参照方法并稍作修改。孢子在95 °C水浴中处理5–30 min,然后冷却(25 °C,30 min)。未处理样品作为对照,处理样品适当稀释后,取200 μL涂布于PCA琼脂平板,37 °C培养24 h进行微生物计数。初始孢子浓度调整至约10⁸ CFU/mL,孢子灭活数按前述方法测定。
【数据】处理温度:95 °C;处理时间:5–30 min;冷却条件:25 °C,30 min;涂布体积:200 μL;培养条件:37 °C,24 h;初始孢子浓度:约10⁸ CFU/mL
2.5 拉曼光谱分析
蜡样芽孢杆菌孢子的拉曼光谱分析按先前描述的方法进行(Zhu et al., 2022)。将不同产孢温度下产生的孢子均匀混合,取10 μL各样品置于洁净载玻片上,室温干燥后进行光谱采集。每个样品随机采集10次拉曼光谱。取平均光谱用于分析不同产孢温度引起的光谱变化。拉曼光谱使用LabRam HR Evolution光谱仪(Horiba Scientific Inc.)采集,峰位用硅标准品校准。100×物镜将532.8 nm激光以约20 mW功率传递至每个样品,使用激光共聚焦显微拉曼光谱仪记录400–1800 cm⁻¹范围的光谱,曝光时间10 s。
【数据】样品体积:10 μL;采集次数:每样品10次;激光波长:532.8 nm;激光功率:约20 mW;光谱范围:400–1800 cm⁻¹;曝光时间:10 s;物镜:100×
2.6 孢子萌发
#### 2.6.1 萌发实验
孢子萌发按先前描述的方法测定,稍作修改。孢子悬液分为两组:一组在65 °C热激活20 min,另一组作为非激活对照。热激活后,孢子与萌发剂在37 °C孵育120 min。本研究中使用的萌发剂为100 mM L-丙氨酸和100 mM肌酐的混合物(Vries, Hornstra, Vos, & Abee, 2004)。在指定萌发时间收集样品,用于OD₆₀₀测定、DPA释放分析和活菌计数。
【数据】热激活条件:65 °C,20 min;萌发温度:37 °C;萌发时间:120 min;萌发剂:100 mM L-丙氨酸 + 100 mM肌酐
#### 2.6.2 OD值
通过测量600 nm处光密度(OD₆₀₀)的下降来监测孢子萌发。每次测定取100 μL孢子悬液与等体积萌发剂混合,使终OD₆₀₀约为1,随后使用紫外分光光度计每20 min测定一次,总时长2 h。萌发率根据OD₆₀₀下降按以下公式计算:(2)OD₆₀₀降低% = (ODi − ODt) / ODi × 100,其中OD₆₀₀%代表光密度的相对变化,ODt指OD₆₀₀的绝对下降值,ODi为初始OD₆₀₀。
【数据】孢子悬液体积:100 μL;萌发剂体积:100 μL;终OD₆₀₀:约1;测定间隔:每20 min;总时长:2 h;计算公式:OD₆₀₀降低% = (ODi − ODt) / ODi × 100
#### 2.6.3 DPA释放
萌发过程中DPA释放使用铽荧光定量。处理后的孢子悬液离心(10,000 rpm/min,2 min,4 °C),取100 μL上清液与100 μL 20 μmol/L TbCl₃溶液混合。使用酶标仪(H1,博腾仪器有限公司,美国佛蒙特州威努斯基)在激发波长270 nm和发射波长545 nm处测定荧光强度。未处理样品和总DPA含量处理样品(121 °C,20 min)分别作为阴性和阳性对照。DPA释放率按以下公式计算(Zhu, Zhang, Li, Ren, et al., 2020):(3)DPA% = (F₁ − F₀) / (F₂ − F₀) × 100,其中F₀、F₁和F₂分别代表未处理样品、萌发剂处理样品和121 °C 20 min处理样品的荧光强度。
【数据】离心条件:10,000 rpm,2 min,4 °C;上清液体积:100 μL;TbCl₃浓度:20 μmol/L;TbCl₃体积:100 μL;激发波长:270 nm;发射波长:545 nm;阳性对照处理:121 °C,20 min;计算公式:DPA% = (F₁ − F₀) / (F₂ − F₀) × 100
#### 2.6.4 萌发和存活孢子计数
萌发后,孢子悬液在80 °C湿热处理20 min,系列稀释后涂布于PCA平板。平板在37 °C培养24 h后进行菌落计数。孢子减少数按Log₁₀(N₀/Nt)计算,其中N₀和Nt分别代表处理前后的总菌落数。
【数据】湿热处理:80 °C,20 min;培养条件:37 °C,24 h;计算公式:Log₁₀(N₀/Nt)
2.7 扫描电子显微镜(SEM)样品制备
使用SEM检查热处理后蜡样芽孢杆菌孢子的形态变化(Tan et al., 2025)。处理后的孢子悬液离心(8000 rpm,10 min,4 °C),沉淀在2.5%戊二醛中4 °C固定12 h。样品经梯度乙醇系列脱水并过夜干燥。干燥后的标本喷金后使用SEM(JSM-IT800,JEOL Ltd.,日本东京)观察。
【数据】离心条件:8000 rpm,10 min,4 °C;固定液:2.5%戊二醛;固定条件:4 °C,12 h;脱水:梯度乙醇;干燥:过夜;仪器:JSM-IT800 SEM
2.8 孢子IMPs提取
将孢子与反应缓冲液按1:1(v/v)混合,缓冲液含50 mmol/L Tris-HCl(pH 8.0)、8 mol/L尿素、1% SDS和50 mmol/L DTT,随后37 °C孵育90 min。离心(13,200 rpm,5 min,4 °C)后,沉淀用无菌水和150 mmol/L NaCl溶液洗涤四次(Zheng et al., 2016)。去除外孢壁的孢子随后悬浮于TEP缓冲液[50 mmol/L Tris-HCl(pH 7.4)、5 mmol/L EDTA和1 mmol/L PMSF]中至OD₆₀₀为50–70。随后加入MgCl₂、溶菌酶、RNase A和DNase I。37 °C孵育5 min后,样品在冰上冷却20 min。使用玻璃珠结合短暂超声破碎孢子,显微镜监测裂解效率。裂解液以13,000 rpm离心5 min,收集上清液。随后使用革兰氏阳性菌膜蛋白提取试剂盒提取膜蛋白。
【数据】孢子与缓冲液比例:1:1(v/v);缓冲液组成:50 mmol/L Tris-HCl(pH 8.0)、8 mol/L尿素、1% SDS、50 mmol/L DTT;孵育条件:37 °C,90 min;离心条件:13,200 rpm,5 min,4 °C;洗涤次数:4次;洗涤液:无菌水、150 mmol/L NaCl;TEP缓冲液:50 mmol/L Tris-HCl(pH 7.4)、5 mmol/L EDTA、1 mmol/L PMSF;OD₆₀₀:50–70;孵育:37 °C,5 min;冰上冷却:20 min;离心:13,000 rpm,5 min
2.9 温度对孢子IMPs的影响
#### 2.9.1 粒径分布测定
不同温度处理后蛋白质的粒径分布通过动态光散射使用Zetasizer Pro分析仪(Malvern Panalytical Ltd.,英国)测定。蛋白质溶液在1 c(原文此处截断)
【数据】仪器:Zetasizer Pro分析仪(Malvern Panalytical Ltd.,英国);原文未详述后续参数
研究结果
3.1 产孢温度对产孢效率的影响
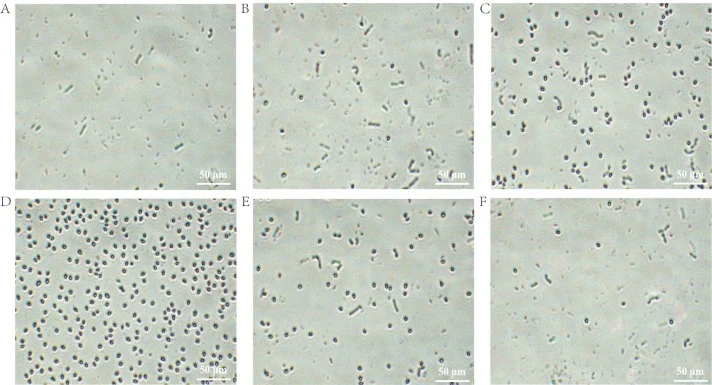
温度因素可强烈影响细菌生长和产孢。例如,芽孢杆菌属在其允许温度范围外无法产孢,而梭菌属如产气荚膜梭菌在37 °C时产孢效率最高。尽管大量研究聚焦于枯草芽孢杆菌和产气荚膜梭菌,但关于温度因素如何塑造蜡样芽孢杆菌——一种主要食品腐败菌——孢子特性的信息有限。为此,本研究在系列温度下培养蜡样芽孢杆菌,以孢子与总细菌细胞的比例评估产孢效率。如表1所示,蜡样芽孢杆菌营养细胞能够在10–40 °C生长,而在4 °C、45 °C或50 °C未观察到生长,表明这些温度超出其允许生长范围。尽管在10 °C下能够生长,但孢子形成可忽略不计。相反,在18–40 °C检测到孢子形成,18、25、30、37和40 °C的产孢效率分别为0.06%、76.1%、91.4%、55%和2.6%。蜡样芽孢杆菌的最适生长和产孢温度为30 °C,此时营养细胞数和产孢效率均最高(>90%)。与厌氧梭菌相比,蜡样芽孢杆菌生长温度范围更窄,但产孢效率更高。因此,为开发食品中孢子水平控制策略,选择五个支持较高产孢的温度——18、25、30、37和40 °C——用于进一步表征所得孢子。(见图1。)
【数据】菌株:蜡样芽孢杆菌;生长温度范围:10–40 °C;不生长温度:4 °C、45 °C、50 °C;产孢温度:18–40 °C;产孢效率:18 °C为0.06%,25 °C为76.1%,30 °C为91.4%,37 °C为55%,40 °C为2.6%;最适产孢温度:30 °C;最适产孢效率:>90%
3.2 产孢温度对孢子含水量的影响
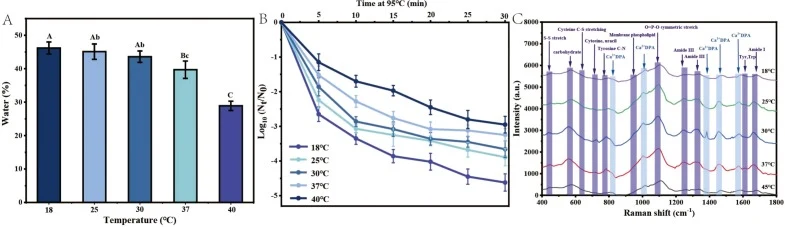
孢子核心含水量是耐湿热性的关键决定因素(Zhang & Mathys, 2019)。为研究产孢温度与孢子水合作用的关系,通过风干法测定孢子含水量。如图2A所示,孢子含水量随产孢温度升高呈下降趋势,从18 °C的46.2 ± 1.8%降至40 °C的28.9 ± 1.4%。这些结果表明产孢温度强烈影响孢子内的水分保持。先前研究提示,较高的产孢温度促进孢子内矿物离子的积累,从而降低核心含水量并增强耐湿热性。(见图2。)
【数据】含水量:18 °C为46.2 ± 1.8%,40 °C为28.9 ± 1.4%;测定方法:风干法;样本量:n = 3
3.3 产孢温度对孢子耐湿热性的影响
研究表明,即使孢子核心含水量的微小变化也能显著影响耐湿热性。基于此观察,通过将不同温度产生的孢子暴露于95 °C水浴不同时间,评估其耐湿热性。如图2B所示,95 °C处理30 min后,18 °C产孢的孢子活力损失从4.62 log单位降至40 °C产孢的2.95 log单位,表明较高产孢温度下存活率增强。40 °C孢子的活力降低比18 °C孢子低约36%。总体而言,耐湿热性随产孢温度升高而逐渐增强。这一趋势伴随孢子含水量的降低,提示两者之间可能存在关系。这些发现进一步表明,产孢温度可能通过改变参与孢子形成的蛋白质来调节孢子含水量和耐湿热性。
【数据】处理温度:95 °C;处理时间:30 min;活力损失:18 °C为4.62 log单位,40 °C为2.95 log单位;40 °C较18 °C活力降低减少:约36%
3.4 产孢温度对孢子组成的影响
先前研究表明,产孢温度可影响孢子化学组成,进而影响孢子生理特性。拉曼光谱通过探测细菌的分子组成和结构特征,可实现快速、无损表征,广泛用于物种和菌株鉴定。为检查不同温度产生孢子之间的组成差异,进行了拉曼光谱分析。峰归属揭示蜡样芽孢杆菌孢子中存在多种化学成分,与先前报道一致(图2C,表2)(Zhu, Zhang, Li, Zhao, et al., 2020)。10次重复测量的平均拉曼光谱如图2C所示,主要拉曼谱带总结于表2。所有产孢温度的蜡样芽孢杆菌孢子拉曼光谱均以Ca²⁺-DPA信号为主,在662、825、1017、1395、1448和1570 cm⁻¹处有强特征谱带。这反映了高Ca²⁺-DPA积累,通常占孢子干重的5%–20%。孢子结构层包括外孢壁、芽孢衣、内膜和核心,主要成分为蛋白质。因此,测得光谱显示归属于酪氨酸和色氨酸等氨基酸侧链以及半胱氨酸衍生二硫键的典型信号。对应于酰胺III和酰胺I的蛋白质骨架信号分别在约1250 cm⁻¹和1665 cm⁻¹处检测到。酰胺I带来源于肽键的CO伸缩,提供关于α-螺旋和无规卷曲构象的结构信息。还检测到来源于DNA和RNA的信号,包括核苷酸、胞嘧啶和尿嘧啶的特征峰,以及核酸磷酸骨架的PO₂⁻对称伸缩振动。所有孢子样品在相似波数范围内显示共同的主要拉曼谱带:440–454 cm⁻¹(碳水化合物(淀粉)骨架模式)、561–580 cm⁻¹(碳水化合物)、1092–1110 cm⁻¹(O=P-O伸缩振动(核酸))、1247–1254 cm⁻¹和1332–1345 cm⁻¹(酰胺III)、1664–1685 cm⁻¹(酰胺I(不饱和脂质))。总体光谱模式在五个产孢温度间保持可比,但样品间特征峰特征仍存在明显差异。值得注意的是,636–668 cm⁻¹处来自半胱氨酸CS伸缩的谱带仅出现在30 °C、37 °C和40 °C形成的孢子中。归属于胞嘧啶和尿嘧啶的708–725 cm⁻¹峰出现在25 °C、30 °C和37 °C形成的样品中。775–784 cm⁻¹处酪氨酸CN伸缩振动在18 °C、30 °C和37 °C可观察到,而归属于膜磷脂的944–963 cm⁻¹谱带出现在18 °C、25 °C和30 °C。此外,与酪氨酸和色氨酸相关的1611–1620 cm⁻¹谱带仅在18 °C形成的孢子中未检测到。总之,这些光谱变化表明产孢温度影响成熟蜡样芽孢杆菌孢子的分子组成,包括Ca²⁺-DPA、蛋白质结构以及核酸、膜相关组分。结合观察到的孢子含水量、耐湿热性和萌发行为差异,这些拉曼结果表明产孢环境导致蜡样芽孢杆菌孢子的分子异质性,这可能与其生理特性的变化有关。
【数据】拉曼采集次数:每样品10次;主要谱带:662、825、1017、1395、1448、1570 cm⁻¹(Ca²⁺-DPA);Ca²⁺-DPA占孢子干重:5%–20%;酰胺III:约1250 cm⁻¹;酰胺I:约1665 cm⁻¹;半胱氨酸CS伸缩:636–668 cm⁻¹(仅30、37、40 °C);胞嘧啶和尿嘧啶:708–725 cm⁻¹(25、30、37 °C);酪氨酸CN伸缩:775–784 cm⁻¹(18、30、37 °C);膜磷脂:944–963 cm⁻¹(18、25、30 °C);酪氨酸和色氨酸:1611–1620 cm⁻¹(18 °C未检出)
3.5 产孢温度对孢子萌发的影响
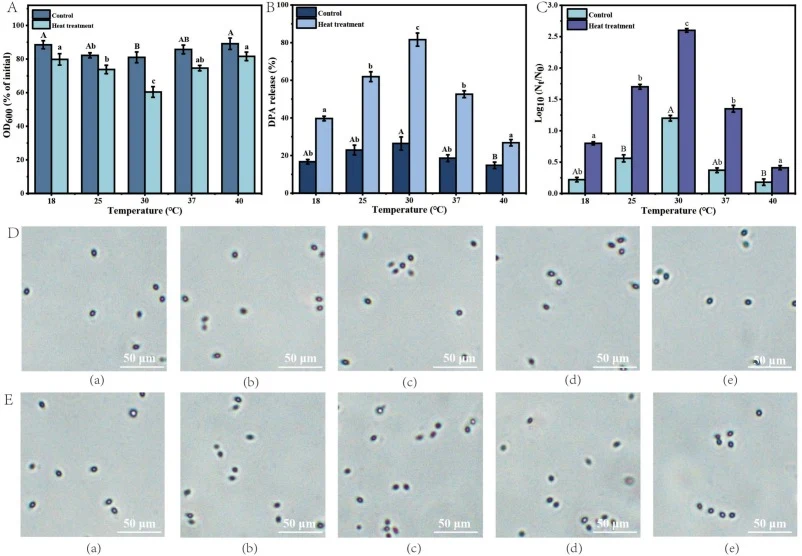
孢子萌发通常通过监测OD₆₀₀下降、DPA释放和孢子耐热性丧失来评估。本研究中,基于OD₆₀₀变化和DPA释放以及80 °C处理20 min后的灭活孢子数,测定萌发剂诱导的蜡样芽孢杆菌孢子萌发。图3A-C显示,萌发剂暴露导致不同产孢温度产生的孢子之间OD₆₀₀降低或DPA释放相当,而热灭活孢子的活力仅显示微小变化。相差显微镜进一步证实大多数孢子在萌发剂孵育120 min后仍保持折光性(图3D)。这些观察表明,有限部分的蜡样芽孢杆菌孢子在无预先热激活的情况下能够响应萌发剂而萌发。
【数据】萌发剂孵育时间:120 min;热灭活条件:80 °C,20 min;OD₆₀₀降低和DPA释放:不同产孢温度间相当;折光性:大多数孢子120 min后仍保持
3.6 热激活温度对孢子萌发的影响
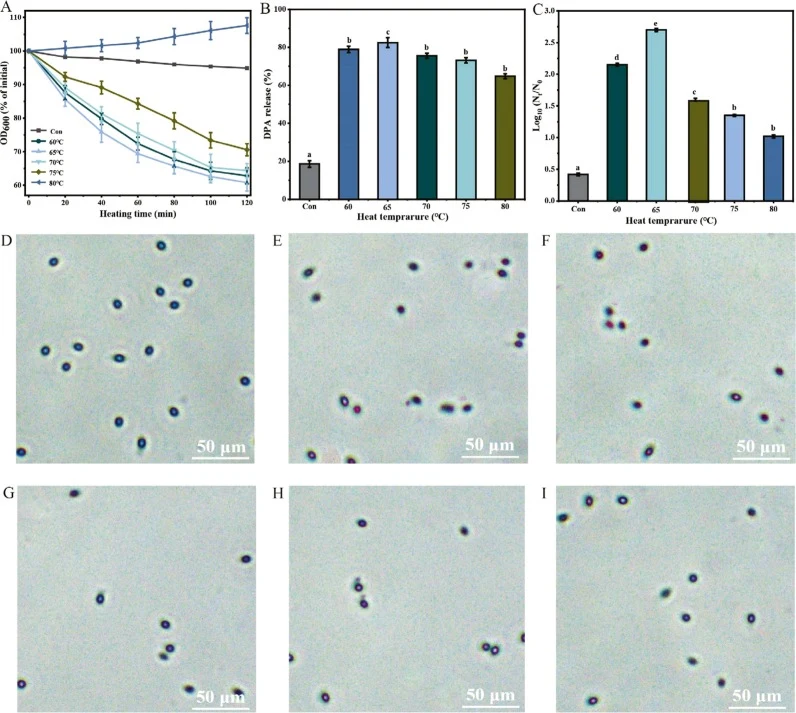
图4显示了30 °C形成的蜡样芽孢杆菌孢子在60、65、70、75和80 °C热激活后的萌发行为。如图4A所示,热激活温度对OD₆₀₀下降有显著影响。65 °C热激活导致最显著的OD₆₀₀降低,表明萌发效率最高。相比之下,80 °C热激活导致OD₆₀₀降低最少。DPA释放分析(图4B)显示类似趋势:65 °C热激活导致最高的DPA释放率,而80 °C热激活导致最低的DPA释放。热激活后孢子耐热性丧失的测定(图4C)进一步证实65 °C为最佳热激活温度。相差显微镜图像(图4D-I)直观展示了不同温度热激活后孢子萌发的形态变化。
【数据】热激活温度:60、65、70、75、80 °C;产孢温度:30 °C;最佳热激活温度:65 °C;OD₆₀₀降低:65 °C最显著,80 °C最少;DPA释放:65 °C最高,80 °C最低
3.7 内膜暴露验证及IMPs提取
为研究热激活对孢子内膜蛋白的影响,首先验证了内膜暴露方法并提取了IMPs。图5A-C显示了未处理孢子的电镜表征,图5D-F显示了内膜暴露处理孢子的电镜表征,图5G显示了未处理孢子的相差显微镜表征。电镜图像证实了内膜暴露处理的有效性。
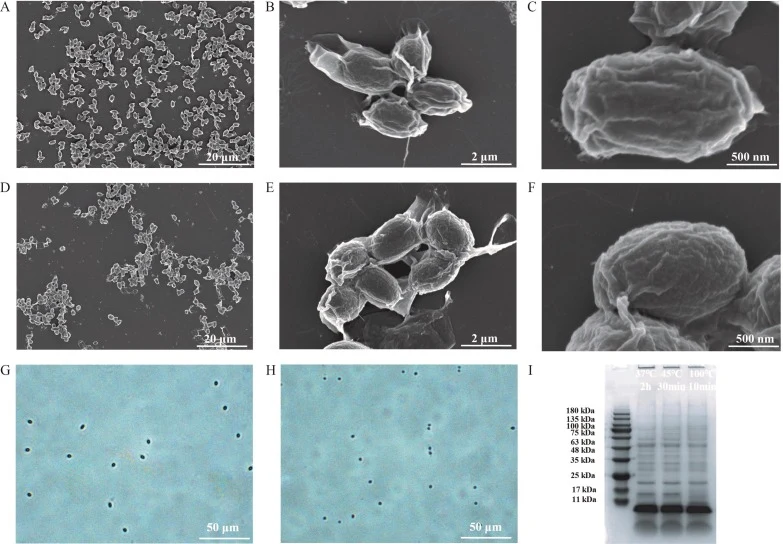
【数据】表征方法:电子显微镜、相差显微镜;样本:未处理孢子、内膜暴露处理孢子
3.8 热激活温度对孢子IMPs理化性质的影响
图6显示了不同温度热激活对蜡样芽孢杆菌孢子IMPs理化性质的影响。图6A为孢子IMPs热激活处理的示意图。图6B显示粒径分布,图6C显示表面疏水性。图6D-E显示在295和280 nm激发下的荧光发射光谱。这些生物物理分析结果表明,65 °C热激活导致IMPs适度的构象重排。
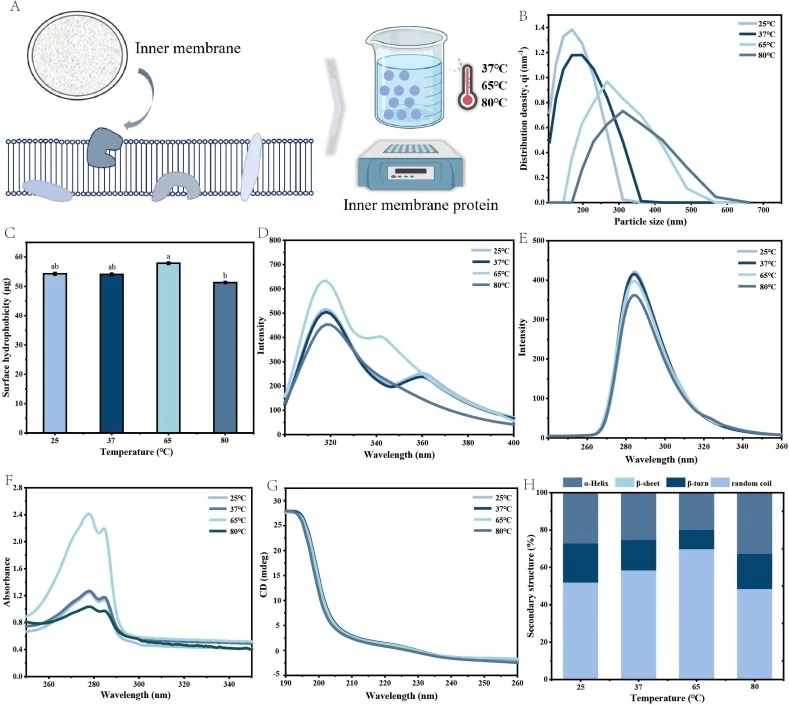
【数据】激发波长:295 nm、280 nm;检测指标:粒径分布、表面疏水性、荧光发射光谱;最佳热激活温度:65 °C
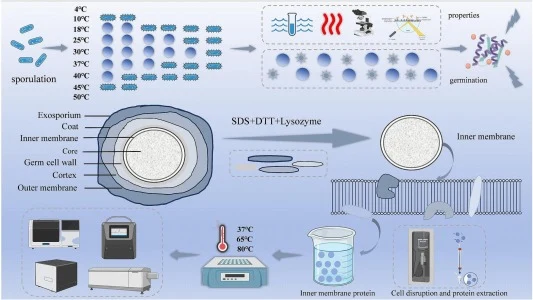
3.9 温度依赖性差异机制示意图
图7展示了蜡样芽孢杆菌孢子温度依赖性差异机制的示意图。
【数据】原文未详述
讨论与解读
细菌孢子的生理特性受产孢温度和后续热激活处理的双重强烈影响。本研究考察了温度对从食品中分离的蜡样芽孢杆菌的影响,从产孢能力、萌发行为及提取的内膜相关蛋白组分的理化响应等方面分析了温度效应(见图7)。产孢温度影响所得孢子的固有特性,尽管孢子形成在25–37 °C即可发生,但最适温度为30 °C。产孢温度从18升至40 °C时,孢子含水量逐渐降低,这与先前报道一致——较高产孢温度促进核心脱水和细菌孢子的结构成熟。核心含水量降低被认为是耐热性增强的重要因素,因为核心内有限的分子流动性增强了对胞内组分的保护。此外,产孢过程中温度依赖性变化可能影响孢子组分的积累和组织,包括Ca²⁺-DPA和结构蛋白,从而影响成熟孢子的生理特性。拉曼光谱揭示了不同产孢温度下完整孢子分子特征的差异,包括Ca²⁺-DPA、蛋白质相关和核酸相关光谱特征的变化。不同热激活温度导致不同的孢子萌发效率和提取IMPs组分的理化变化。65 °C在60–80 °C范围内为最佳热激活条件,导致萌发效率增强和IMPs适度的构象重排。
编译者解读: 该研究将拉曼光谱与内膜蛋白生物物理分析结合,构建了从产孢温度到孢子生理特性的完整证据链,方法选择兼顾了无损检测与机制探索。65 °C热激活最优的发现对食品加工中孢子灭活策略有直接指导意义——过低不足以激活萌发、过高则损伤内膜蛋白。局限在于IMPs提取后的体外理化分析难以完全反映孢子内真实膜环境,且未涉及具体蛋白种类鉴定,后续可结合蛋白质组学深入解析温度响应蛋白网络。
参考来源
期刊:Food Research International, 2026
DOI: 10.1016/j.foodres.2026.120252
DOI: 10.1016/j.foodres.2026.120252