来源:Sporulation kinetics of Bacillus subtilis under dynamic temperature conditions: impact on gene expression and spore properties(Food Research International)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
枯草芽孢杆菌能形成高抗逆性芽孢,既是食品腐败的重要诱因,也是工业生产的宝贵工具。本研究在生物反应器中设置了四种温度场景——恒定37°C、37→10°C、37→10→37°C以及37→20°C,系统监测了生长与产孢动力学、产孢相关基因的转录响应,以及所产芽孢的耐热性和萌发特性。结果显示,降温至10°C可完全阻断产孢,回到37°C后产孢恢复;而20°C仅延缓产孢。动态温度下形成的芽孢耐热性更低、在L-丙氨酸中萌发效率更高。研究还改进了Gauvry等提出的产孢动力学模型,使其能够纳入温度动态变化,为食品微生物风险评估和有益芽孢的优化生产提供了量化工具。
研究背景
枯草芽孢杆菌是一种革兰氏阳性、产内生芽孢的细菌,因其遗传操作便捷、生理与代谢背景清晰,被广泛用作模式微生物。但它同时也是重要的食品污染菌——耐高温、耐酸性环境,在果汁、动物饲料、乳制品、植物基产品及乳制品替代品中均有高污染率报道。另一方面,枯草芽孢杆菌在工业上价值不菲:作为益生菌改善动物健康,也用于农业副产物的发酵,因其能产生纤维素酶和植酸酶等关键酶类。
它在食品中的持久性和工业上的价值,很大程度上都依赖于内生芽孢的形成。产孢使枯草芽孢杆菌和其他产芽孢细菌能够抵御氧化应激、营养匮乏等恶劣条件,也能在巴氏杀菌等常规去污工艺中存活,并在整个生产链中持续存在,从而引发食品腐败和污染问题。然而,工业温度曲线往往是动态变化的,现有预测模型对此考虑不足。
研究方法
2.1 菌株
枯草芽孢杆菌BSB1是枯草芽孢杆菌168的遗传修饰衍生物,恢复了色氨酸合成能力(trp+)。该菌株由法国国家农业研究院(INRAE)茹伊昂若萨中心的Micalis研究所惠赠。该菌株是芽孢杆菌属中被研究最为深入的物种之一。菌株以1 mL分装的形式保存在脑心浸液(BHI,Biokar Diagnostics,博韦,法国)中,加入25%(体积/体积)甘油,浓度约为10⁷ CFU/mL,储存于−80°C。
每次制备工作菌液时,将1 mL保藏悬液接种到装有100 mL BHI的250 mL锥形瓶中,在37°C、100 rpm振荡条件下培养8 h。从该预培养物中取1 mL转入100 mL BHI肉汤的锥形瓶中,在相同培养条件下培养12 h。随后再进行一次100倍稀释,接种100 mL BHI,在相同条件下培养6 h。培养结束时最终细胞浓度约为10⁸ CFU/mL,芽孢浓度低于计数检测阈值(<2 log₁₀ CFU/mL)。采用毛细管法经80°C、10 min热处理后存活的细胞被认定为芽孢。向100 mL培养物中加入甘油(25% v/v),然后以1 mL冻存管分装储存于−80°C。
【数据】菌株:枯草芽孢杆菌BSB1;培养基:BHI;甘油浓度:25%(v/v);保藏浓度:约10⁷ CFU/mL;保藏温度:−80°C;预培养:37°C、100 rpm、8 h;第二次培养:37°C、12 h;第三次培养:37°C、6 h;最终细胞浓度:约10⁸ CFU/mL;芽孢检测阈值:<2 log₁₀ CFU/mL;热处理条件:80°C、10 min
2.2 培养条件与样品采集
从冻存管中取枯草芽孢杆菌BSB1的繁殖体细胞,接种至生物反应器(Minifors 2,Infors AG,博特明根,瑞士),最终浓度约为10³至10⁴ CFU/mL。生物反应器配备集成温度探头和pH电极(EasyFerm Plus PHI ARC 325,Hamilton,博纳杜兹,瑞士)。pH探头分辨率为0.01 pH单位,零点容差为0 ± 20 mV(约±0.34 pH单位),温度探头精度为±0.1°C。每次运行前使用pH 4.0和pH 7.0缓冲液校准pH测量。生物反应器内含3 L BHI,补充产孢盐(CaCl₂·H₂O,8.0 mg/L;MnSO₄·H₂O,1.5 mg/L)。搅拌速度维持250 rpm,通气速率1.5 L/min。整个实验过程中使用2 mol/L氢氧化钠(NaOH)或2 mol/L盐酸(HCl)将pH维持在7.0。温度根据表1所列条件进行调节。所有参数通过Eve生物过程平台软件(AG,博特明根,瑞士)维持在设定值。该系统可实时校正,确保生长和产孢动力学过程中参数的稳定性。
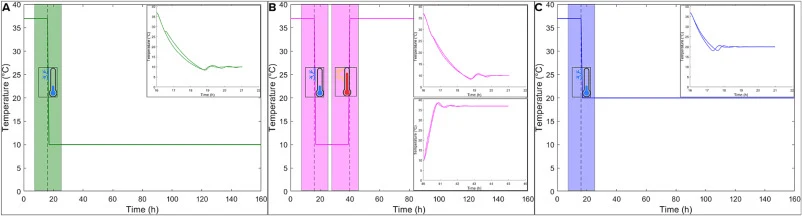
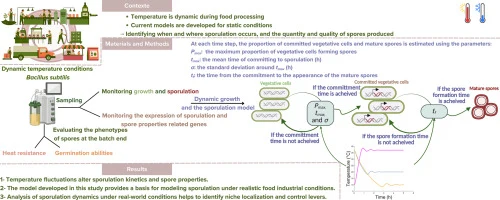
静态条件为37.0°C孵育150 h,称为“37°C”(表1)。为获得动态条件,在孵育16 h后(对应指数期末)施加温度转换。温度转换在生物反应器中并非严格瞬时完成,而是遵循动态降温/升温曲线(图1)。每批次的实际降温动力学均有记录;但表1所示值为最终达到的设定值。动态条件包括:i)“37–10°C”,即37.0°C孵育16 h,然后降温至10.0°C(低于枯草芽孢杆菌生长范围),直至总孵育时间达150 h;ii)“37–10–37°C”,即37°C孵育16 h,然后降温至10.0°C维持24 h,再回到37.0°C,直至总孵育时间达150 h;iii)“37–20°C”,即37°C孵育16 h,然后降温至20.0°C(亚最适温度,在枯草芽孢杆菌生长范围内),直至总孵育时间达150 h。
每种条件下,在特定时间间隔取2 mL样品用于细菌计数(总菌数和芽孢数)及基因表达分析。孵育期结束后立即从每批次收集2 L培养物并离心(8000 g,4°C,10 min)。细胞沉淀用无菌蒸馏水洗涤并再次离心(8000 g,4°C,10 min)。最后,将沉淀重悬于无菌蒸馏水中,以约10⁸ CFU/mL的浓度分装储存于4°C。在热处理和萌发试验前,4°C储存至少维持2个月。
【数据】生物反应器:Minifors 2;工作体积:3 L BHI;产孢盐:CaCl₂·H₂O 8.0 mg/L、MnSO₄·H₂O 1.5 mg/L;搅拌:250 rpm;通气:1.5 L/min;pH:7.0(2 mol/L NaOH或HCl调节);静态条件:37.0°C、150 h;温度转换时间点:孵育16 h后;降温至10.0°C;10.0°C维持24 h后回到37.0°C;或降温至20.0°C;取样体积:2 mL;离心:8000 g、4°C、10 min;储存浓度:约10⁸ CFU/mL;储存温度:4°C;储存时间:至少2个月
2.3 生长与产孢动力学的监测
定期从生物反应器中取2 mL样品以监测生长和产孢。样品在缓冲蛋白胨盐肉汤(PS;Clearline,Dominique Dutsher,法国)中系列稀释,涂布于脑心琼脂(BHA;Biokar Diagnostics,博韦,法国)。平板在37°C过夜孵育以计数总细胞。对总细胞和耐热细胞(认定为芽孢)进行计数。芽孢计数在采用毛细管法经80°C、10 min热处理后进行。芽孢计数的检测限为2 log₁₀ CFU/mL。
【数据】取样体积:2 mL;稀释液:缓冲蛋白胨盐肉汤(PS);培养基:脑心琼脂(BHA);总细胞计数孵育:37°C过夜;芽孢热处理:80°C、10 min;芽孢计数检测限:2 log₁₀ CFU/mL
2.3.1 生长与产孢的动力学模型
生长与产孢模型由两个模块组成。第一个模块描述繁殖体细胞的生长,第二个模块基于生长动力学描述产孢动力学。
#### 2.3.1.1 繁殖体细胞生长模型
繁殖体细胞生长遵循Kono(1968)的修正逻辑斯蒂模型,后经Rosso等(1996)改编,如式1所示:
(1)ln N(tᵢ) = ln N₀, tᵢ ≤ λ;ln{N_max/[1 + (N_max/N₀ − 1)exp(−μ_max(tᵢ − λ))]}, tᵢ > λ
其中:N₀为接种物浓度(CFU/mL),λ为迟滞期(h),μ_max为最大比生长速率(h⁻¹),N_max为繁殖体细胞最大浓度(CFU/mL)。具体而言,N_max对应稳定期达到的繁殖体细胞最大浓度。
【数据】模型:Kono(1968)修正逻辑斯蒂模型,经Rosso等(1996)改编;参数:N₀(接种物浓度,CFU/mL)、λ(迟滞期,h)、μ_max(最大比生长速率,h⁻¹)、N_max(繁殖体细胞最大浓度,CFU/mL)
#### 2.3.1.2 产孢模型
在整个孵育期间,繁殖体细胞具有时间依赖的产孢承诺概率P(tᵢ)。该概率由正态概率密度描述,以能够产孢的繁殖体细胞最大比例P_max加权(Gauvry等,2021)(式2):
(2)P(tᵢ) = P_max × (1/(σ√(2π))) × exp[−0.5 × ((tᵢ − t_max)/σ)²]
其中:P(tᵢ)为时间tᵢ时的产孢概率(h⁻¹),P_max为形成芽孢的繁殖体细胞最大比例(无量纲),t_max为繁殖体细胞最可能承诺产孢的时间(h),σ为t_max周围的标准差(h)。选择正态分布以代表群体内产孢时间的生物学变异,已有研究表明其能准确描述枯草芽孢杆菌的这一过程(Gauvry等,2021;Hafdane等,2025)。
一旦繁殖体细胞承诺产孢,完成分化为成熟芽孢需要一定时间(t_f)。基于Hilbert和Piggot(2004)先前的研究,我们假设37°C下产孢所需时间(t_f)为7 h。他们的研究表明,枯草芽孢杆菌芽孢形成在37°C下约需7 h,从产孢主转录调节因子Spo0A的激活开始,到母细胞释放芽孢结束。成熟芽孢定义为经80°C、10 min热处理后存活的细胞。基于这些假设,产孢动力学可由式3定义(Gauvry等,2021):
(3)S(tᵢ) = 0, tᵢ ≤ t_f;S(tᵢ₋₁) + [N(tᵢ − t_f) − S(tᵢ₋₁)]P(tᵢ − t_f), tᵢ > t_f
其中:N(tᵢ − t_f)为时间tᵢ − t_f时的繁殖体细胞浓度(CFU/mL),S(tᵢ₋₁)为时间tᵢ₋₁时的芽孢浓度(CFU/mL)。
【数据】模型:正态概率密度产孢模型(Gauvry等,2021);参数:P_max(最大产孢比例,无量纲)、t_max(最可能产孢时间,h)、σ(标准差,h);37°C下产孢完成时间t_f:7 h;成熟芽孢定义:80°C、10 min热处理后存活
研究结果
3.1 不同温度条件下的生长与产孢动力学
在恒定37°C条件下(图2A),产孢进展迅速,芽孢浓度达到约8 log₁₀ CFU/mL的最大水平。模型对实验数据拟合精度高,生长与产孢联合动力学的RMSE值为0.28。该条件下估计的参数及其标准差见表4。这些静态参数随后被用作模拟动态温度曲线下产孢动力学的基础(第2.3.4节)。
为模拟动态条件下的生长和产孢,实验中记录的实际温度动态被纳入考虑。温度转换并非瞬时完成,而是遵循逐渐降温曲线,如图1所示。从37.0°C到10.0°C的温度转换需要4.1 h,从10.0°C到37.0°C的转换需要1.4 h,从37.0°C到20.0°C的转换需要2.4 h达到稳定。
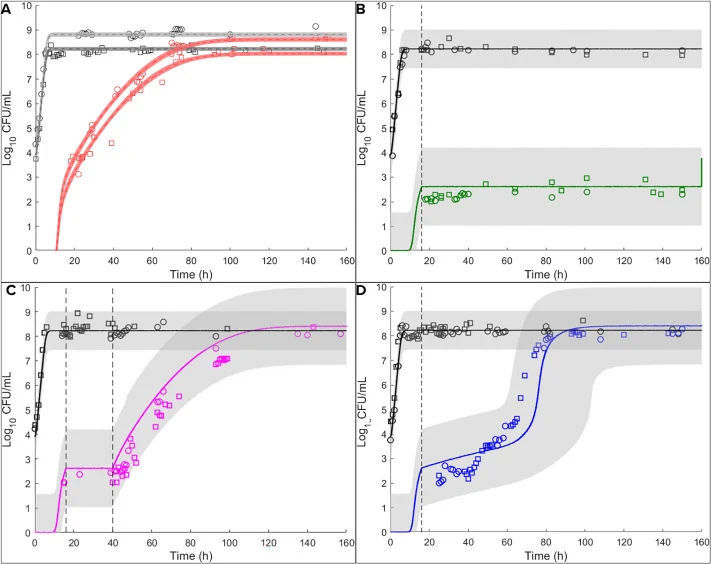
在第一个动态场景——37–10°C条件下(图2B),前16 h孵育期间生长和产孢与37°C条件相同。降温至10.0°C后,芽孢浓度达到约2.0 log₁₀ CFU/mL,并在整个孵育期间保持恒定。产孢被完全抑制,这与模型预测的10.0°C下产孢概率为零(P_max = 0)一致。繁殖体细胞浓度也保持稳定,表明10.0°C孵育未影响孵育期间细胞活力。
在第二个场景——37–10–37°C条件下(图2C),最初观察到与37–10°C条件相似的模式,降温阶段繁殖体细胞和芽孢浓度均保持稳定。然而,当温度回到37.0°C后,产孢恢复。产孢动力学与静态条件下观察到的密切匹配,但延迟约24 h。最终芽孢浓度达到8.0 log₁₀ CFU/mL。
在第三个动态场景——37–20°C条件下(图2D),与前两个动态条件一样,前16 h孵育期间生长和产孢最初遵循与静态37°C条件相同的趋势。温度转换至20.0°C后,芽孢形成减缓约40 h后恢复,最终在孵育80 h后达到约8 log₁₀ CFU/mL。这一延迟对应于20.0°C下延长的产孢时间,估计为58 h,而37.0°C下为7 h。在20.0°C下,估计的P_max为1.00,σ = 14.39 h,t_max = 74.64 h。
模型在动态条件下的预测性能通过生长与产孢联合动力学的RMSE和RE值进行评估(表5)。总体而言,所有测试条件下这两个指标均较低,证实了模型可靠再现实验数据的能力。在动态曲线中,37–20°C条件显示最高的RMSE值(表5),表明与37–10°C和37–10–37°C条件相比精度略低。尽管如此,估计的变异性涵盖了繁殖体细胞和芽孢的全部实验观察范围,表明模型充分代表了所有测试场景中观察到的生物学变异和温度依赖动力学。
【数据】静态37°C:芽孢最大浓度约8 log₁₀ CFU/mL,RMSE = 0.28;37→10°C转换时间:4.1 h;10→37°C转换时间:1.4 h;37→20°C转换时间:2.4 h;37–10°C条件:芽孢浓度约2.0 log₁₀ CFU/mL,P_max = 0;37–10–37°C条件:最终芽孢浓度8.0 log₁₀ CFU/mL,延迟约24 h;37–20°C条件:最终芽孢浓度约8 log₁₀ CFU/mL,延迟约40 h后恢复,80 h达最大;20°C下产孢时间58 h(vs 37°C下7 h);20°C下P_max = 1.00,σ = 14.39 h,t_max = 74.64 h
3.2 动态温度条件下产孢对产孢相关基因、酸应激和DNA损伤相关基因表达的影响
对于表达水平低于定量下限的样品,log₂(RNE)值使用对应基因的最低观测值进行填充,如材料与方法部分所述。该处理仅涉及基因表达数据集的一小部分,1484个目标基因表达值中有73个受影响(4.9%)。因此,整体PCA结构不太可能主要由填充驱动。尽管如此,对表达水平极低的基因相关结论仍谨慎解读。以下描述的PCA模式与ANOVA结果一起解读;因此,关于基因表达显著或非显著变化的陈述均指ANOVA比较。
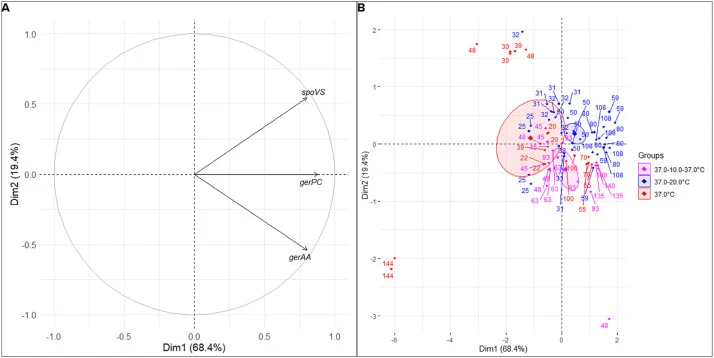
PCA显示第一主成分(Dim1)解释了总方差的72.9%,代表了产孢相关基因的一般激活梯度(图3)。所有基因均与Dim1正相关,表明该轴反映了产孢的整体转录参与。Dim2仅解释13.6%的方差,区分能力有限,未进一步解读。位于PCA左侧的样品对应于产孢基因的最低表达或无表达。对于所有这些样品,产孢基因的平均表达与初始样品(t₀)无显著差异。PCA的这一侧包括37°C参考条件下48 h前采集的样品、37–10°C条件的所有样品,以及37–10–37°C条件下40 h回到37°C前采集的样品。在37–20°C条件下,50 h前采集的大部分样品位于PCA左侧。然而,少数样品,如31和32 h采集的样品,也出现在对侧,表明该条件下早期培养物在产孢起始时表现出更高的转录异质性。
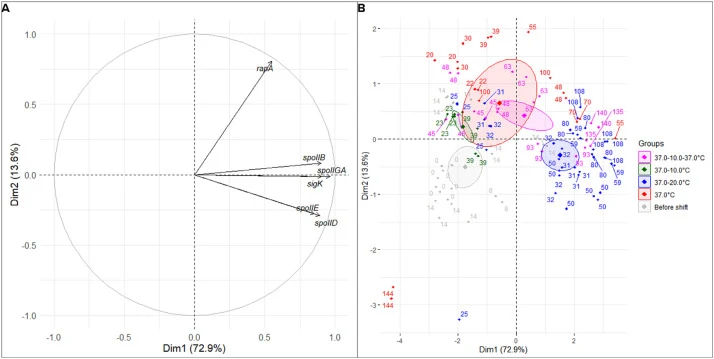
相反,位于PCA右侧的样品反映了所测产孢基因集的上调。37°C动力学的晚期样品(t > 48 h)属于该组,37–10–37°C条件下63 h后采集的样品(约第二次转换后24 h)也属于该组,表明转录延迟约15 h。在37–20°C条件下,产孢基因激活的最早迹象出现得更早,但存在一定变异性:虽然31–32 h采集的样品分布在PCA两侧,但明显的上调模式仅从50 h起才变得明显。在产孢晚期(144 h),37°C条件的样品倾向于回到左侧。这反映了芽孢形成完成后产孢基因的下调。该阶段的表达水平接近t₀时观察到的水平。对于应激和产孢调控相关基因disA、des和rsiO,在所有温度条件下其表达随时间主要保持下调,与t₀相比无显著增加(结果未显示)。
【数据】Dim1解释方差:72.9%;Dim2解释方差:13.6%;填充值比例:73/1484(4.9%);37–20°C条件早期异质性时间点:31和32 h;37–10–37°C条件转录延迟:约15 h;37–20°C条件下调模式明显时间:50 h后;产孢晚期时间点:144 h;应激基因:disA、des、rsiO均下调
3.3 芽孢特性
耐热性和萌发能力测试对不同温度条件下产生的枯草芽孢杆菌芽孢进行。然而,37–10°C条件未产生足够数量的芽孢用于可靠分析;仅收集到2.5 log₁₀ 芽孢/mL。因此,实验仅对37°C、37–10–37°C和37–20°C条件下获得的芽孢进行。
#### 3.3.1 耐热性
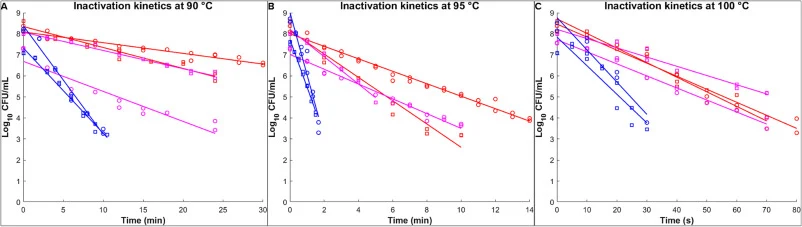
在90°C、95°C和100°C下研究芽孢的灭活动力学(图4)。存活曲线使用简化Weibull模型拟合。似然比检验确认将形状参数p固定为1.00不会对拟合质量产生负面影响。低RMSE值(0.13至0.45之间)表明对实验数据拟合良好。δ值的变化取决于所测试的灭活温度(90°C、95°C或100°C)和产孢条件(37°C、37–10–37°C和37–20°C)(图5)。统计分析(ANOVA及Tukey事后检验)显示,在90°C和95°C下,37–20°C条件下产生的芽孢的log₁₀ δ值显著低于……
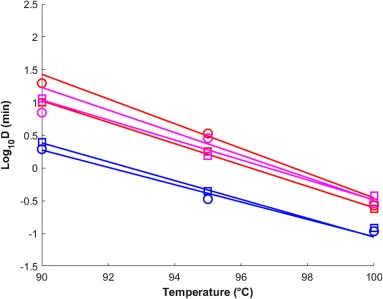
【数据】灭活温度:90°C、95°C、100°C;模型:简化Weibull模型,形状参数p = 1.00;RMSE范围:0.13–0.45;37–10°C条件芽孢收集量:2.5 log₁₀ 芽孢/mL(不足);统计方法:ANOVA + Tukey事后检验;90°C和95°C下37–20°C芽孢log₁₀ δ值显著降低
#### 3.3.2 萌发动力学
(原文该部分内容未在节选中完整呈现,以下为图表所涉信息)
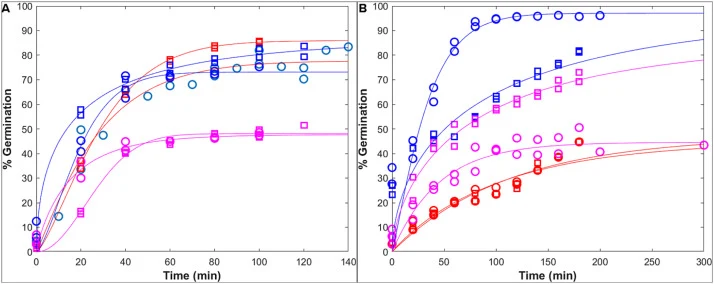
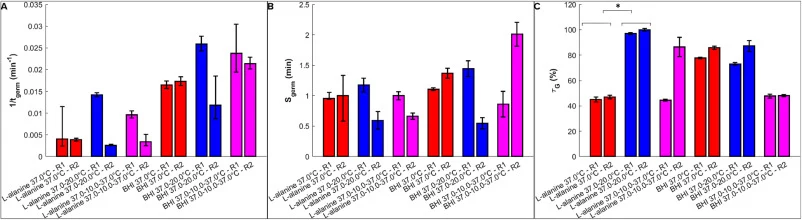
讨论与解读
本研究旨在探究温度波动如何影响枯草芽孢杆菌的产孢效率。结果显示,产孢效率在37°C最高,偏离该最适温度后下降。这与先前在恒定温度条件下以及pH变化研究中获得的发现一致。更重要的是,结果证明动态温度条件显著影响产孢动力学,且结果取决于温度是保持在生长允许范围内还是低于生长所需最低温度。
当孵育温度在37–10°C条件下转换至10.0°C时,产孢完全停止。在37–10–37°C条件下回到37.0°C后,产孢以与静态条件相当的动力学恢复,但延迟时间对应于10.0°C孵育的持续时间。这与Gauvry等(2021)的工作一致,他们报道在37–10–37°C场景下锥形瓶培养中产孢可以暂停后恢复。本研究在生物反应器控制条件下确认并进一步表征了这些动力学。相反,当温度在37–20°C条件下转换至20.0°C时——该温度允许生长但非最适——产孢并未停止,而是显著延缓。
编译者解读:该研究的亮点在于将产孢动力学模型从恒定温度拓展到动态温度场景,并耦合了转录组层面的验证。模型参数(P_max、t_max、σ、t_f)具有明确的生物学含义,便于在食品加工温度波动场景下直接应用。局限在于芽孢特性分析仅覆盖了耐热性和萌发两个维度,且37–10°C条件因芽孢产量不足未能纳入比较;此外,基因表达分析中4.9%的数据需填充处理,低表达基因的结论需谨慎对待。对合成生物学而言,该模型可作为底盘细胞产孢工艺优化的预测工具——通过设计温度曲线来调控芽孢产量与质量。
参考来源
期刊:Food Research International, 2026
DOI: 10.1016/j.foodres.2026.119616
DOI: 10.1016/j.foodres.2026.119616