来源:Stepwise Engineering of Yarrowia lipolytica for Microbial Production of the Flavor Sesquiterpene β-Caryophyllene(Food Bioscience)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
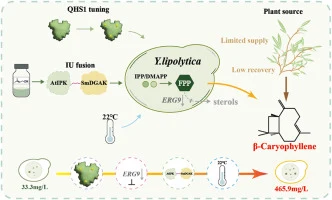
β-石竹烯是一种植物来源的挥发性倍半萜,广泛用作食品和化妆品中的风味成分,但植物提取受气候、种植周期和原料波动的制约,难以实现稳定规模化供应。本研究以解脂耶氏酵母为底盘,通过依次优化末端合成酶活性、前体分配、辅助前体供给和培养条件,将β-石竹烯摇瓶产量提升至465.9 mg/L。研究确定了末端合成酶性能、FPP分配和辅助前体供给三个有效工程靶点,为酵母基食品萜类生产提供了可参考的路线。
研究背景
β-石竹烯是一种双环倍半萜,存在于肉桂、丁香等植物中,具有特征性的丁香香气,已被美国食品药品监督管理局(FDA)批准用作风味剂和佐剂,在食品和化妆品行业有广泛应用。此外,它还被报道具有抗菌、镇痛、抗炎和抗肿瘤相关活性。目前β-石竹烯主要通过植物提取或化学合成获得。植物提取受气候、栽培时间和原料变异性限制,难以实现可扩展的稳定供应;化学合成则面临路线复杂和生产效率方面的挑战。微生物生物合成提供了一种可控的替代方案,尤其当途径酶和前体供给可以被系统优化时。本研究即在解脂耶氏酵母中建立β-石竹烯的微生物生产路线,并逐步优化影响产量的关键节点。
研究方法
2.1 菌株与质粒构建
大肠杆菌DH5α用于质粒构建。解脂耶氏酵母po1f作为底盘菌株用于工程菌株的构建。本研究使用的外源基因包括:来自黄花蒿(Artemisia annua)的β-石竹烯合酶基因(QHS1)、来自烟草(Nicotiana tabacum L.)的β-石竹烯合酶基因(TPS7)、来自拟南芥(Arabidopsis thaliana)的异戊烯基磷酸激酶基因(AtIPK)以及来自变形链球菌(Streptococcus mutans)的二酰甘油激酶基因(SmDAGK)。所有外源基因均针对解脂耶氏酵母表达进行了密码子优化,由生工生物(上海)合成。相应的氨基酸和核苷酸序列见Table S1。本研究中使用的所有引物列于Table S2,引物由生工生物合成。DNA片段通过聚合酶链式反应(PCR)使用KOD One™ PCR Master Mix(Toyobo)获得。本研究中使用的限制性内切酶购自New England Biolabs。质粒构建使用ClonExpress Ultra One Step Cloning Kit(Vazyme)。含有两种酶的不同方向和不同柔性连接子的融合构建体使用相同的克隆程序组装。目标基因通过同源整合(HR)整合到菌株基因组中,使用的同源臂均为解脂耶氏酵母的内源基因。使用HR介导的CRISPR/Cas9基因组编辑系统截短erg9启动子。使用CRISPOR(https://crispor.gi.ucsc.edu/)选择有效的gRNA序列。感受态酵母细胞的制备和转化菌株的构建按照Frozen-EZ Yeast Transformation II™ Kit(Zymo Research)的说明进行。本研究中使用的所有工程菌株列于Table 1。本研究中构建的所有质粒列于Table S4。对于每个质粒,该表提供了质粒名称、骨架、插入基因或编辑盒、启动子、终止子、筛选标记、基因组靶点/整合位点(如适用)、对应的工程菌株或应用以及来源/构建信息。
【数据】菌株:大肠杆菌DH5α、解脂耶氏酵母po1f;培养基:原文未详述;温度:原文未详述;时间:原文未详述;数值:原文未详述
2.2 培养基与培养条件
LB培养基由10 g/L胰蛋白胨、5 g/L酵母提取物和10 g/L NaCl组成。将目标质粒转化到大肠杆菌DH5α中,将转化菌株在含100 μg/mL氨苄青霉素的LB培养基中于37°C培养。解脂耶氏酵母在含20 g/L葡萄糖、10 g/L酵母提取物和20 g/L蛋白胨的YPD培养基中培养。使用SD-Leu培养基筛选阳性工程菌株。将转化的阳性菌株接种到1 mL YPD培养基中,在28°C、140 rpm摇床条件下培养24小时制备种子培养液。随后,将种子培养液接种到5 mL YPD培养基中,初始吸光度(600 nm)为0.1。在培养第24小时向培养基中加入5%正十二烷,在28°C、140 rpm摇床条件下培养5天。
【数据】培养基:LB(10 g/L胰蛋白胨、5 g/L酵母提取物、10 g/L NaCl)、YPD(20 g/L葡萄糖、10 g/L酵母提取物、20 g/L蛋白胨)、SD-Leu;抗生素:100 μg/mL氨苄青霉素;温度:37°C(大肠杆菌)、28°C(酵母);时间:24 h(种子液)、5天(发酵);转速:140 rpm;初始OD600:0.1;正十二烷:5%;接种体积:1 mL、5 mL
2.3 β-石竹烯合酶定向进化
将QHS1蛋白序列提交至NCBI进行同源序列预测以鉴定保守氨基酸。使用在线预测网站Premuse(https://www.elabcaas.cn/pird/premuse.html)鉴定蛋白质进化过程中发生突变的氨基酸。
【数据】菌株:原文未详述;浓度:原文未详述;温度:原文未详述;时间:原文未详述;数值:原文未详述
2.4 分子对接与可视化
QHS1、SmDAGK^S47A-L124A和AtIPK^S270P-A272R的氨基酸序列从NCBI获得。使用AlphaFold3蛋白质结构数据库(https://alphafold.ebi.ac.uk/)预测QHS1的三维结构。QHS1^E5Q-H14N-R499C和四种融合蛋白的三维结构通过AlphaFold Server(https://alphafoldserver.com/)获得。底物法尼基焦磷酸的三维结构从PubChem(https://pubchem.ncbi.nlm.nih.gov/)下载。使用AutoDock Vina进行酶与底物之间的分子对接。使用PyMOL可视化分子对接结果和融合蛋白三维结构。
【数据】菌株:原文未详述;浓度:原文未详述;温度:原文未详述;时间:原文未详述;数值:原文未详述
2.5 分析方法
生物量以细胞干重(DCW)测定。从培养基中收集的样品在4°C、12,000 g条件下离心2分钟。随后移除上清液,剩余生物量使用真空冷冻干燥机冻干。为提取β-石竹烯,将酵母培养液收集到离心管中,在4°C、12,000 g条件下离心5分钟,收集含有β-石竹烯的上层正十二烷,并通过0.22 μm滤膜过滤。β-石竹烯的产量使用配备HP-5ms Ultra Inert(15 m × 0.25 mm × 0.25 μm)GC柱的Agilent Technologies 7890B–7000C气相色谱仪进行定量。使用电离能为70 eV的电子电离检测器进行分析。GC-MS分析在以下程序下进行:载气为氦气,流速1.0 mL/min。初始柱温在120°C保持5分钟,然后以2°C/min升至125°C并保持1分钟,再在3.5分钟内升至300°C,在最终温度保持3分钟。不同浓度的β-石竹烯标准溶液使用上述相同方法分析。建立峰面积与浓度之间的相关曲线,根据峰面积计算β-石竹烯产量滴度。
【数据】离心条件:12,000 g、2 min(生物量)、12,000 g、5 min(产物提取);温度:4°C;滤膜:0.22 μm;色谱柱:HP-5ms Ultra Inert(15 m × 0.25 mm × 0.25 μm);电离能:70 eV;载气:氦气;流速:1.0 mL/min;柱温程序:120°C保持5 min → 2°C/min升至125°C保持1 min → 3.5 min升至300°C保持3 min
研究结果
3.1 β-石竹烯合酶的选择
FPP是倍半萜生物合成的直接前体。在本研究中,β-石竹烯滴度被用作主要指标,以评估不同工程策略是否改善了FPP的有效供给和上游IPP/DMAPP池。在解脂耶氏酵母中,β-石竹烯由FPP通过β-石竹烯合酶的作用产生。先前的研究已经鉴定了两种能够催化该反应的酶:来自烟草的TPS7和来自黄花蒿的QHS1(图1A)。为在解脂耶氏酵母中建立β-石竹烯生物合成路线,我们使用了本实验室开发的MVA途径优化基础菌株L05。将TPS7和QHS1分别整合到L05的POX5位点,生成菌株Y1和Y2。基于本课题组先前的结果,添加5%十二烷对宿主生长影响很小,因此该条件被用于产物捕获。两种酶均能实现β-石竹烯生产,滴度分别为14.7 mg/L和33.3 mg/L(图1B)。菌株Y2的β-石竹烯产量比Y1高126%,表明QHS1在该底盘中的效果优于TPS7。与这一结果一致,QHS1被选用于后续工程改造。该结果还表明,末端合酶的选择对该宿主中的途径性能有实质性影响,因此QHS1被用作后续优化步骤的起始酶。
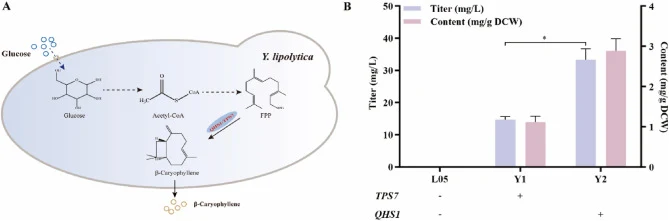
【数据】菌株:Y1(TPS7)、Y2(QHS1)、基础菌株L05;整合位点:POX5;十二烷浓度:5%;β-石竹烯滴度:Y1 14.7 mg/L、Y2 33.3 mg/L;Y2比Y1提高:126%
3.2 QHS1的半理性诱变
在确定QHS1是更有效的合酶后,我们检查了在修饰上游代谢之前其性能是否可以进一步提高。基于自然序列进化,使用Premuse预测候选突变位点。当突变的预测进化选择概率相对于野生型残基超过0.5时,选择该残基进行变体构建(Table S3)。在所得变体中,E5Q、H14N、M214F和R499C各自使β-石竹烯产量提高超过50%(图2A)。为进一步解释这些效应,使用AutoDock Vina和PyMOL进行了分子对接和结构可视化。分析表明,残基T204在建模复合物中与FPP形成氢键(图2B)。与该模型一致,T204P突变体显示β-石竹烯产量大幅下降。突变酶与FPP的对接分析显示,该变体中配体与酶之间的氢键丢失(Fig. S1),支持T204对有效底物相互作用和催化功能重要的观点。随后我们组合了与最强活性增益相关的三个突变位点,以测试它们的效应是否可以进一步整合。残基5、14和499处突变的成对组合均不同程度地降低了β-石竹烯产量(图2D)。相比之下,三突变体显示产量略有增加。结构分析表明,该变体与FPP形成了额外的氢键(图2C),这可能有助于更有利的酶-底物相互作用。类似的半理性策略也曾用于提高查尔酮合酶活性,其中复合物稳定性的增强与(2S)-柚皮素产量的增加相关。这些结果表明,QHS1在解脂耶氏酵母中的性能可以通过靶向诱变改善,尽管有益单突变的效应在组合时并非加和的。改进的合酶背景随后被用于评估途径层面对β-石竹烯生产的限制。
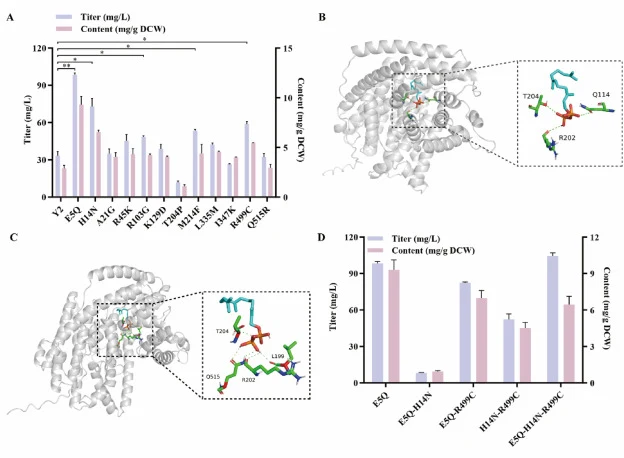
【数据】突变位点:E5Q、H14N、M214F、R499C、T204P;单突变产量提升:>50%(E5Q、H14N、M214F、R499C);T204P:产量大幅下降;三突变体:产量略有增加;成对组合:产量不同程度降低;选择概率阈值:>0.5
3.3 乙酰辅酶A和NADPH供给模块的评估
MVA途径同时需要乙酰辅酶A和NADPH,使前体和辅因子供给成为下一轮工程的合理靶点。因此,我们测试了增加胞质乙酰辅酶A可用性或增强NADPH再生是否能进一步支持β-石竹烯生产。乙醛酸循环通过包括柠檬酸合酶和苹果酸合酶相关步骤在内的反应,将乙酰辅酶A利用与C4有机酸形成连接起来。相应地,MLS1和CIT2先前已被评估为解脂耶氏酵母中重定向乙酰辅酶A衍生碳通量的分支点靶点。据报道,两个基因CIT1和CIT2在该酵母中编码具有柠檬酸合酶活性的蛋白质,表明修改任一位点可以减弱柠檬酸形成能力,而不一定消除细胞总柠檬酸合酶活性。ATP-柠檬酸裂解酶(ACL1)和乙酰辅酶A合成酶(ACS)可以平行地促进胞质乙酰辅酶A的形成。对于NADPH供给,戊糖磷酸途径中的葡萄糖-6-磷酸脱氢酶和磷酸葡萄糖酸脱氢酶已被报道可增加细胞内还原力。为区分减弱乙醛酸循环相关不同反应的效果,我们分别构建了ΔCIT2菌株Y3和ΔMLS1菌株Y4。我们首先评估了单独缺失而非组合缺失,从而可以区分其靶标特异性效应。菌株Y4产生202.3 mg/L β-石竹烯,而菌株Y3则显示产量降低且生长受损(图3B)。这些对比表型表明,结果取决于特定的代谢靶点,而非乙醛酸循环减弱本身。由于ΔCIT2背景中仍存在另一个编码柠檬酸合酶的基因,CIT2的缺失预期是减弱而非完全消除细胞柠檬酸形成能力。Y3中β-石竹烯产量和生长的同时降低反而表明中心碳分配受到更广泛的干扰。相比之下,MLS1的缺失直接限制了苹果酸合酶相关步骤,在此测试的遗传背景中是两种干预中更有效的一种。因此,这些结果表明其效果强烈依赖于所选靶点和菌株背景。为确定Y3表型是否主要源于胞质乙酰辅酶A不足,在ΔCIT2背景中过表达ACL1和ACS,生成菌株Y5。Y5中β-石竹烯产量未恢复,表明CIT2缺失的效应不能仅由该供给模块可纠正的乙酰辅酶A短缺来解释。一种合理的解释是CIT2缺失改变了碳在柠檬酸相关代谢、乙醛酸循环、生物量形成和乙酰辅酶A依赖性生物合成之间的分配。同时,在菌株Y6中共过表达YlG6PD和YlPGD并未改善β-石竹烯产量(图3A-B)。类似的结果已在角鲨烯和脂质生产中报道,其中加强该NADPH再生途径并未增强目标合成。在我们的系统中,这些数据表明增加戊糖磷酸途径衍生的NADPH在测试条件下不是提高β-石竹烯生产的有效杠杆。这些结果表明,改善前体供给在所测试的策略中效果并不等同。虽然增强乙酰辅酶A相关代谢在一种遗传背景中是有益的,但增加NADPH再生在本文所用条件下并未进一步改善β-石竹烯生产。
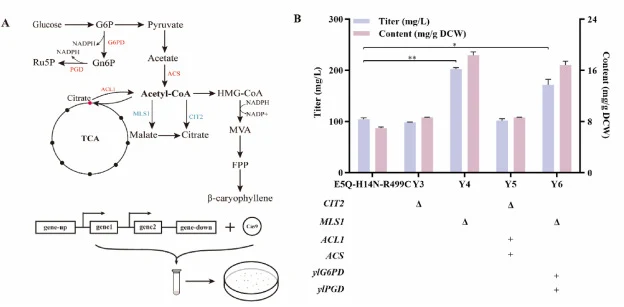
【数据】菌株:Y3(ΔCIT2)、Y4(ΔMLS1)、Y5(ΔCIT2+ACL1+ACS过表达)、Y6(YlG6PD+YlPGD共过表达);β-石竹烯滴度:Y4 202.3 mg/L;Y3:产量降低且生长受损;Y5:产量未恢复;Y6:产量未改善
3.4 减少FPP向角鲨烯合成的消耗
在评估乙酰辅酶A和NADPH供给模块后,我们将注意力转向减少FPP的竞争性消耗。ERG9编码角鲨烯合酶,催化FPP向角鲨烯的转化,是甾醇生物合成的第一个 committed step。为减少FPP向角鲨烯的消耗,我们截短了erg9启动子以降低其表达(图4A)。使用HR介导的CRISPR/Cas9系统进行启动子截短,通过CRISPOR选择有效gRNA序列。我们将截短的erg9启动子引入Y2背景,评估其对β-石竹烯生产的影响。结果显示,erg9启动子截短显著提高了β-石竹烯产量(图4B)。与测试的NADPH供给模块相比,ERG9下调通过减少FPP向天然角鲨烯生物合成的消耗,更有效地改善了产量。
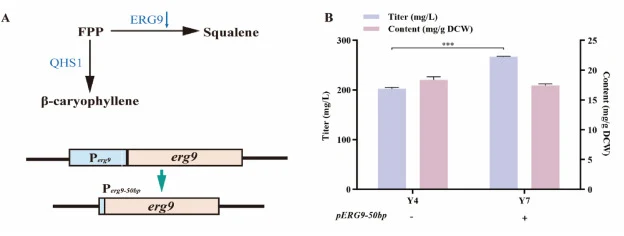
【数据】基因:ERG9(角鲨烯合酶);方法:启动子截短;编辑系统:HR介导的CRISPR/Cas9;结果:β-石竹烯产量显著提高;对比:优于NADPH供给模块
3.5 异戊烯醇利用途径的引入与融合表达优化
在减少FPP竞争性消耗后,我们进一步探索了辅助前体IPP/DMAPP的供给。异戊烯醇利用途径(IU途径)可通过两步酶促反应将异戊烯醇转化为IPP/DMAPP。我们在Y7菌株中表达了SmDAGK^S47A-L124A和AtIPK^S270P-A272R的不同融合形式(图5A)。结果显示,IU途径的引入改善了β-石竹烯生产。不同融合形式的比较表明,融合表达SmDAGK^S47A-L124A和AtIPK^S270P-A272R进一步提高了其贡献(图5)。随后,我们测试了不同浓度异戊烯醇的添加效果。结果表明,在测试范围内,添加不同浓度异戊烯醇对β-石竹烯生产有显著影响(图6)。
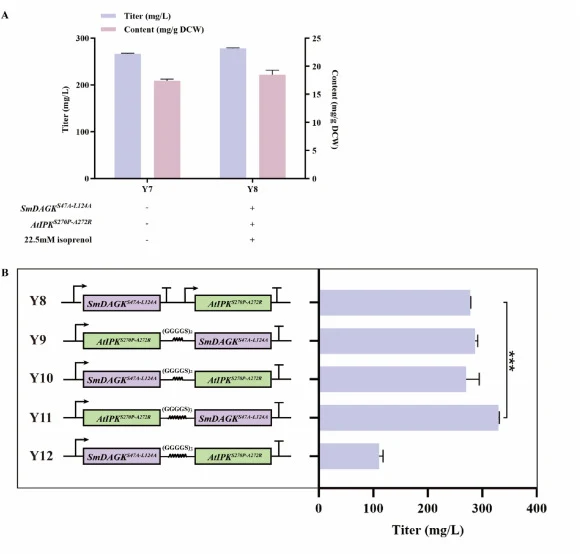
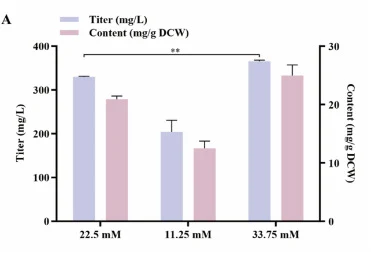
【数据】菌株:Y7;基因:SmDAGK^S47A-L124A、AtIPK^S270P-A272R;途径:IU途径;底物:异戊烯醇;结果:融合表达进一步提高产量;异戊烯醇浓度效应:显著(p < 0.01)
3.6 发酵条件优化
最后,我们优化了发酵条件以进一步提高β-石竹烯产量。在Y11菌株中测试了不同培养温度对β-石竹烯生产的影响(图7A)。结果显示,在22°C培养时β-石竹烯产量显著高于其他测试温度(图7B)。在摇瓶培养中,最终β-石竹烯滴度达到465.9 mg/L。
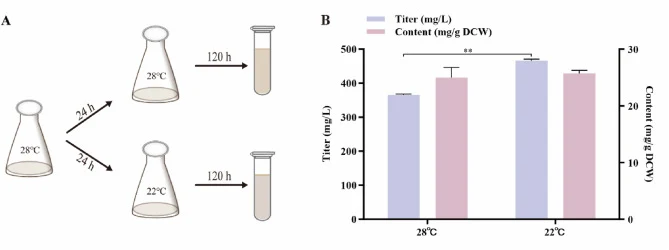
【数据】菌株:Y11;培养温度:22°C(最优);最终β-石竹烯滴度:465.9 mg/L(摇瓶培养);显著性:p < 0.01
讨论与解读
本研究通过依次优化末端合酶性能、FPP分配、辅助IPP/DMAPP供给和培养条件,提高了解脂耶氏酵母中β-石竹烯的微生物产量。QHS1优化、ERG9下调和IU途径配置各自在工程菌株背景中贡献了产量提升,而所测试的NADPH供给模块未提供额外益处。在测试范围内选择最佳异戊烯醇添加水平,随后在22°C培养,将摇瓶培养中最终β-石竹烯滴度进一步提高至465.9 mg/L。这些发现为风味倍半萜β-石竹烯提供了一条明确的微生物生产路线,并确定了进一步开发酵母基食品相关萜类生产的实用干预点。
编译者解读:该研究的方法论价值在于其"逐步排除"策略——先固定末端酶,再依次测试前体供给、竞争支路和辅助前体,每步以滴度为唯一读数,逻辑清晰。ERG9启动子截短而非敲除的选择值得借鉴,既降低FPP分流又避免甾醇缺陷。局限在于产量仍处摇瓶水平(465.9 mg/L),且NADPH模块无效提示氧化还原平衡可能不是限速步骤。IU途径依赖外源异戊烯醇添加,成本与补料策略是放大时的关键变量。
参考来源
期刊:Food Bioscience, 2026
DOI: 10.1016/j.fbio.2026.110048
DOI: 10.1016/j.fbio.2026.110048