来源:Metabolic engineering of Escherichia coli for efficient production of l-homoserine from sugarcane molasses(Bioresource Technology)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
L-高丝氨酸是多种高价值化合物的关键平台分子,全球市场需求持续增长,但工业生物合成长期受制于原料成本高、依赖质粒表达系统以及碳源利用效率不足。本研究系统改造大肠杆菌,引入鼠伤寒沙门氏菌蔗糖代谢基因簇赋予蔗糖利用能力,通过染色体整合外排转运蛋白构建无质粒、非营养缺陷型菌株,并借助转录组分析锁定全局调控因子arcA,最终实现葡萄糖、果糖和蔗糖的共利用。以未处理甘蔗糖蜜为碳源,5 L生物反应器中L-高丝氨酸滴度达81.88 g/L;以预处理糖蜜为碳源则达97.91 g/L,为目前非粮碳源报道的最高水平。
研究背景
L-高丝氨酸是一种四碳β-羟基-α-氨基酸,在农业、化工和医药领域均有应用,可作为L-甲硫氨酸、L-苏氨酸和L-赖氨酸等饲料氨基酸的前体。它还是广谱除草剂L-草铵膦合成的关键手性前体,其衍生物N-酰基高丝氨酸内酯具有免疫调节活性,亚精胺则在抗衰老、诱导自噬和认知保护中发挥作用。据QYResearch统计与预测,全球工业级L-高丝氨酸市场将从2025年的15.01亿美元增长至2032年的27.04亿美元,复合年增长率9%。巨大的市场潜力使L-高丝氨酸的生产受到广泛关注。然而,高原料成本、对质粒系统的依赖以及碳源利用效率不理想,仍制约着其工业生物合成。甘蔗糖蜜富含蔗糖,价格低廉,是理想的替代碳源,但野生型大肠杆菌缺乏蔗糖同化系统,无法直接利用蔗糖。本研究即针对这一瓶颈,对大肠杆菌进行系统代谢工程改造。
研究方法
2.1 菌株与质粒
本研究使用的所有菌株与质粒列于表1。质粒构建采用本实验室常规保存的大肠杆菌DH5α。以先前构建的菌株HZ23作为出发菌株(Zhao et al., 2026)。
【数据】菌株:大肠杆菌DH5α、HZ23;质粒:原文列于表1,具体未详述;温度:原文未详述;时间:原文未详述
2.2 基因编辑
出发菌株通过CRISPR-Cas9系统进行迭代基因改造。由pTarget质粒转录的sgRNA与pCas质粒表达的Cas9蛋白结合,识别并切割靶基因。基因敲除与敲入通过同源重组介导的修复实现。pCas和pTarget质粒采用化学转化法导入宿主菌。阳性突变体经PCR扩增验证,质粒消除后获得工程菌株。详细实验流程见先前研究(Wang et al., 2024)。鼠伤寒沙门氏菌scrKYAB基因簇序列从NCBI检索,针对大肠杆菌进行密码子优化,由北京擎科生物合成。基因合成时在scrK和scrYAB操纵子上游添加强启动子P trc。PCR扩增、酶切和连接所用酶均购自南京诺唯赞生物。
【数据】系统:CRISPR-Cas9;质粒:pCas、pTarget;启动子:P trc;基因簇:scrKYAB(鼠伤寒沙门氏菌来源,密码子优化);验证方法:PCR扩增;供应商:擎科生物(北京)、诺唯赞(南京)
2.3 摇瓶发酵
单菌落从琼脂平板培养后接种至含10 mL LB培养基(10 g/L NaCl、10 g/L胰蛋白胨、5 g/L酵母提取物)的试管中,37 ℃培养12 h。随后将种子培养液以2%接种比例转接至含50 mL改良MS培养基的500 mL摇瓶中。摇瓶于33 ℃、220 rpm振荡培养箱中培养30 h或36 h。所有摇瓶实验均设三个平行,结果以平均值±标准差表示。改良MS培养基含17 g/L (NH4)2SO4、4 g/L酵母提取物、1 g/L KH2PO4、1 g/L MgSO4、2 g/L甜菜碱,以及1 mL金属离子溶液(每升含5 g FeSO4、5 g MnSO4和5 g ZnSO4)。碳源根据实验需求添加:40 g/L蔗糖、40 g/L葡萄糖与蔗糖混合糖(GS,8:40,模拟SM的天然糖组成)、40 g/L葡萄糖、果糖与蔗糖混合糖(GFS,8:1:40,模拟SM的天然糖组成),或40 g/L SM。此外,每个摇瓶添加1 g/L CaCO3以维持pH稳定。根据需要补充氨苄青霉素(100 μg/mL)和异丙基-β-D-1-硫代吡喃半乳糖苷(IPTG,1 mM)。SM购自聊城茂丰商贸有限公司(山东),总糖含量50%(w/w),粗灰分11%(w/w),水分26%(w/w),其他成分占13%(w/w)。HPLC分析显示SM中葡萄糖、果糖和蔗糖的质量比为8:1:40,总糖占SM质量的49%。使用真空干燥箱(型号VD23,BINDER GmbH,图特林根,德国)去除水分,测得水分含量为24%。这些结果与供应商检测报告基本一致。
【数据】培养基:LB(10 g/L NaCl、10 g/L胰蛋白胨、5 g/L酵母提取物)、改良MS(17 g/L (NH4)2SO4、4 g/L酵母提取物、1 g/L KH2PO4、1 g/L MgSO4、2 g/L甜菜碱、1 mL金属离子溶液);温度:37 ℃(种子)、33 ℃(发酵);时间:12 h(种子)、30或36 h(发酵);转速:220 rpm;接种比例:2%;装液量:50 mL/500 mL;碳源:40 g/L蔗糖/GS(8:40)/GFS(8:1:40)/SM;CaCO3:1 g/L;氨苄青霉素:100 μg/mL;IPTG:1 mM;SM总糖:50%(w/w);粗灰分:11%(w/w);水分:26%(w/w,原始),24%(w/w,干燥后);糖质量比(葡萄糖:果糖:蔗糖):8:1:40;总糖占SM质量:49%
2.4 5 L生物反应器放大发酵
补料分批培养在5 L生物反应器(Biotech-5BG,宝兴生物设备工程有限公司,上海)中进行。菌株在改良胰蛋白胨-酵母提取物(TY)培养基中于33 ℃培养,初始工作体积2.2 L。通气量维持4 NL/min,溶解氧(DO)通过自动调节搅拌转速控制,最大转速800 rpm。pH通过自动补加14%氨水溶液稳定控制在6.8 ± 0.02。间歇补加高浓度碳源溶液(700 g/L),维持残糖浓度在0–2 g/L范围内。改良TY培养基含17 g/L (NH4)2SO4、5 g/L酵母提取物、10 g/L胰蛋白胨、1 g/L KH2PO4、1 g/L MgSO4、2 g/L甜菜碱,以及1 mL金属离子溶液(每升含5 g FeSO4、5 g MnSO4和5 g ZnSO4)。碳源根据实验需求添加:40 g/L蔗糖、40 g/L未处理SM或40 g/L预处理SM。
【数据】反应器:5 L(Biotech-5BG);温度:33 ℃;初始体积:2.2 L;通气量:4 NL/min;搅拌转速:最大800 rpm;pH:6.8 ± 0.02(14%氨水自动补加);补料碳源浓度:700 g/L;残糖:0–2 g/L;培养基:改良TY(17 g/L (NH4)2SO4、5 g/L酵母提取物、10 g/L胰蛋白胨、1 g/L KH2PO4、1 g/L MgSO4、2 g/L甜菜碱、1 mL金属离子溶液);碳源:40 g/L蔗糖/未处理SM/预处理SM
2.5 分析方法
细胞生物量(OD600)使用紫外-可见分光光度计(UV-1600,美谱达仪器有限公司,上海)在600 nm处测定吸光度。高效液相色谱(HPLC)(Agilent 1260 Infinity II,CA,美国)用于定量L-高丝氨酸、各种糖和有机酸。L-高丝氨酸采用邻苯二甲醛柱前衍生化,使用反相C18色谱柱分析(Li et al., 2017)。葡萄糖、果糖、蔗糖和有机酸在ChromCore Sugar-10H色谱柱(6 μm,300 mm × 7.8 mm,纳谱分析技术(苏州)有限公司)上分离。柱温维持35 ℃,以5 mM H2SO4为流动相,流速0.6 mL/min。有机酸使用紫外检测器在200 nm处检测,葡萄糖、果糖和蔗糖使用示差折光检测器测定,检测池温度35 ℃。其他氨基酸浓度使用LA8080氨基酸分析仪(日立,东京,日本)测定,氨基酸标准溶液购自日立(日立H型混合氨基酸标准品)用于定量校准。
【数据】OD600:600 nm(UV-1600);HPLC:Agilent 1260 Infinity II;L-高丝氨酸:邻苯二甲醛柱前衍生化,反相C18柱;糖和有机酸:ChromCore Sugar-10H柱(6 μm,300 mm × 7.8 mm);柱温:35 ℃;流动相:5 mM H2SO4;流速:0.6 mL/min;有机酸检测:200 nm紫外;糖检测:示差折光,检测池35 ℃;氨基酸分析仪:LA8080(日立)
2.6 转录组分析
补料分批发酵在5 L生物反应器中以蔗糖为底物于33 ℃进行。发酵过程中在24 h、36 h和60 h收集细菌样品。培养液在8000 r/min、4 ℃离心10 min收集菌体。用ddH2O重悬并再次离心后,菌体立即在液氮中速冻1 h,随后于−80 ℃保存。转录组测序和生物信息学分析由北京擎科生物商业化完成。总RNA使用Freezol试剂(诺唯赞,南京)提取。Agilent 2100 Bioanalyzer(Agilent Technologies,Santa Clara,CA,美国)用于评估RNA完整性。选择RNA完整性指数(RIN)≥ 7的合格样品进行后续文库构建。使用Ribo-Zero Gold Kit去除核糖体RNA,按照制造商方案使用TruSeq Stranded mRNA Library Prep Kit构建链特异性cDNA文库。严格质控后,在Illumina HiSeqTM 2500平台上进行150 bp双端测序(PE150),生成高质量clean reads。每个实验组制备三个生物学重复。
【数据】温度:33 ℃;取样时间点:24 h、36 h、60 h;离心:8000 r/min、4 ℃、10 min;液氮速冻:1 h;保存:−80 ℃;RNA提取试剂:Freezol;RIN阈值:≥ 7;测序平台:Illumina HiSeqTM 2500;读长:150 bp双端(PE150);生物学重复:3个
2.7 实时定量PCR
总RNA使用Freezol试剂(诺唯赞,南京)提取。使用HiScript III RT SuperMix for qPCR(+gDNA wiper)(诺唯赞,南京)进行逆转录合成互补cDNA。实时定量PCR(RT-qPCR)使用ChamQ Universal SYBR qPCR Master Mix(诺唯赞,南京)进行,以16S rRNA作为内参基因。目标基因相对转录水平通过2-ΔΔCT方法计算。热图基于−ΔΔCT生成。RT-qPCR所用引物列于补充表S1。
【数据】RNA提取试剂:Freezol;逆转录试剂盒:HiScript III RT SuperMix for qPCR(+gDNA wiper);qPCR试剂:ChamQ Universal SYBR qPCR Master Mix;内参基因:16S rRNA;计算方法:2-ΔΔCT;引物:补充表S1
2.8 磷酸三钙、硫酸和活性炭(TCPHAC)预处理SM
SM用等体积自来水稀释,5000 × g离心10 min,收集上清。用5 mol/L NaOH调节pH至7.0,加入2%(w/v)磷酸三钙,100 ℃加热5 min。冷却至室温后,再次离心(5000 × g,10 min),取上清液(原文此处截断,后续步骤未详述)。
【数据】稀释:等体积自来水;离心:5000 × g、10 min;pH调节:7.0(5 mol/L NaOH);磷酸三钙:2%(w/v);加热:100 ℃、5 min;二次离心:5000 × g、10 min
研究结果
3.1 Scr基因簇多拷贝整合增强蔗糖同化
蔗糖是甘蔗糖蜜(SM)的主要糖组分(Zhang et al., 2020)。由于缺乏蔗糖同化系统,野生型大肠杆菌MG1655无法摄取和利用蔗糖(Stephens et al., 2024)。而来自鼠伤寒沙门氏菌的Scr途径使大肠杆菌能够在蔗糖上快速生长并有效促进产物合成(Jin et al., 2025; Stephens et al., 2024)。在该途径中,蔗糖通过蔗糖特异性外膜孔蛋白(由scrY编码)从胞外进入周质空间。随后,蔗糖通过周质中依赖PEP的磷酸转移酶系统(PTS)转运至细胞质。具体而言,蔗糖特异性EIIBCSuc转运蛋白(由scrA编码)利用来自PEP的磷酸基团促进蔗糖磷酸化,从而将蔗糖转化为蔗糖-6-磷酸(图2A)。随后,蔗糖-6-磷酸被蔗糖-6-磷酸水解酶(由scrB编码)裂解为葡萄糖-6-磷酸和果糖。葡萄糖-6-磷酸直接进入糖酵解途径,而果糖由果糖激酶(由scrK编码)磷酸化为果糖-6-磷酸后进入EMP途径。此外,该途径还包含一个蔗糖特异性阻遏蛋白(由scrR编码)(图2A)(Reid & Abratt, 2005)。scrKYAB基因簇包含两个独立的转录单元scrK和scrYAB,两个转录单元均受scrR基因转录抑制(图2A)(Cowan et al., 1991)。为消除这种抑制并促进蔗糖高效摄取,将P trc-scrK-P trc-scrYAB表达盒整合到先前构建的L-高丝氨酸生产菌HZ23(Zhao et al., 2026)的efeU位点,获得HS1菌株。以蔗糖为唯一碳源在500 mL摇瓶中发酵30 h后,菌株HS1/p99A rhtB产生2.54 g/L L-高丝氨酸(图2B)。同时,其蔗糖消耗速率大幅提高(图2C),从而促进了蔗糖摄取和胞内转化为L-高丝氨酸。相比之下,对照菌株HZ23/p99A rhtB仅产生0.59 g/L滴度,生物量(OD600)为4.16(图2B)。所获得的生物量和L-高丝氨酸产量可能源于培养基中蔗糖自发水解为葡萄糖和果糖(Wolfenden & Yuan, 2008)。为进一步促进蔗糖的摄取和利用,在HS1菌株中逐步增加P trc-scrK-P trc-scrYAB表达盒的拷贝数。结果,菌株HS2/p99A rhtB(两个拷贝的P trc-scrK-P trc-scrYAB)的L-高丝氨酸滴度增至3.80 g/L,而菌株HS3/p99A rhtB(三个拷贝的P trc-scrK-P trc-scrYAB)的L-高丝氨酸滴度略降至3.65 g/L(图2B)。携带两个拷贝scrKYAB基因簇的菌株相比单拷贝菌株表现出显著增强的蔗糖消耗能力和利用率,而三拷贝菌株仅检测到边际改善(图2C)。此外,菌株HS2/p99A rhtB和HS3/p99A rhtB分别产生0.57 g/L和0.96 g/L乙酸,以及0.12 g/L和0.26 g/L丙酮酸(图2D)。这可能归因于过量蔗糖摄取增强的EMP途径,进而导致副产物积累。此外,蔗糖磷酸化过程中消耗PEP生成丙酮酸也导致菌株中丙酮酸和乙酸的积累。总之,这些结果表明增加拷贝数确实能促进蔗糖同化,从而增强L-高丝氨酸生产(Ajikumar et al., 2010)。然而,过量蔗糖摄取不仅导致更多乙酸产生,还降低了L-高丝氨酸产量。我们成功获得了能以蔗糖为碳源用于后续实验的菌株HS2/p99A rhtB。
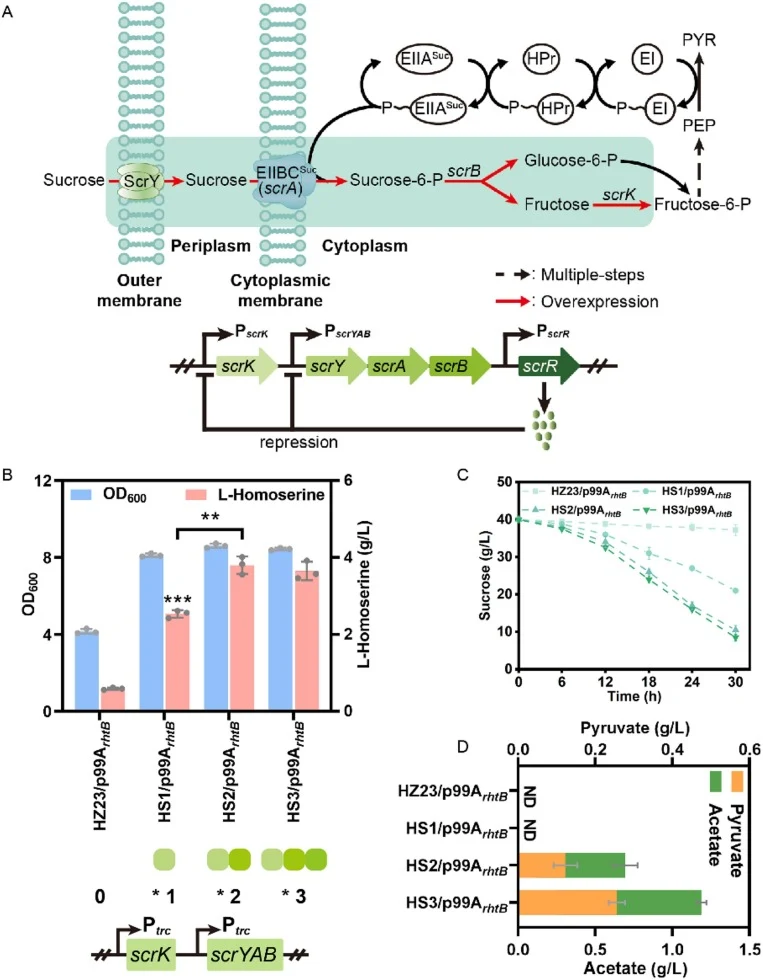
【数据】菌株:HZ23/p99A rhtB、HS1/p99A rhtB、HS2/p99A rhtB、HS3/p99A rhtB;蔗糖浓度:40 g/L;温度:33 ℃;时间:30 h;转速:220 rpm;L-高丝氨酸滴度:HZ23/p99A rhtB 0.59 g/L、HS1/p99A rhtB 2.54 g/L、HS2/p99A rhtB 3.80 g/L、HS3/p99A rhtB 3.65 g/L;OD600:HZ23/p99A rhtB 4.16;乙酸:HS2/p99A rhtB 0.57 g/L、HS3/p99A rhtB 0.96 g/L;丙酮酸:HS2/p99A rhtB 0.12 g/L、HS3/p99A rhtB 0.26 g/L;拷贝数:HS1为1拷贝、HS2为2拷贝、HS3为3拷贝
3.2 重建L-高丝氨酸外排系统与碳流分配
尽管基于质粒的表达系统具有实现目标蛋白高水平生产的潜力,但在发酵过程中常面临质粒不稳定问题(Silva et al., 2012)。同时,携带质粒的菌株需要添加抗生素(Larsson & Flach, 2022),导致生产成本升高和潜在环境污染。为规避这些问题,将p99A rhtB质粒上的L-高丝氨酸外排基因rhtB整合到菌株HS2的lacI位点(图3A)。同时,将来自谷氨酸棒杆菌的cg0701基因平行整合到该位点,因其具有提高L-高丝氨酸胞外分泌效率和增强L-高丝氨酸耐受性的特性(Liu et al., 2025)。摇瓶发酵30 h后,菌株HS4(过表达rhtB基因)的L-高丝氨酸滴度相比菌株HS2/p99A rhtB下降约21%(图3B)。这表明对于L-高丝氨酸外排,基因组单拷贝表达的效果显著低于质粒多拷贝表达(P < 0.001)。此外,菌株HS5(过表达cg0701基因)的L-高丝氨酸滴度相比菌株HS4增加约19%(图3B),而OD600值显著下降(图3C),表明异源cg0701基因对L-高丝氨酸具有更好的外排效果,但对菌株生长产生负面影响。当发酵时间延长至36 h时,菌株HS4的L-高丝氨酸滴度增加0.40 g/L,而菌株HS5略微下降0.12 g/L(图3B)。这可能归因于发酵周期延长导致异源酶Cg0701在大肠杆菌中活性下降。随后,将P trc-rhtB表达盒迭代整合到菌株HS5的ycjV位点。发酵30 h后,所得菌株HS6的L-高丝氨酸滴度持续增加(图3B),其OD600值与菌株HS4无显著差异(图3C)。此外,发现菌株HS6的蔗糖消耗速率超过其他菌株(图S1)。这些结果表明cg0701和rhtB基因的同时过表达对L-高丝氨酸外排产生实质性影响,即使在发酵周期延长时仍能促进L-高丝氨酸外排。菌株HS6的L-高丝氨酸滴度略高于菌株HS2/p99A rhtB(图3B),表明内源和外源外排蛋白的组合有效促进了L-高丝氨酸输出。菌株HS6在发酵过程中产生一定量丙酮酸和乙酸(图3D)。为减少丙酮酸节点的积累,分别从菌株HS6基因组中敲除pykA(编码PYK II酶)和pykF(编码PYK I酶)基因,这两个基因编码促进PEP转化为丙酮酸的同工酶(Sun et al., 2024)。摇瓶发酵30 h后,菌株HS7(敲除pykA基因)的L-高丝氨酸滴度增至4.34 g/L(图3E),伴随0.28 g/L乙酸和检测不到的丙酮酸积累(图3D)。然而,HS8菌株(敲除pykF基因)将L-高丝氨酸产量降至3.12 g/L(图3E),未检测到丙酮酸或乙酸(图3D),OD600值也降至6.80(图3E)。这可能是因为PYK I酶在PEP转化途径中的贡献远大于PYK II酶(Yuan et al., 2022),导致碳流重新分配和能量失衡(Chen et al., 2024)。如先前研究所示,引入丙酮酸羧化酶变体f(原文此处截断,后续内容未详述)。
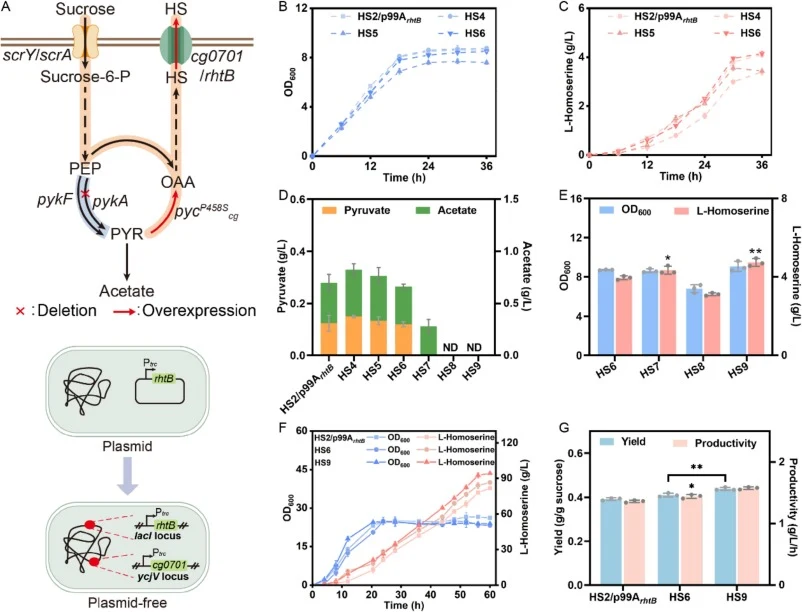
【数据】菌株:HS2/p99A rhtB、HS4、HS5、HS6、HS7、HS8;整合位点:lacI(rhtB、cg0701)、ycjV(P trc-rhtB);发酵时间:30 h、36 h;L-高丝氨酸滴度:HS4较HS2/p99A rhtB下降约21%、HS5较HS4增加约19%、HS4(36 h)增加0.40 g/L、HS5(36 h)下降0.12 g/L、HS7 4.34 g/L、HS8 3.12 g/L;乙酸:HS7 0.28 g/L;丙酮酸:HS7未检出、HS8未检出;OD600:HS8 6.80;统计学显著性:P < 0.001(HS4 vs HS2/p99A rhtB)
讨论与解读
本研究首次将多拷贝蔗糖同化途径整合到L-高丝氨酸生产菌株基因组中,实现了蔗糖的高效利用。转录组指导的筛选与改造策略鉴定出转录调控因子FNR、ArcA和CRP与L-高丝氨酸生物合成相关,最终证实arcA基因敲除的正面效应。外排系统整合至染色体实现无质粒发酵,并优化PEP代谢以减少副产物积累。同时,在大肠杆菌L-高丝氨酸生产中首次通过改造糖摄取途径实现了葡萄糖、果糖和蔗糖混合糖的共利用。所得无质粒、非营养缺陷型菌株HS19以未处理SM在5 L生物反应器中培养,L-高丝氨酸滴度达81.88 g/L,对SM(干重)得率为0.32 g/g,生产强度为1.36 g/L/h。这是首次在大肠杆菌中成功以该低成本原料生产高价值化学品L-高丝氨酸。以预处理SM为碳源时,L-高丝氨酸滴度达97.91 g/L,对SM(干重)得率为0.35 g/g,生产强度为1.63 g/L/h。这是目前报道的以非粮碳源生产L-高丝氨酸的最高滴度,表明该菌株具有良好的工业L-高丝氨酸生产潜力。尽管本研究存在一定局限性,包括需要添加(原文此处截断,后续内容未详述)。
编译者解读
该研究的方法选择体现了合成生物学"底盘-途径-调控"协同优化的思路:先赋予底盘蔗糖利用能力,再通过染色体整合摆脱质粒依赖,最后以转录组数据驱动靶点发现。用甘蔗糖蜜这种非粮原料替代粮食碳源,在成本与可持续性上均有现实价值。局限在于预处理糖蜜增加了工艺步骤,且未处理糖蜜滴度仍低于预处理条件,说明糖蜜中抑制物或杂质对菌株性能存在影响。此外,arcA敲除虽提升32%产量,但其对全局代谢的长期影响尚需评估。
参考来源
期刊:Bioresource Technology, 2026
DOI: 10.1016/j.biortech.2026.135883
DOI: 10.1016/j.biortech.2026.135883