来源:Immune responses triggered by oral administration of recombinant Bacillus subtilis expressing the E2 protein of classical swine fever virus(Virology)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
猪瘟病毒(CSFV)主要经呼吸道和消化道入侵宿主,传统注射疫苗无法在黏膜表面建立有效免疫屏障。本研究以枯草芽孢杆菌WB800N为宿主,构建了分泌表达CSFV E2蛋白的重组菌株,并通过小鼠口服免疫模型系统评价其黏膜免疫原性。结果显示,重组菌能同时诱导系统性体液免疫和黏膜局部免疫,为猪瘟口服黏膜疫苗的开发提供了实验依据。
研究背景
猪瘟是由猪瘟病毒引起的急性、发热性、高度接触性传染病,被列为须优先防控的动物疫病。感染猪表现为持续高热、广泛性点状出血和坏死性肠炎,可导致仔猪急性死亡和成年猪繁殖障碍,给全球养猪业造成重大经济损失。当前防控策略主要依赖灭活疫苗、亚单位疫苗或减毒活疫苗的肌肉注射免疫。然而,这类传统注射疫苗存在明显局限:尽管非肠道免疫能诱导强烈的系统性体液和细胞免疫应答,但无法在消化道黏膜表面建立有效免疫屏障——而消化道恰是CSFV入侵的主要门户,因此不能阻断病毒感染与传播。此外,减毒活疫苗存在毒力返强风险,灭活疫苗和亚单位疫苗通常需要佐剂且免疫持续时间短,难以满足养猪业对更安全、更有效疫苗的需求。
口服疫苗模拟自然感染途径,能激活黏膜免疫应答,是CSFV防控的新方向。但疫苗抗原在严苛的胃肠道环境中易被降解,限制了其开发与应用。枯草芽孢杆菌是一种安全高效的口服疫苗载体,可形成芽孢保护被包裹的抗原来抵抗胃肠道极端环境,并具备优良的异源蛋白表达能力和改善肠道微生态的益生特性。CSFV主要结构蛋白E2能有效诱导中和抗体产生,其表面特异性表位是宿主免疫系统靶向识别的分子基础。
研究方法
2.1 研究审批
研究方案经兰州兽医研究所机构动物护理与使用委员会(中国兰州)批准(批准号:LVRIAEC-2023-044),并按照《实验动物护理与使用指南》执行。
【数据】批准编号:LVRIAEC-2023-044;批准机构:兰州兽医研究所机构动物护理与使用委员会
2.2 菌株、质粒与动物
枯草芽孢杆菌WB800N菌株和穿梭载体pHT43由MoBiTec GmbH & Co. KG(德国哥廷根)提供。八周龄无特定病原体雌性BALB/c小鼠购自研究所实验动物中心。
【数据】菌株:枯草芽孢杆菌WB800N;载体:pHT43;小鼠:8周龄SPF级雌性BALB/c;来源:MoBiTec GmbH & Co. KG
2.3 重组枯草芽孢杆菌的构建
以实验室保存的质粒pUC57-pgsA-E2-Dcpep(GenBank:JN886990.1)为模板,用引物对F:5′-AAA ACA TCA GCC GTA GGA TCC CGC TTA TCT TGC AAG GAA GAT TAC-3′/R:5′-CAT TAG GCG GGC TGC CCC GGG TTA ACG ACG AAC TCC GCA AAA-3′扩增CSFV E2蛋白基因的1046 bp片段。随后用限制性内切酶BamHI和SmaI酶切pHT43质粒以获得线性化载体。使用One Step Cloning Kit(南京诺唯赞生物科技股份有限公司,中国南京)将E2目标基因片段插入线性化pHT43载体,获得重组质粒pHT43-E2(图1)。
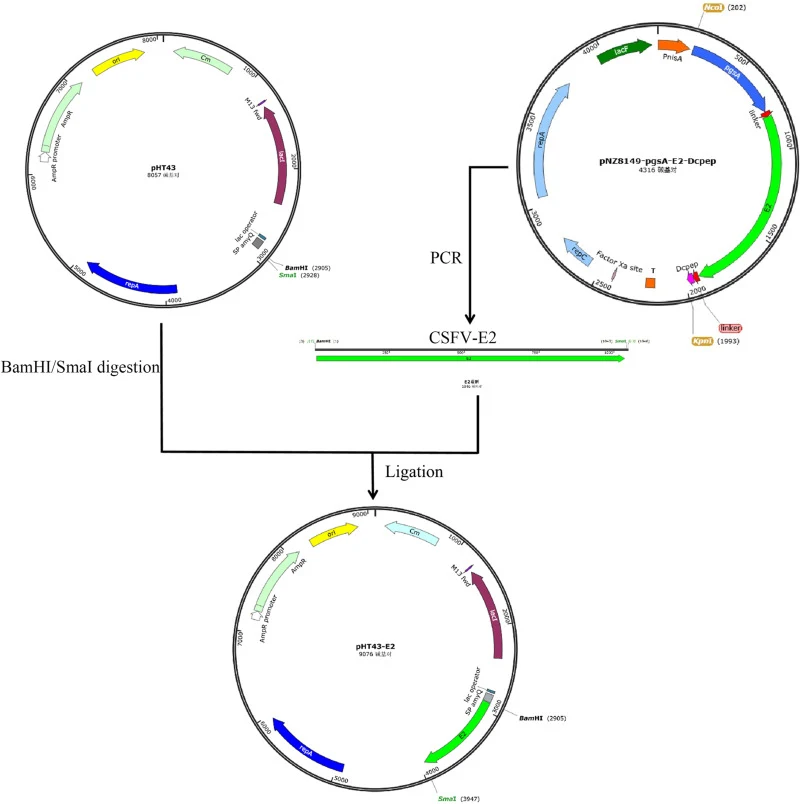
将感受态枯草芽孢杆菌WB800N细胞(50 μL)与重组质粒pHT43-E2携带的空载体pHT43(10 μL)通过电穿孔转化,随后冰上孵育5–10分钟。之后将混合物转移至预冷的电击杯(BioRad Laboratories,美国加州赫拉克勒斯),使用电穿孔仪以2.0 kV、25 μF、200 Ω、脉冲长度1.5–5.0 ms的参数施加电脉冲。电穿孔后立即向电击杯中加入1 mL恢复培养基。随后将细胞涂布于含氯霉素的2×酵母提取物胰蛋白胨琼脂平板上,筛选阳性克隆。最终成功构建了携带质粒pHT43-E2的重组枯草芽孢杆菌WB800N菌株。
【数据】E2基因片段:1046 bp;质粒:pUC57-pgsA-E2-Dcpep(GenBank:JN886990.1);限制性内切酶:BamHI、SmaI;感受态细胞用量:50 μL;质粒用量:10 μL;电穿孔参数:2.0 kV、25 μF、200 Ω;脉冲长度:1.5–5.0 ms;冰上孵育:5–10 min;抗生素:氯霉素
2.4 目标蛋白表达的鉴定
将重组菌株WB800N/pHT43-E2在含10 μg/mL氯霉素的2×酵母提取物胰蛋白胨液体培养基中培养。通过添加1 μg/mL异丙基-β-D-硫代半乳糖苷(IPTG)诱导蛋白表达,于16 °C孵育24小时。随后离心收获细菌细胞,超声破碎制备蛋白裂解液。采用Western blot分析检测目标E2蛋白的表达。简言之,蛋白经电泳分离后电转移至聚偏二氟乙烯膜,封闭后与抗E2小鼠一抗(稀释度1:1000;本实验室自制;数据未发表)于4 °C孵育过夜,随后与辣根过氧化物酶(HRP)偶联的山羊抗小鼠免疫球蛋白(Ig)G二抗(稀释度1:5000;Abcam Limited,英国剑桥)于室温孵育1小时。最后使用BeyoECL Plus试剂盒(碧云天生物技术,中国上海)显影,并使用Amersham Imager 600多功能成像系统(GE HealthCare,美国芝加哥)可视化信号。
【数据】培养基:2×酵母提取物胰蛋白胨液体培养基;氯霉素浓度:10 μg/mL;IPTG浓度:1 μg/mL;诱导温度:16 °C;诱导时间:24 h;一抗稀释度:1:1000;二抗稀释度:1:5000;二抗孵育:室温1 h;一抗孵育:4 °C过夜
2.5 BALB/c小鼠免疫与样品采集
为评价重组枯草芽孢杆菌菌株的免疫原性,将6–8周龄雌性BALB/c小鼠随机分为五组(A–E组,每组n = 27)。参照先前描述的方法(Challacombe, 1983),免疫方案包括三轮给药,每轮连续三天进行,间隔14天。详细免疫方案见表1。免疫前,重组枯草芽孢杆菌WB800N/pHT43-E2用异丙基-β-D-硫代半乳糖苷诱导。收获细菌细胞,用磷酸盐缓冲液(PBS)洗涤三次,最终重悬于PBS中至浓度10¹⁰ CFU/mL。在初次免疫后第0、7、14、21、28、35、42、49和56天,每组处死三只小鼠,采集血液和肠道灌洗液以评估免疫应答。血液通过毛细管从眶后静脉丛采集,37 °C凝固2小时,4 °C孵育过夜,3000×g离心10分钟获得血清。肠道灌洗液采集时,小鼠用乙醚麻醉后颈椎脱臼处死。切除5 cm结肠段,浸入1×PBS中匀浆。匀浆液4 °C放置过夜,12,000×g离心收集上清。所有血清和肠液样品保存于−20 °C用于后续分析(Piggot and Hilbert, 2004)。初次免疫后第35天采集脾脏,使用商业小鼠淋巴细胞分离试剂盒(达科为生物技术有限公司,中国深圳)按照制造商说明分离脾淋巴细胞。
【数据】小鼠:6–8周龄雌性BALB/c;每组数量:n = 27;分组:A–E组共5组;免疫轮次:3轮;每轮:连续3天;间隔:14天;采样时间点:第0、7、14、21、28、35、42、49、56天;每次处死:每组3只;菌液浓度:10¹⁰ CFU/mL;PBS洗涤:3次;血液凝固:37 °C 2 h;血清离心:3000×g 10 min;结肠段长度:5 cm;肠液离心:12,000×g;保存温度:−20 °C;脾脏采集:第35天
2.6 特异性抗体检测
采用间接酶联免疫吸附试验(ELISA)检测小鼠血清和肠液中的特异性抗体,以评价重组枯草芽孢杆菌WB800N/pHT43-E2的免疫效力。检测血清IgG抗体时,以CSFV E2蛋白(4.0 μg/mL)作为包被抗原。血清样品稀释至1:50,每孔加入100 μL,37 °C孵育40分钟。随后加入HRP偶联的山羊抗小鼠IgG抗体(稀释度1:40,000),每孔100 μL,37 °C继续孵育40分钟。之后加入3,3′,5,5′-四甲基联苯胺底物(TMB)(索莱宝,中国北京),37 °C再孵育10分钟。加入2 mol/L H₂SO₄终止反应,用酶标仪测定450 nm处光密度(OD450)以评估抗体反应性。检测sIgA抗体时,肠液样品按1:2稀释以测定抗体浓度,以HRP偶联的山羊抗小鼠IgA抗体(稀释度1:50,000;Abcam Limited)作为二抗。其余所有步骤与血清IgG抗体检测相同。
【数据】包被抗原:CSFV E2蛋白4.0 μg/mL;血清稀释度:1:50;血清加样量:100 μL/孔;一抗孵育:37 °C 40 min;二抗稀释度:1:40,000(IgG)、1:50,000(IgA);二抗加样量:100 μL/孔;二抗孵育:37 °C 40 min;TMB显色:37 °C 10 min;终止液:2 mol/L H₂SO₄;检测波长:450 nm;肠液稀释度:1:2
2.7 细胞因子水平定量
测定初次免疫后第42天采集的血清样品中细胞因子水平以评估免疫状态,因为细胞因子在调节免疫应答中起关键作用。使用商业检测试剂盒(新佰生物,中国深圳)按照制造商说明定量干扰素-γ(IFN-γ)、肿瘤坏死因子-α(TNF-α)、白细胞介素-2(IL-2)、白细胞介素-4(IL-4)和白细胞介素-17(IL-17)的浓度。
【数据】检测时间:初次免疫后第42天;检测因子:IFN-γ、TNF-α、IL-2、IL-4、IL-17;试剂盒来源:新佰生物(中国深圳)
2.8 T淋巴细胞亚群分析
初次免疫后第35天,采集小鼠脾脏分离脾淋巴细胞(小鼠淋巴细胞分离液;达科为生物技术有限公司),用自动细胞计数仪计数,按每管1 × 10⁶个细胞分装并离心。所得细胞沉淀重悬于含荧光标记抗小鼠抗体(BioLegend,美国加州圣地亚哥)的PBS中,抗体针对CD3(异硫氰酸荧光素偶联)、CD4(藻红蛋白偶联)和CD8a(别藻蓝蛋白偶联),避光孵育30分钟,用无菌PBS洗涤,最后重悬后用Beckman CytoFLEX LX流式细胞仪(Beckman Coulter,美国加州布雷亚)分析以鉴定亚群。
【数据】检测时间:初次免疫后第35天;细胞分装量:1 × 10⁶个/管;抗体标记:CD3-FITC、CD4-PE、CD8a-APC;避光孵育:30 min;流式细胞仪:Beckman CytoFLEX LX
2.9 淋巴细胞增殖试验
将分离的脾淋巴细胞重悬于含10%胎牛血清的RPMI 1640培养基中,密度为2 × 10⁶个细胞/mL,接种于96孔板(100 μL/孔),用刀豆蛋白A刺激。
【数据】培养基:RPMI 1640 + 10%胎牛血清;细胞密度:2 × 10⁶个/mL;接种量:100 μL/孔;刺激物:刀豆蛋白A
研究结果
3.1 枯草芽孢杆菌异源生产CSFV E2蛋白
为在枯草芽孢杆菌中表达CSFV E2蛋白,将编码序列插入pHT43质粒,构建pHT43-E2质粒(图2A)。随后用pHT43-E2或空载体转化枯草芽孢杆菌细胞。Western blot分析证实,仅携带pHT43-E2的工程菌株提取物出现38.6 kDa的目标条带,而对照菌株无此条带(使用抗E2单克隆抗体检测)(图2B),表明枯草芽孢杆菌成功表达了保留抗原性的E2蛋白。
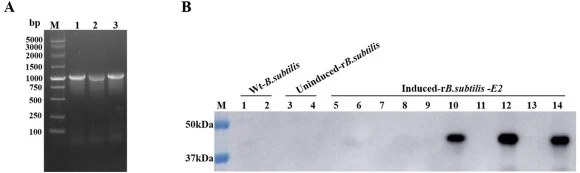
【数据】目标蛋白分子量:38.6 kDa;检测方法:Western blot;抗体:抗E2单克隆抗体;质粒:pHT43-E2
3.2 口服重组枯草芽孢杆菌(rB. subtilis-E2)小鼠的免疫应答
为系统评价表达E2蛋白的重组枯草芽孢杆菌诱导的体液和黏膜免疫应答,采用间接ELISA检测小鼠血清中抗CSFV E2特异性IgG抗体和肠道黏膜灌洗液中特异性sIgA抗体。rB. subtilis-E2免疫小鼠的血清IgG水平随时间稳步升高,在初次免疫后第42天达到峰值。与阴性对照组相比,rB. subtilis-E2组IgG抗体水平显著升高(p < 0.001),表明重组菌有效激发了系统性体液免疫应答。值得注意的是,口服免疫rB. subtilis-E2组的血清IgG水平低于注射E2亚单位疫苗组(p < 0.05),但显著高于单独口服E2蛋白组(p < 0.001),表明枯草芽孢杆菌载体有效保护了抗原蛋白免受胃肠道环境降解,同时具有一定的免疫刺激作用(图3A)。肠道黏膜sIgA抗体检测(图3B)显示,枯草芽孢杆菌免疫组肠液中特异性sIgA水平极显著高于所有对照组(p < 0.001),表明rB. subtilis-E2有效激活了局部黏膜免疫应答并诱导大量sIgA分泌。至免疫后第42天,rB. subtilis-E2组sIgA抗体水平显著高于肌肉注射E2亚单位疫苗组,进一步凸显其作为口服黏膜疫苗的潜力。结果表明,口服免疫rB. subtilis-E2同时诱导了小鼠有效的系统性体液免疫和黏膜局部免疫,为进一步开发抗CSFV口服黏膜疫苗提供了实验依据。
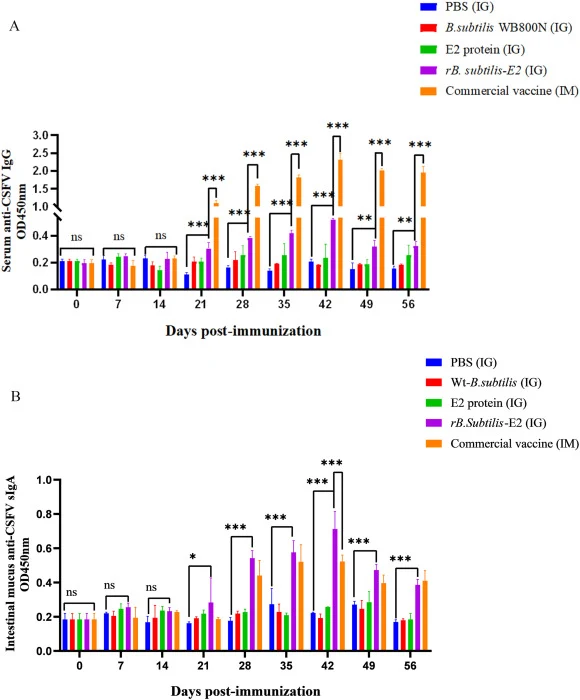
【数据】血清IgG峰值时间:初次免疫后第42天;IgG vs 阴性对照:p < 0.001;IgG vs 注射疫苗组:p < 0.05;IgG vs 口服E2蛋白组:p < 0.001;sIgA vs 所有对照组:p < 0.001;sIgA(第42天)vs 注射疫苗组:显著升高
3.3 脾淋巴细胞亚群
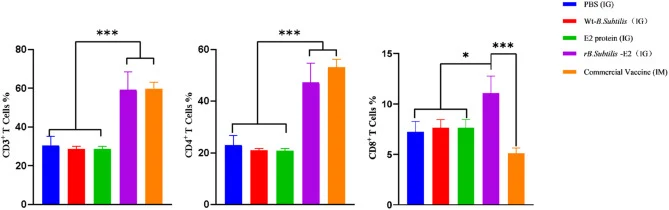
CD4+ T淋巴细胞辅助记忆B细胞(MBCs)产生特异性抗体,而CD8+ T淋巴细胞可分化为细胞毒性T细胞杀伤病原体感染的靶细胞。采用流式细胞术检测脾脏CD3+ T淋巴细胞分化,以研究rB. subtilis-E2对小鼠脾淋巴细胞的影响。初次接种后第42天分析显示,与PBS对照组相比,rB. subtilis-E2组CD3+、CD4+和CD8+ T淋巴细胞亚群均存在统计学显著差异(p < 0.001)。此外,rB. subtilis-E2组CD8+ T淋巴细胞计数显著高于注射疫苗组,表明rB. subtilis-E2有效诱导了小鼠脾淋巴细胞分化。而且,与注射疫苗组相比,重组菌株展现出更优的CD3+ T淋巴细胞向CD8+ T淋巴细胞分化能力(图4)。
【数据】检测时间:初次接种后第42天;CD3+/CD4+/CD8+ vs PBS对照:p < 0.001;CD8+ T细胞:rB. subtilis-E2组显著高于注射疫苗组
3.4 脾淋巴细胞增殖
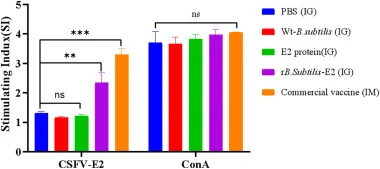
为进一步评价rB. subtilis-E2诱导的小鼠细胞免疫应答,采用CCK-8法检测免疫后脾组织淋巴细胞增殖。所有刀豆蛋白A刺激组均表现出高刺激指数,组间无显著差异(p > 0.05)。E2蛋白刺激的rB. subtilis-E2组和疫苗免疫组的刺激指数显著高于阴性对照组。这些结果表明,重组菌免疫小鼠的脾脏表现出强劲的淋巴细胞增殖和活化(图5)。
【数据】检测方法:CCK-8法;ConA刺激组组间差异:p > 0.05;E2蛋白刺激组 vs 阴性对照:刺激指数显著升高
3.5 细胞因子水平
为深入探究口服免疫的应答机制,系统评价了小鼠血清中Th1/Th2/Th17相关细胞因子水平,以揭示免疫应答类型和强度。IFN-γ是Th1免疫应答最核心和最具特征的细胞因子,主要激活巨噬细胞、自然杀伤细胞和细胞毒性T细胞,是细胞免疫的关键标志物。IL-2是T细胞增殖和活化的必需因子,TNF-α也参与促炎和抗病毒应答。这三种细胞因子水平升高清楚表明,重组菌诱导了比E2亚单位疫苗更强的细胞免疫应答。IL-4是Th2免疫应答的核心细胞因子,主要刺激B细胞产生抗体,特别是IgG1和IgE,从而作为体液免疫的关键驱动因子。IL-17是Th17细胞的特征因子,主要招募中性粒细胞参与抗胞外细菌和炎症应答。重组菌诱导的体液抗体应答和Th17相关炎症应答弱于E2亚单位疫苗(图6)。
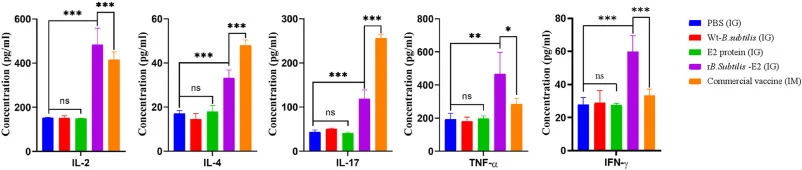
【数据】检测时间:初次免疫后第42天;检测因子:IFN-γ、TNF-α、IL-2、IL-4、IL-17;Th1类细胞因子(IFN-γ、IL-2、TNF-α):重组菌组高于E2亚单位疫苗组;Th2/Th17类(IL-4、IL-17):重组菌组弱于E2亚单位疫苗组
讨论与解读
CSFV主要经呼吸道和消化道入侵宿主。感染母猪可通过胎盘垂直传播给仔猪,这一传播特征显著增加了CSFV防控和净化的难度。“区分感染与免疫动物”策略的开发对CSFV精准防控和逐步净化尤为重要。CSFV的E2、Erns和NS3蛋白能诱导感染康复猪产生特异性抗体,其中E2蛋白含有主要中和抗体表位,是疫苗开发的核心靶抗原。传统CSFV疫苗多依赖注射免疫,诱导体液免疫产生血清IgG抗体,但无法有效激活黏膜免疫。消化道是CSFV入侵的关键途径,黏膜表面sIgA介导的防御不足导致传统疫苗对黏膜入侵的CSFV保护效力有限。因此,开发能激活黏膜免疫同时诱导体液免疫的口服CSFV疫苗具有重要价值。
本研究以枯草芽孢杆菌WB800N为宿主构建了分泌表达CSFV E2蛋白的重组菌株,通过小鼠口服免疫模型证实其能同时诱导系统性体液免疫和黏膜局部免疫。重组菌诱导的血清IgG水平虽低于注射亚单位疫苗,但显著高于单独口服E2蛋白组,说明芽孢载体有效保护了抗原通过胃肠道。黏膜sIgA应答尤为突出,第42天时显著高于注射疫苗组。细胞免疫方面,重组菌促进CD3+ T淋巴细胞向CD8+ T淋巴细胞分化,Th1类细胞因子应答强于亚单位疫苗。
编译者解读:该研究巧妙利用枯草芽孢杆菌芽孢的天然耐酸耐热特性解决口服疫苗抗原降解难题,方法选择务实——以WB800N缺陷株降低胞外蛋白酶对抗原的降解,pHT43穿梭载体实现异源分泌表达。亮点在于同时评估了黏膜、体液和细胞三重免疫应答,数据链完整。局限在于仅采用小鼠模型,未进行猪体攻毒保护试验;E2蛋白表达量未定量,且口服免疫IgG水平仍低于注射疫苗,提示可能需要优化给药剂量或免疫佐剂策略。
参考来源
期刊:Virology, 2026
DOI: 10.1016/j.virol.2026.110924
DOI: 10.1016/j.virol.2026.110924