来源:Multiomics analysis unravels a UV-B-mediated regulatory network of anthocyanin biosynthesis in lettuce (Lactuca sativa L.)(Plant Physiology and Biochemistry)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
设施温室中UV-B辐射的缺失会显著降低莴苣的花青素含量,但这一现象背后的分子调控网络尚不清楚。本研究以红叶莴苣品种'Red Butter'为材料,整合代谢组与转录组数据,在露地、塑料大棚和玻璃温室三种栽培条件下进行比较分析,锁定LsHY5a/b-LsMYB113b转录级联为UV-B诱导花青素积累的核心调控模块,并通过瞬时表达实验验证了LsMYB113b对下游结构基因的直接激活作用。该工作为UV欠缺温室系统中提升园艺作物营养品质提供了可操作的分子靶点。
研究背景
植物天然暴露于动态太阳辐射下,UV-B辐射(280–315 nm)虽仅占太阳光谱的一小部分,却对植物光形态建成和次生代谢产生显著影响。为缓解UV-B诱导的氧化胁迫,植物会积累抗坏血酸、酚酸和花青素等抗氧化物质。花青素作为一类重要的黄酮类代谢物,不仅帮助植物抵御不利环境,还因其强抗氧化、抗炎和抗肿瘤活性而具有显著的健康促进潜力。因此,推荐食用富含花青素的园艺作物已成为促进人类健康的共识。花青素生物合成经由苯丙烷代谢途径,由早期生物合成基因(EBGs)和晚期生物合成基因(LBGs)编码的一系列酶催化完成。尽管UV-B暴露与花青素水平升高之间的经验关联已被广泛观察,其背后的分子调控网络仍缺乏系统解析。
研究方法
2.1 植物材料与生长条件
红叶莴苣品种'Red Butter'的种子播种于育苗盘中,在露地(OF)全太阳光谱条件下萌发。为评估不同栽培条件对莴苣生长和代谢的影响,于2022年5月13日至5月28日在湖北省农业科学院蔬菜研究所(中国武汉,30°48′N,114°32′E)开展盆栽试验。在萌发后30天(DAG),将均匀健康的幼苗移栽至直径30 cm的盆中,分别在三种条件下生长:露地(OF)、塑料大棚(PG)和玻璃温室(GH)。PG结构为拱形钢架覆盖0.15 mm厚聚乙烯(PE)薄膜,允许大量UV透射。GH结构覆盖8 mm聚碳酸酯(PC)板,含UV防护涂层,可见光透射率高但显著阻挡UV辐射。PG和GH均为日光型温室。所有植株每五天用改良Hoagland营养液灌溉一次。在整个实验期间监测OF、PG和GH条件下的微环境变量,包括气温、相对湿度、光合有效辐射(PAR)、UV-A和UV-B。如图S1所示,三种条件下的温度和相对湿度仅存在微小差异。PAR水平在三种条件间无显著差异。最显著的差异是GH条件下UV-A和UV-B辐射的剧烈衰减。除UV-A和UV-B辐射外,三种栽培条件间未观察到其他光谱组分的实质性差异。
【数据】莴苣品种:'Red Butter';移栽苗龄:30 DAG;盆直径:30 cm;PE膜厚度:0.15 mm;PC板厚度:8 mm;营养液:改良Hoagland;灌溉频率:每5天一次;试验时间:2022年5月13日至5月28日;地点:30°48′N,114°32′E,武汉
2.2 UV-B处理与样品采集
在35和45 DAG时从三种栽培条件下采集叶片样品用于转录组和代谢组分析,分别命名为OF35/45、PG35/45和GH35/45。每组包含三个生物学重复,每个重复混合五株个体植物。对于受控UV-B处理,将15天龄的'Red Butter'莴苣幼苗置于白光(350 μmol m⁻² sec⁻¹)补充连续UV-B照射(0.25 mW cm⁻²)条件下。在UV-B处理后0、0.5、1、2、6和12 h采集叶片组织,每个时间点三个生物学重复。所有样品立即在液氮中速冻并保存于–80 °C用于后续分析。
【数据】采样时间点:35和45 DAG;生物学重复:每组3个;每重复混合株数:5株;UV-B处理苗龄:15天;白光强度:350 μmol m⁻² sec⁻¹;UV-B强度:0.25 mW cm⁻²;UV-B采样时间点:0、0.5、1、2、6、12 h;储存温度:–80 °C
2.3 颜色与生长参数测定
在每个发育阶段,每组随机取五株个体植物进行表型评估。五株个体的测量值取平均,生成每组每个时间点的单一代表值。所选植株用蒸馏水冲洗并吸干后测量颜色和生长参数。叶色参数包括亮度(L)、红度(a)和黄度(b*),使用色差计(NR10QC,深圳,中国)测定。地上组织的地上部鲜重使用电子分析天平测量,株幅使用直尺记录。
【数据】每组取样株数:5株;色差计型号:NR10QC(深圳,中国);测定参数:L、a、b*、地上部鲜重、株幅
2.4 花青素提取与定量
总花青素提取时,将0.1 g新鲜莴苣叶片样品与2 mL含0.1%(v/v)盐酸的甲醇匀浆。超声提取30 min后,以10,000 rpm离心10 min。取上清液用pH示差法测定总花青素含量(Giusti和Wrolstad,2001)。使用Infinite M2000酶标仪(Tecan,瑞士)在530和657 nm处测定吸光度。花青素浓度以矢车菊素-3-O-葡萄糖苷当量毫克数/100 g鲜重计算,摩尔吸光系数为26,900,分子量为449.2。
【数据】叶片样品量:0.1 g;提取液:2 mL含0.1% HCl的甲醇;超声时间:30 min;离心转速:10,000 rpm;离心时间:10 min;检测波长:530和657 nm;摩尔吸光系数:26,900;分子量:449.2;酶标仪型号:Infinite M2000(Tecan,瑞士)
2.5 代谢组分析
在35和45 DAG时从三种栽培条件采集的莴苣叶片样品经冻干并研磨成细粉用于代谢组分析。代谢物的提取、鉴定和定量由武汉迈特维尔生物科技有限公司(武汉,中国)完成。简要流程:将50 mg冻干样品粉末溶解于1.2 mL 70%甲醇中,每30 min涡旋30 s。12,000 rpm离心10 min后,上清液经微孔膜(0.22 μm)过滤并转移至进样瓶中进行UPLC-MS/MS分析。绝对log2FC(倍数变化)≥ 1且变量投影重要性(VIP)值≥ 1的代谢物被鉴定为差异积累代谢物(DAMs)。采用成对比较(如OF35 vs. GH35)鉴定同一发育阶段不同栽培条件间的代谢变异。所有用于代谢组分析的叶片样品均在同一统一田间试验中同时采集,并在单一仪器批次内检测以避免技术批次变异。获得的代谢组原始数据集部分在多个发表中重复使用:OF代谢组数据已在我们之前的研究中报道(Zhang et al., 2026),而PG和GH代谢组数据在本研究中首次利用。本研究中所有代谢组数据均使用一致的生物信息学流程进行统一标准化和分析以确保数据一致性。
【数据】样品量:50 mg冻干粉末;提取液:1.2 mL 70%甲醇;涡旋间隔:每30 min涡旋30 s;离心转速:12,000 rpm;离心时间:10 min;滤膜孔径:0.22 μm;DAMs筛选阈值:|log2FC| ≥ 1且VIP ≥ 1;分析平台:UPLC-MS/MS
2.6 转录组分析与共表达网络构建
RNA-seq文库由上海派森诺生物科技有限公司(上海,中国)使用Illumina NovaSeq平台制备和测序。Clean reads比对到莴苣基因组(v8)(Reyes-Chin-Wo et al., 2017)。基因表达水平以FPKM(每百万映射读数中每千碱基转录本的片段数)计算,使用TBtools软件绘制热图。原始读数计数作为DESeq2的输入(Love et al., 2014),采用中位数比值法进行标准化。差异表达基因(DEGs)以|Fold Change| ≥ 2且校正P值 < 0.05为阈值筛选。比较组获得的DEGs进一步进行KEGG和GO富集分析。所有用于转录组分析的莴苣叶片样品均来自单一同期田间试验,每个OF、PG和GH栽培条件设三个生物学重复。所有文库构建和高通量测序流程在单一实验批次内完成,消除了潜在的测序批次伪影。尽管原始转录组数据集被拆分用于不同发表,本研究中所有原始读数均使用统一生物信息学流程和一致参数设置从头重新处理。具体而言,OF转录组数据已在我们之前的工作中报道(Zhang et al., 2026),而PG和GH转录组数据在本研究中首次利用。OF35NR和OF45NR的原始测序数据已存入NCBI Sequence Read Archive,登录号PRJNA1248592。共有6,778个DEGs用于使用WGCNA R包构建基因共表达调控网络(Langfelder和Horvath,2008)。基因过滤设置为去除表达可忽略的基因并降低背景噪音,过滤阈值设为0.1。选择软阈值功率18以满足无标度拓扑标准。mergeCutHeight设为0.25用于模块合并,最小模块大小设为50。计算模块特征基因与花青素相关代谢物谱之间的模块-性状相关性。所有DEG-DAM对的相关系数用Pearson相关分析计算。为考虑多重检验,应用Benjamini-Hochberg FDR校正。仅保留基因-代谢物对中F值满足阈值的配对。
【数据】测序平台:Illumina NovaSeq;比对基因组:莴苣v8;DEGs筛选阈值:|Fold Change| ≥ 2,校正P < 0.05;DEGs总数:6,778;WGCNA过滤阈值:0.1;软阈值功率:18;mergeCutHeight:0.25;最小模块大小:50;NCBI登录号:PRJNA1248592;FDR校正方法:Benjamini-Hochberg
研究结果
3.1 莴苣对不同栽培条件的形态和生理响应
为评估环境对莴苣形态和生理的影响,将最初在露地(OF)条件下生长的红叶品种'Red Butter'幼苗移栽至塑料大棚(PG)和玻璃温室(GH),以OF条件为对照。不同条件下叶片颜色参数和总花青素含量出现显著变化(图1A)。颜色值亮度(L)、红度(a)和黄度(b*)反映了叶片色素的明显变化(图1D-F)。在GH栽培五天后,莴苣叶片迅速变绿,花青素含量急剧下降(图1G),同时株幅和地上部鲜重均大于OF和PG栽培的莴苣(图1H和I)。这些结果表明不同栽培条件同时影响莴苣的花青素积累和生物量表现。
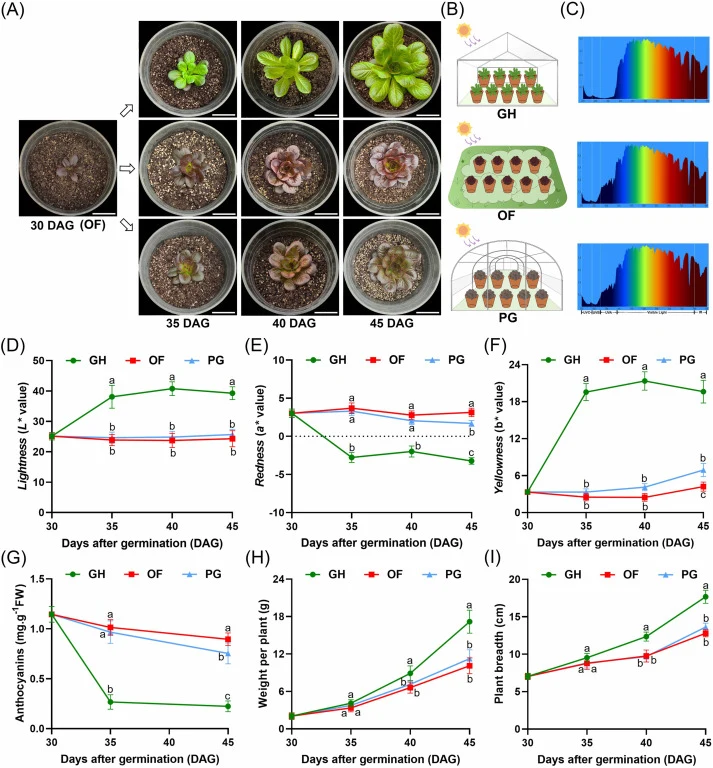
为探索不同栽培条件间花青素变异背后的潜在环境驱动因素,我们监测了环境温度、相对湿度以及光辐射(包括PAR、UV-A和UV-B)。三种栽培条件间,温度和相对湿度仅存在微小差异(图S1A和B)。发育后期记录了温度升高,这与莴苣花青素积累减少相吻合(图1G)。一个显著区别是GH条件下UV-A(315–400 nm)和UV-B(280–315 nm)辐射的大幅衰减(图1B和C,图S1C和D)。尽管OF的UV和PAR强度高于PG,但这些差异未达到统计学显著性(图S1E)。我们的观察表明,GH栽培莴苣中花青素水平降低与UV辐射缺失相关。
【数据】GH栽培5天后花青素含量急剧下降;GH条件下UV-A(315–400 nm)和UV-B(280–315 nm)大幅衰减;OF的UV和PAR强度高于PG但差异不显著;GH莴苣株幅和地上部鲜重大于OF和PG
3.2 多组学分析揭示莴苣响应UV辐射的黄酮和花青素途径
进行全面的代谢组分析以表征不同栽培条件下莴苣的代谢谱。共注释和定量了929种代谢物(图S2A)。基于代谢物的主成分分析(PCA)和Pearson相关系数(PCC)显示每组重复样品间高度相似,并表明不同栽培条件下莴苣存在明显的代谢分歧(图S2B和C)。在各比较组中,共鉴定出592种差异积累代谢物(DAMs)(表S2),其中169种(28.55%)属于黄酮类(图S2D),表明黄酮代谢是莴苣中最突出的代谢变异。具体而言,在OF35NM vs. GH35NM、PG35NM vs. GH35NM、OF45NM vs. GH45NM和PG45NM vs. GH45NM四个比较组中分别检测到293、256、290和294种DAMs(图2A)。这些DAMs显著富集于黄酮类、黄酮和黄酮醇以及花青素相关生物合成途径(图2C和D)。值得注意的是,18种定量花青素中有17种在OF和PG条件下相比GH显著上调。矢车菊素糖苷——主要是矢车菊素-3-O-半乳糖苷和矢车菊素-3-O-葡萄糖苷——是莴苣叶片变红的主要贡献者(表S2;图S3)。
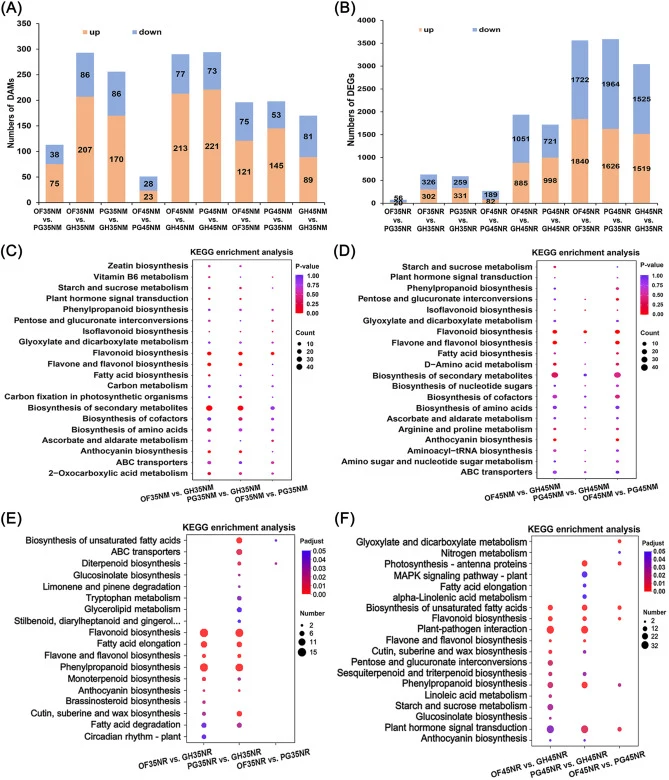
随后,我们对不同栽培条件下莴苣的转录组谱进行了详细分析。PCA图表明不同栽培条件间样品转录模式存在明显差异,PCC结果显示每组内重复样品间强相关(图S4)。总共从莴苣中鉴定出6,778个差异表达基因(DEGs)。具体而言,在OF35NR vs. GH35NR、PG35NR vs. GH35NR、OF45NR vs. GH45NR和PG45NR vs. GH45NR四个比较组中分别鉴定出628、590、1,936和1,719个DEGs(图2B;表S3和S4)。KEGG富集分析显示黄酮和花青素生物合成途径显著过代表(图2E和F),这与代谢谱结果一致。转录组和代谢组数据集的整合分析表明,OF和PG条件下生长的莴苣中黄酮、黄酮醇和花青素积累更高(图S5)。相应地,黄酮和花青素途径相关的关键结构基因,包括PALs、C4H、4CL、CHSs、CHIs、F3H、DFR和ANS,在OF和PG栽培莴苣中上调(图S5)。总体而言,这些观察表明黄酮和/或花青素生物合成途径中转录和代谢的同步变化与UV辐射强度相关。
【数据】代谢物总数:929种;DAMs总数:592种;黄酮类DAMs:169种(28.55%);四个比较组DAMs数:293、256、290、294;18种花青素中17种在OF和PG下显著上调;DEGs总数:6,778;四个比较组DEGs数:628、590、1,936、1,719;DEGs筛选阈值:|Fold Change| ≥ 2,校正P < 0.05
3.3 黄酮生物合成基因与代谢物之间的相关性
为深入了解基因表达模式与黄酮代谢物积累之间的关联,我们使用k-means聚类算法对转录组和代谢组数据集进行了相关性分析。首先,169种差异黄酮代谢物根据其积累模式分为六个不同的簇(表S5)。采用严格的检验校正(r ≥ 0.80,P值 < 0.05)筛选每个簇中与代谢物相关的DEGs。在所有簇中,共有6,322个DEGs与至少一种黄酮代谢物正相关(图S6)。大多数差异花青素被分配到簇3和簇6,其中22个与黄酮生物合成相关的结构基因共聚类。在簇3内,两个CHSs、三个CHIs、一个F3H、一个DFR和一个ANS与相应代谢物表现出强相关性。此外,在簇3和簇6中鉴定出一个bHLH TT8、一个MYB12和两个MYB113 TF编码基因(表S6和S7)。
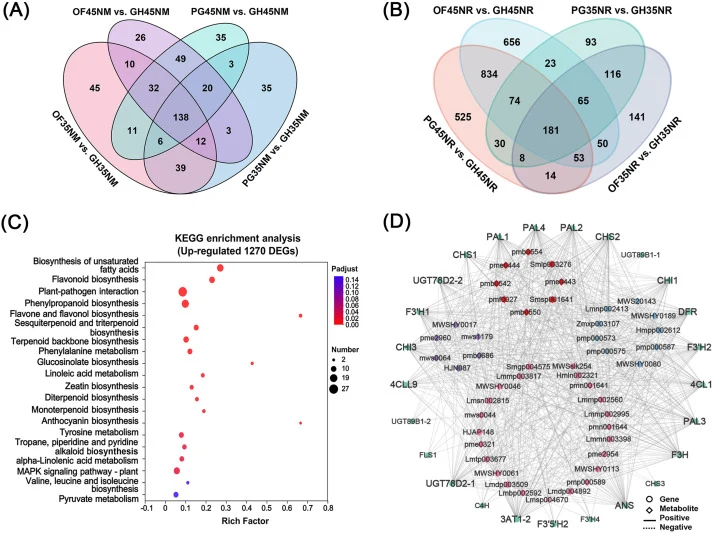
四个比较组中DAMs和DEGs的Venn图分析显示,138个共享DAMs中有92个(66.67%)属于黄酮类,其中90种代谢物表现出一致上调(图3A和B)。同时,1,270个上调DEGs在黄酮和花青素生物合成途径中显著富集(图3C)。此外,将四个比较组的DEGs和DAMs进行相关性检验以生成九象限图。大多数检测到的黄酮DAMs,包括木犀草素、山柰酚和槲皮素衍生物以及花青素,定位于象限3(图S7)。在该象限内,20个黄酮相关基因(包括17个结构基因和三个TF编码基因MYB12、MYB113和TT8)与黄酮代谢物显示正相关,表达和积累趋势同步。此后,我们构建了整合46种黄酮代谢物和黄酮代谢基因的相关性网络。保留绝对相关系数(r)≥ 0.80且校正P < 0.05的配对用于网络可视化(表S8)。网络分析表明结构基因的表达动态与黄酮代谢物的积累谱呈强正相关(图3D)。
【数据】差异黄酮代谢物:169种,分为6个簇;与至少一种黄酮代谢物正相关的DEGs:6,322个;簇3和簇6中共聚类的黄酮结构基因:22个;共享DAMs:138个,其中92个(66.67%)为黄酮类,90个一致上调;上调DEGs:1,270个;相关性网络包含:46种黄酮代谢物;筛选阈值:r ≥ 0.80,校正P < 0.05
3.4 鉴定调控莴苣UV-B介导花青素生物合成的关键调控因子
为解析控制莴苣花青素生物合成的调控网络,从6,778个DEGs中鉴定出360个转录因子(TFs)(表S9)和56个与通用苯丙烷途径(GPP)相关的酶编码基因。随后构建了共表达调控网络(图S8),凸显了转录调控的复杂性。为进一步了解花青素生物合成的调控机制,我们进行了加权基因共表达网络分析(WGCNA)(软阈值 = 18,R² = 0.80),产生九个不同的基因模块(图S9A;表S10)。黄色模块与花青素代谢物高度相关。
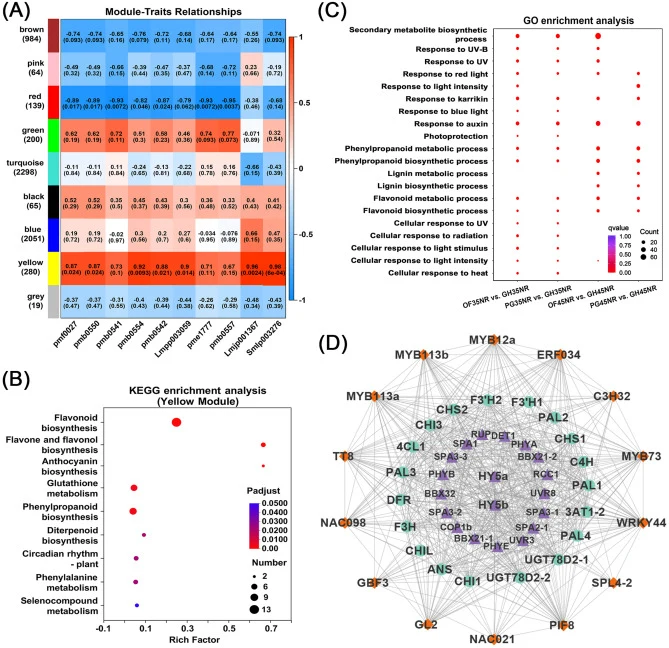
【数据】转录因子:360个;GPP相关酶编码基因:56个;WGCNA软阈值:18;R²:0.80;基因模块数:9个;DEGs总数:6,778
讨论与解读
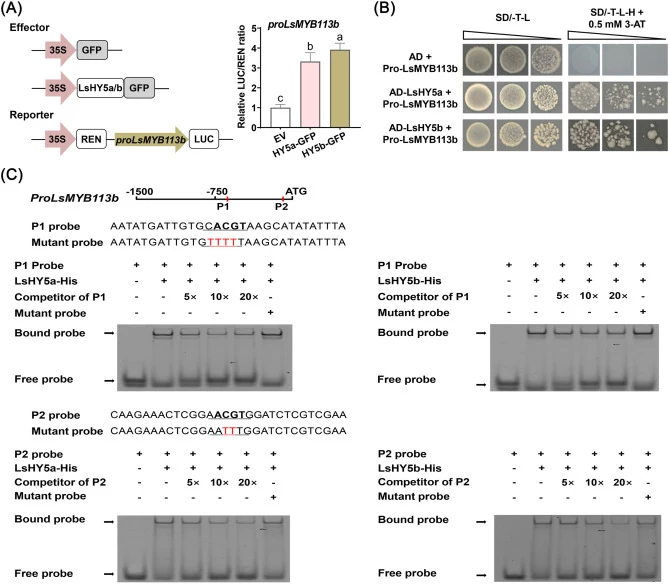
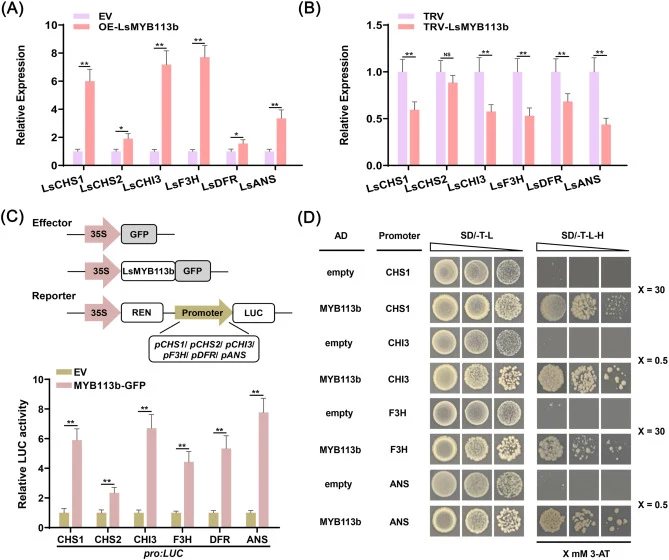
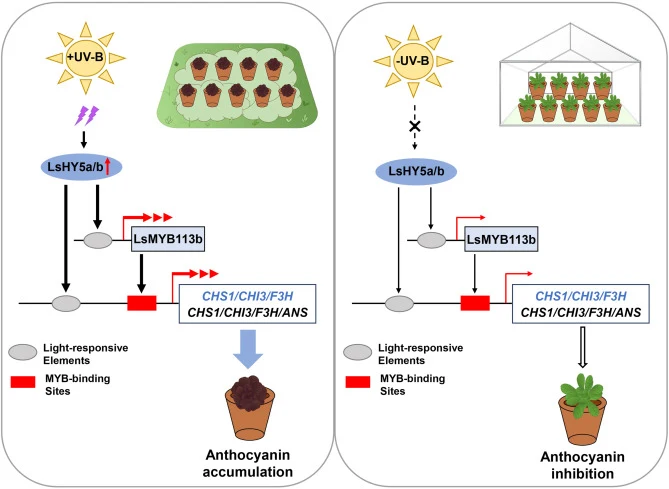
现代温室作为集约化农业系统,在实现稳定高效的园艺生产中具有巨大潜力。覆盖材料通过改变光透射深刻影响温室微环境。20世纪,钢化玻璃因其结构完整性和良好的光透射性能被广泛采用;近年来,聚乙烯(PE)薄膜日益普及,抗雾剂、防尘剂和UV稳定剂等化学添加剂的加入改善了薄膜耐久性并降低了热传导。聚碳酸酯(PC)和聚氯乙烯(PVC)等刚性塑料材料也作为替代覆盖选项出现,具有优异的光扩散性、比玻璃更低的热导率和比塑料薄膜更高的耐久性。我们的环境监测显示,聚碳酸酯覆盖的玻璃温室(GH)大幅衰减了UV-A和UV-B辐射(< 400 nm),而露地(OF)条件维持了全光谱太阳辐射(图S1)。相应地,UV充足的OF条件支持莴苣高水平花青素,而UV欠缺的GH条件抑制了花青素产生(图1)。多组学整合分析将LsHY5a/b定位为UV-B信号下游的核心调控因子,LsHY5a/b作用于LsMYB113b上游,建立了一个调控花青素生物合成的转录级联。瞬时表达实验进一步证明LsMYB113b通过直接结合LsCHS1、LsCHI3、LsF3H和LsANS的启动子激活其转录,从而正向调控花青素积累。该研究阐明了一条完整的UV-B→LsHY5a/b→LsMYB113b→花青素结构基因的分子通路。
编译者解读:该研究以多组学整合策略高效锁定了UV-B响应花青素合成的关键转录级联,方法上WGCNA与相关性网络的联合使用值得借鉴。但需注意,LsHY5a/b-LsMYB113b级联的功能验证主要依赖瞬时表达体系,稳定遗传转化证据尚缺;此外,UV-B信号如何传递至LsHY5a/b的上游感知机制未被触及。从合成生物学应用看,LsMYB113b可作为温室作物营养强化的直接靶点,但需评估其异源表达对植物生长的潜在负担。
参考来源
期刊:Plant Physiology and Biochemistry, 2026
DOI: 10.1016/j.plaphy.2026.111758
DOI: 10.1016/j.plaphy.2026.111758