来源:A Bacillus amyloliquefaciens serine protease reduces ELISA-detectable epitopes of major indoor allergens: Computational modeling of the Fel d 1 binding interface(Science of The Total Environment)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
宠物与尘螨来源的室内过敏原是持续存在的生物污染物,却缺乏环境友好的控制手段。本研究从养宠家庭室内空气分离到一株解淀粉芽孢杆菌Ba2501,其分泌的枯草杆菌蛋白酶家族丝氨酸蛋白酶可在72 h内近乎完全消除ELISA可检测的Der p 1与Fel d 1表位(降幅99.86%与100%),对Can f 1的降幅为67.83%。作者进一步以Fel d 1为模型,通过分子对接、200 ns分子动力学模拟与MMPBSA分析,解析了蛋白酶–过敏原复合物的结合界面(埋藏面积2392 Ų),为酶法干预室内过敏原暴露提供了结构与实验双重依据。
研究背景
过敏性疾病的全球患病率已达30%–40%,被日益视为重要的环境健康负担。人们高达90%的时间在室内度过,宠物(猫Fel d 1、狗Can f 1)与尘螨(Der p 1)来源的过敏原构成持续而复杂的生物危害。这些蛋白类过敏原常在家居环境中并存,可协同触发并加重哮喘、过敏性鼻炎与特应性皮炎等呼吸及皮肤疾病。其结构稳定、颗粒微小,易于气溶胶扩散并沉积于肺部深处,使有效控制变得困难。室内空气质量虽已被视为人类整体环境的关键组成,但相较室外空气污染仍缺乏监管。当前室内过敏原管理主要依赖物理清除(如吸尘)等手段,而微生物酶等生物途径因特异性强、效率高、环境兼容性好而受到关注。蛋白酶介导的过敏原蛋白切割可不可逆地降低致敏性,本研究即在这一方向上整合了表位降解实验与计算机制解析。
研究方法
2.1 样品采集、分离与蛋白水解活性筛选
空气细菌于2025年9月至10月间采自中国南京三个养宠家庭,室内温度22–26 °C,相对湿度50–65%。选择养宠家庭作为采样点,是因为其通常含有较高水平的宠物皮屑蛋白类过敏原,可能有利于产蛋白酶细菌的存在。空气细菌采用被动沉降平板法采集。营养琼脂(NA)平板在养宠家庭(狗和/或猫)的客厅中暴露30–60 min,平板置于房间中央、距地面约1.5 m处,以代表人体呼吸带。暴露后,平板立即用封口膜密封,运送至实验室,于37 ± 1 °C培养24–48 h。在NA平板上培养24–48 h后,根据菌落大小、颜色、形状、边缘和表面质地的差异挑选形态不同的菌落。选取至少有两项形态特征不同的菌落,在新鲜NA平板上连续划线纯化,直至获得纯培养物。共获得60株形态不同的细菌分离物,并在含2%脱脂牛奶的琼脂上筛选胞外蛋白水解活性(Marathe et al., 2018)。选取蛋白水解活性最强的菌株用于进一步研究。
【数据】采样时间:2025年9月–10月;采样地点:中国南京3个养宠家庭;室内温度:22–26 °C;相对湿度:50–65%;平板暴露时间:30–60 min;平板高度:约1.5 m;培养温度:37 ± 1 °C;培养时间:24–48 h;分离菌株数:60株;脱脂牛奶浓度:2%
2.2 16S rRNA测序与枯草杆菌蛋白酶基因特异性PCR鉴定
为鉴定细菌种类,进行了16S rRNA基因测序。从候选菌株中提取基因组DNA,使用通用引物扩增16S rDNA区域(正向:5′–GGATGAGCCCGCGGCCTA–3′;反向:5′–CGGTGTGTACAAGGCCCGGGAACG–3′)。纯化的PCR产物进行双向测序。所得序列经比对后针对标准数据库进行物种鉴定分析。为特异性检测已鉴定的解淀粉芽孢杆菌中编码枯草杆菌蛋白酶的基因,进行了基因特异性PCR assay。使用靶向枯草杆菌蛋白酶基因的引物(正向:5′–AGCGGGATCCATGAGAGGCAAAAGTATGATCAGT–3′;反向:5′–AATACTCGAGCGCTGAGCTGCCGCCTGTACGT–3′)(Singh et al., 2022)。以过夜细菌培养物经商业试剂盒(Qiagen)按制造商说明提取的总基因组DNA作为模板。PCR扩增使用2 × Taq PCR Mastermix(Vazyme,南京,中国)在自动热循环仪(Bio-Rad,美国)上进行,条件如下:95 °C初始变性10 min;35个循环的95 °C变性1 min、52 °C退火30 s、72 °C延伸1 min;随后72 °C终延伸10 min。该分析确认了细菌分离物中枯草杆菌蛋白酶基因的存在。
【数据】引物(16S):正向5′–GGATGAGCCCGCGGCCTA–3′,反向5′–CGGTGTGTACAAGGCCCGGGAACG–3′;引物(枯草杆菌蛋白酶):正向5′–AGCGGGATCCATGAGAGGCAAAAGTATGATCAGT–3′,反向5′–AATACTCGAGCGCTGAGCTGCCGCCTGTACGT–3′;初始变性:95 °C,10 min;循环数:35;变性:95 °C,1 min;退火:52 °C,30 s;延伸:72 °C,1 min;终延伸:72 °C,10 min;PCR试剂:2 × Taq PCR Mastermix(Vazyme)
2.3 蛋白酶抑制剂对蛋白酶活性的影响
粗酶提取物通过将细菌接种于营养肉汤中,随后37 °C培养24 h制备。培养物以8000 ×g离心10 min,收集上清液作为粗酶溶液。为评估对蛋白酶活性的抑制作用,将粗酶分别与以下每种抑制剂在室温(28 °C)下孵育30 min:苯甲基磺酰氟(PMSF)、乙二胺四乙酸(EDTA)、碘乙酰胺和胃蛋白酶抑制剂。随后使用标准assay测定蛋白酶活性。以对照组(无抑制剂)活性设为100%,各抑制剂存在下的残余酶活性表示为相对于对照的百分比。蛋白浓度采用Bradford法测定(Bradford, 1976)。所有抑制剂实验均进行三次独立实验,每次设三个技术重复。结果以均值 ± 标准误(SE)表示。
【数据】培养温度:37 °C;培养时间:24 h;离心:8000 ×g,10 min;抑制剂孵育温度:28 °C;孵育时间:30 min;抑制剂:PMSF、EDTA、碘乙酰胺、胃蛋白酶抑制剂;重复:3次独立实验×3技术重复;蛋白定量:Bradford法
2.4 主要过敏原ELISA可检测表位的定量
纯化的天然过敏原——Fel d 1(猫)、Can f 1(狗)和Der p 1(尘螨)——购自(MSKBIO Biotech,武汉,中国)。每种过敏原均附有制造商指定的纯度(>95%)和浓度认证。采用定量酶联免疫吸附 assay(ELISA)评估细菌处理后主要过敏原ELISA可检测表位的减少,参照先前建立的方案并加以修改(Azdad et al., 2018)。简言之,将每种过敏原样品(Fel d 1、Can f 1或Der p 1)分别加入100 mL营养肉汤中。随后向培养基中加入1 mL过夜培养的解淀粉芽孢杆菌Ba2501接种物。共培养物于37 °C、150 rpm振荡培养72 h,并在不同时间点采集样品。孵育后,培养液以10,000 ×g离心15 min去除细菌细胞。收集上清液,经0.22 μm膜过滤,适当稀释后进行分析。各样品中致敏蛋白浓度使用商业ELISA试剂盒(MSKBIO Biotech,武汉,中国)按制造商说明定量。使用试剂盒提供的纯化过敏原生成标准曲线。ELISA信号的降低率表示为相对于0 h时间点可检测过敏原浓度的百分比下降,按以下公式计算:降低率(%)= (C0 – C time)/ C0 × 100%,其中C time和C0分别代表细菌处理不同时间样品中的过敏原浓度。
【数据】过敏原纯度:>95%;培养基体积:100 mL营养肉汤;接种量:1 mL过夜培养物;培养温度:37 °C;振荡速度:150 rpm;培养时间:72 h;离心:10,000 ×g,15 min;过滤孔径:0.22 μm;ELISA试剂盒:MSKBIO Biotech
2.5 分子对接
从UniProt和RCSB PDB数据库检索蛋白酶Subtilisin(UniProt登录号:P00782)和主要猫过敏原Fel d 1(UniProt登录号:P30440)的氨基酸序列,检索词为“Subtilisin AND (taxonomy_name: Bacillus amyloliquefaciens)”、“Fel d AND (taxonomy_name: Felis catus)”和“Fel d 1”。蛋白–蛋白对接使用AlphaFold 3(v.3.0,Google DeepMind)进行。所得复合物导入Schrödinger Suite 2024–3进行结构精修。重建缺失侧链,封闭末端,通过天冬酰胺/谷氨酰胺/组氨酸(Asn/Gln/His)残基的自动翻转和晶体水分子的重新定向优化氢键网络。仅保留与蛋白质形成至少两个氢键的水分子。在OPLS4力场下进行能量最小化,对重原子施加位置约束(均方根偏差 ≤ 0.30 Å)。所有结构图使用PyMOL 3.1制作。
【数据】Subtilisin UniProt:P00782;Fel d 1 UniProt:P30440;对接软件:AlphaFold 3 v.3.0;精修软件:Schrödinger Suite 2024–3;力场:OPLS4;位置约束RMSD:≤ 0.30 Å;水分子保留标准:与蛋白形成≥2个氢键;结构图软件:PyMOL 3.1
2.6 分子动力学(MD)模拟
复合物的拓扑结构使用GROMACS 2025.1中的AMBER99SB-ILDN力场生成。系统在TIP3P水分子的立方盒子中溶剂化,蛋白质表面与盒子边缘之间的最小距离为10 Å。加入抗衡离子(Na+/Cl−)以中和系统。能量最小化分两个阶段进行:首先使用最速下降算法,随后使用L-BFGS算法。随后,系统在重原子位置约束下进行平衡,包括在NVT系综中模拟2 ns,随后在NPT系综中模拟2 ns(温度:310 K,压力:1 bar)。生产MD在NPT系综中进行,总时长200 ns。涉及氢原子的键使用LINCS算法约束。长程静电相互作用采用粒子网格Ewald(PME)方法处理,范德华相互作用采用10 Å截断值。
【数据】软件:GROMACS 2025.1;力场:AMBER99SB-ILDN;水模型:TIP3P;盒子边缘最小距离:10 Å;抗衡离子:Na+/Cl−;平衡:NVT 2 ns + NPT 2 ns;温度:310 K;压力:1 bar;生产MD时长:200 ns;键约束:LINCS;静电方法:PME;范德华截断:10 Å
2.7 MMPBSA分析
用于结合自由能计算时,溶剂分子(TIP3P水)和抗衡离子(Na+/Cl−)被移除。
【数据】原文未详述
研究结果
3.1 细菌菌株蛋白水解活性筛选
从养宠家庭(狗和/或猫)室内空气中共分离获得60株细菌。其中,菌株2501在脱脂牛奶琼脂上培养24 h后形成明显的透明圈,表明具有胞外蛋白水解活性,因此被选作进一步研究(图1A)。亚甲蓝简单染色显示,显微镜下可见杆状营养细胞及芽孢(图1B)。为确定其分类地位,对菌株2501进行16S rRNA基因测序。所得序列的BLAST分析显示与NCBI数据库中解淀粉芽孢杆菌PI 3具有100%相似性(图1D),随后命名为解淀粉芽孢杆菌Ba2501。16S rRNA序列已提交至NCBI GenBank,登录号为PX760180,该菌株已保藏于中国普通微生物菌种保藏管理中心,保藏号为CGMCC 36139。
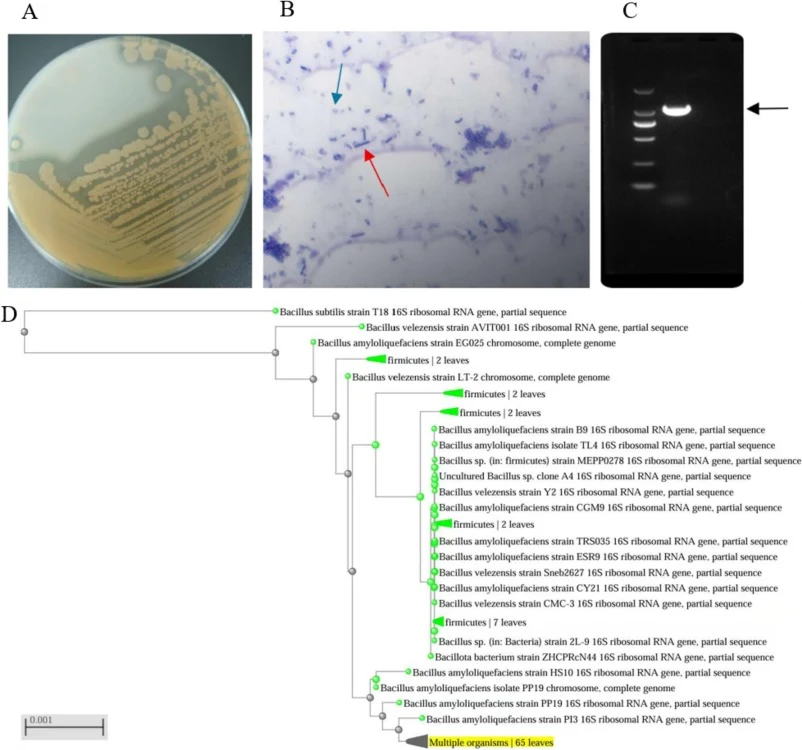
【数据】分离菌株总数:60株;透明圈出现时间:24 h;16S rRNA相似性:100%(与B. amyloliquefaciens PI 3);GenBank登录号:PX760180;CGMCC保藏号:CGMCC 36139
3.2 蛋白酶抑制剂对蛋白酶活性的影响
为表征菌株Ba2501所产蛋白酶的类型,首先评估了各类特异性蛋白酶抑制剂对其粗酶提取物活性的抑制效果。如表1所示,胃蛋白酶抑制剂(天冬氨酸蛋白酶抑制剂)、碘乙酰胺(半胱氨酸蛋白酶抑制剂)和EDTA(金属蛋白酶螯合剂)均未显著降低蛋白水解活性。相反,用苯甲基磺酰氟(PMSF,一种丝氨酸蛋白酶抑制剂)以终浓度1 mmol/L处理则完全消除了酶活性。该抑制谱强烈提示Ba2501的胞外蛋白酶为丝氨酸蛋白酶。为在基因水平确认这一发现,设计了针对解淀粉芽孢杆菌枯草杆菌蛋白酶基因的特异性引物,并使用菌株Ba2501的基因组DNA进行PCR扩增。获得了预期大小的清晰扩增产物(图1C),确认了该菌株中存在编码丝氨酸蛋白酶的基因。生化抑制数据与基因检测共同证实,解淀粉芽孢杆菌Ba2501分泌的主要蛋白酶为枯草杆菌蛋白酶家族的丝氨酸蛋白酶。
【数据】PMSF终浓度:1 mmol/L;PMSF效果:完全消除酶活性;胃蛋白酶抑制剂/碘乙酰胺/EDTA:无显著降低;PCR产物:预期大小清晰条带
3.3 主要室内过敏原的表位降低动力学
为评估解淀粉芽孢杆菌Ba2501的体外表位降低能力,将每种过敏原(Fel d 1、Can f 1或Der p 1)与细菌在营养肉汤中共培养,并通过ELISA随时间测量残余ELISA信号(表1)。菌株Ba2501对三种过敏原均表现出高效但底物依赖的表位降低活性。主要尘螨过敏原Der p 1的表位降低最快、最完全,ELISA可检测表位在4 h内降低64.65%,24 h内降低超过98%,72 h时ELISA信号几乎完全消失(99.86%)。相比之下,主要猫过敏原Fel d 1的表位降低呈现独特的两相特征:前24 h内降低相对缓慢(约30% ELISA信号损失),随后在24至48 h之间快速且完全地降低表位,此后未检测到残余ELISA信号。狗过敏原Can f 1的表位降低最为渐进,72 h后ELISA信号降低67.83%。这些结果证明Ba2501菌株具有降低ELISA可检测表位的能力,对Der p 1和Fel d 1的效率尤其高。观察到的表位降低动力学差异可能反映了三种过敏原在三维结构、切割位点可及性和蛋白酶结合亲和力方面的差异。该实验证据为后续旨在阐明蛋白酶–过敏原相互作用分子基础的信息学和机制研究提供了强有力的依据。
【数据】Der p 1:4 h降低64.65%,24 h降低>98%,72 h降低99.86%;Fel d 1:前24 h降低约30%,24–48 h完全降低,48 h后无残余信号;Can f 1:72 h降低67.83%
3.4 Subtilisin与Fel d 1的对接分析
为研究蛋白酶–过敏原识别的结构基础,选择Fel d 1作为模型过敏原进行深入计算分析,原因如下:(i)其作为主要室内过敏原的临床相关性;(ii)具有完整的高分辨率晶体结构,适合可靠的对接和分子动力学模拟;(iii)在本研究调查的三种过敏原中具有代表性结构特征。使用PDBePISA分析表明,结合界面的埋藏表面积为2392 Ų,溶剂化自由能增益为−39.9 kcal·mol−1。Z检验得出统计显著的P值为0.002。如图2A所示,Subtilisin与Fel d 1之间广泛接触的区域以红色突出显示。AlphaFold 3对接模型揭示了一个紧密堆积的界面,由涉及四个关键残基的“中继样”结构基序稳定,将Fel d 1锁定在蛋白酶上。在Subtilisin的Asp228的Oδ2原子与Fel d 1中赖氨酸残基的ζ-氨基之间形成了中心盐桥(距离:4.1 Å)。该相互作用进一步由Ser110的羟基氧(Oγ)与过敏原中Gly91的主链羰基氧之间的短氢键(1.9 Å)增强(图2B)。该氢键距离低于2.0 Å的常规阈值,表明强静电稳定作用。经过200 ns分子动力学模拟后,subtilisin–Fel d 1复合物表现出增强的结构固结。与初始对接构象(图2B)相比,模拟后的复合物(图2C和D)显示分子间氢键数量显著增加。这表明复合物随时间经历动态稳定化,促进紧密缔合的构象,这可能是Subtilisin后续蛋白水解切割Fel d 1的先决条件。
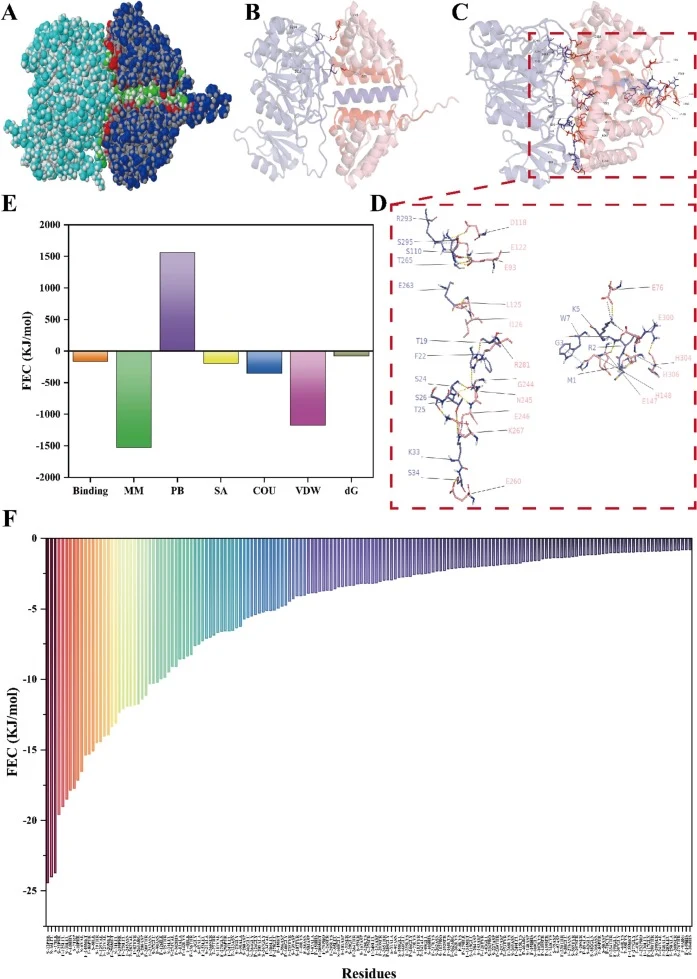
【数据】埋藏表面积:2392 Ų;溶剂化自由能增益:−39.9 kcal·mol−1;Z检验P值:0.002;盐桥距离:4.1 Å(Asp228 Oδ2–Lys ζ-氨基);短氢键距离:1.9 Å(Ser110 Oγ–Gly91主链羰基氧);MD模拟时长:200 ns
3.5 分子动力学模拟分析
在初始模拟阶段(0–40 ns),所有组分的均方根偏差(RMSD)表现出显著波动。subtilisin–Fel d 1复合物的RMSD从约0.5 nm快速增加至约1.0 nm,而Fel d 1和subtilisin的RMSD值也出现中等程度波动,表明存在构象调整和平衡阶段。在50 ns至100 ns之间,RMSD曲线显示较大变化,提示复合物可能发生重排。120 ns后,RMSD值逐渐稳定:复合物RMSD在0.75 nm附近窄幅波动,而Fel d 1(约0.5 nm)和subtilisin(约0.25–0.4 nm)保持更低的波动水平(图3A)。回旋半径的时间演化进一步支持这一动态行为。复合物的总回旋半径(Rg)及其沿x、y、z轴的分量(Rg(x)、Rg(y)、Rg(z))在50 ns至100 ns之间表现出明显的旋转运动,强化了该期间构象转变的可能性(图3B)。溶剂可及表面积(SASA)分析显示,在最初20 ns的微小波动后,subtilisin–Fel d 1复合物的SASA稳定在275–300 nm²,而游离Fel d 1和subtilisin的SASA分别保持在约175 nm²和175–180 nm²(图3C)。复合物的SASA显著低于各单独组分之和,表明结合时埋藏了大面积界面。该结果与先前PDBePISA分析获得的大量埋藏表面积一致,佐证了subtilisin与Fel d 1之间紧密而特异的相互作用。在整个200 ns模拟过程中,复合物内的氢键数量在520至580之间波动,未出现持续下降或大规模破坏(图3D)。这一狭窄的变化范围对应于微小的构象调整,表明氢键网络在整个轨迹中保持稳定。
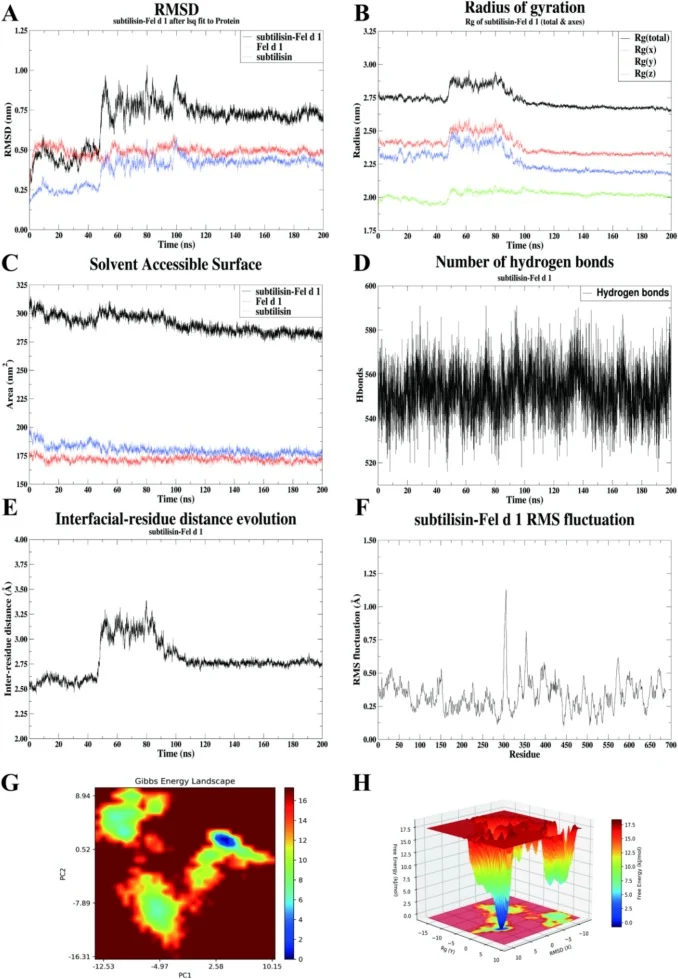
【数据】RMSD(0–40 ns):复合物从约0.5 nm升至约1.0 nm;RMSD(120 ns后):复合物约0.75 nm,Fel d 1约0.5 nm,subtilisin约0.25–0.4 nm;SASA:复合物275–300 nm²,游离Fel d 1约175 nm²,游离subtilisin 175–180 nm²;氢键数量:520–580;模拟时长:200 ns
讨论与解读
室内过敏患病率上升推动了过敏原清除策略的研发。尘螨、猫、狗、啮齿类和蟑螂来源的常见过敏原广泛存在且持久,完全消除困难。蛋白酶介导的过敏原蛋白切割可不可逆地降低致敏性,是颇具前景的路径。本研究分离的解淀粉芽孢杆菌Ba2501分泌枯草杆菌蛋白酶型丝氨酸蛋白酶,能以不同效率降低Fel d 1、Can f 1和Der p 1三种主要室内过敏原的ELISA可检测表位。物理清除和化学变性剂仍是常用手段,而微生物酶等生物途径因特异性、效率和环境兼容性而备受关注。本工作将表位降低实验与计算机制洞察相结合,为蛋白酶介导的过敏原分解提供了整体视角。胞外微生物蛋白酶可水解特定蛋白类过敏原,甚至降低蛋白质毒性。
编译者解读:该研究以“实验降解+计算模拟”双轨策略,把一株环境来源芽孢杆菌的丝氨酸蛋白酶推向了室内过敏原干预的应用场景。其亮点在于用200 ns MD和MMPBSA把酶–底物识别落到具体残基与能量项,为后续定向改造提供了靶点;局限也明显——仅以Fel d 1为计算模型,Can f 1降解效率偏低且机制未解,实际家居环境中的酶稳定性与安全性尚未验证。从合成生物学视角看,将该蛋白酶在底盘细胞中异源表达或定向进化提升对Can f 1的活性,是通往工程化空气净化产品的关键一步。
参考来源
期刊:Science of The Total Environment, 2026
DOI: 10.1016/j.scitotenv.2026.182298
DOI: 10.1016/j.scitotenv.2026.182298