来源:CRISPR-Cas9 engineering for high-level β-galactosidase production in Saccharomyces boulardii(Microbiological Research)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
布拉氏酵母(Saccharomyces boulardii)是唯一获批的益生菌酵母,但其遗传工程工具长期匮乏。本研究系统评估了 EasyClone-MarkerFree 载体系统与 CRISPR-Cas9 在布拉氏酵母中的兼容性,从11个整合位点中鉴定出8个可用位点,并将来自黑曲霉的 lacA 基因(编码胞外β-半乳糖苷酶)整合至单、双及三位点,构建了能高效水解乳糖的工程菌株。三位点整合菌株 Sb-Triple 的比酶活较单位点菌株提升达11.76倍,且保持了天然耐酸特性,并能在奶酪乳清粉中生长和水解乳糖。
研究背景
联合国粮农组织和世界卫生组织将益生菌定义为足量摄入时对宿主有益的活微生物。目前,布拉氏酵母是唯一获批的益生菌酵母,其通过分泌抗病原菌的抗菌蛋白和产生短链脂肪酸等机制维持肠道稳态。该酵母能在37°C良好生长,且耐受严苛的胃肠道条件,因此被推荐用于治疗多种腹泻,并在克罗恩病和溃疡性结肠炎等肠道疾病中显示出效果。然而,针对改性益生菌的法规十分严格,目前尚无改性布拉氏酵母的临床试验,导致安全性、可扩展性和生物防护方面的数据缺乏。因此,开发新的遗传工程工具对该酵母至关重要,有助于探索新的医学途径并减轻转基因益生菌面临的监管负担。CRISPR-Cas9 技术为精准基因组编辑提供了可能,但其在布拉氏酵母中的系统验证仍属空白。
研究方法
2.1 菌株与培养基
大肠杆菌 NZY5α 用于质粒构建、复制和维持。布拉氏酵母 CNCM I-745(Sb-WT)及其后续改造菌株用于转化。大肠杆菌 NZY5α 在 LB 培养基(Oxoid,英国)中于37°C、200rpm 培养;布拉氏酵母在 YPD(20 g/L 葡萄糖、20 g/L 蛋白胨、10 g/L 酵母提取物)中于37°C、250rpm 培养,除非另有说明。所有生成的 CRISPR-Cas9 菌株列于表 S1。
【数据】菌株:大肠杆菌 NZY5α、布拉氏酵母 CNCM I-745;培养基:LB、YPD;温度:37°C;转速:200rpm(大肠杆菌)、250rpm(酵母);YPD 组分:20 g/L 葡萄糖、20 g/L 蛋白胨、10 g/L 酵母提取物
2.2 EasyClone-MarkerFree 兼容性分析
将 EasyClone-MarkerFree 载体集(Addgene,Kit #1000000098)整合载体的同源臂通过 BLAST 和 SnapGene 软件(www.snapgene.com)与布拉氏酵母 CNCM I-745 基因组(GenBank 登录号:GCA_001298375.2)进行比对。记录同一性百分比,并验证同源臂是否与任何开放阅读框(ORF)重合。对于 gRNA 和 PAM 分析,使用相同工具将 gRNA 载体的原间隔序列与布拉氏酵母基因组比对,并评估原间隔序列后是否紧接 5'-NGG-3' PAM 序列。为比较酿酒酵母与布拉氏酵母之间的 PAM 序列,原间隔序列也与酿酒酵母 CEN.PK113-7D 基因组(GCA_000269885.1)比对。对于脱靶分析,每个原间隔序列通过 BLAST 与布拉氏酵母各染色体比对,选取具有17个或更多核苷酸同一性的匹配序列进行进一步检查。潜在脱靶序列随后在 SnapGene 中比对,以评估脱靶序列前或后是否紧接 PAM 序列(5'-NGG-3')。
【数据】载体集:EasyClone-MarkerFree(Addgene Kit #1000000098);基因组:GCA_001298375.2(布拉氏酵母)、GCA_000269885.1(酿酒酵母);同一性阈值:≥17个核苷酸;PAM 序列:5'-NGG-3'
2.3 质粒构建
用于 CRISPR-Cas9 基因组整合的质粒通过 In-Fusion 克隆组装,以兼容的 EasyClone-MarkerFree 整合载体为骨架。整合载体中克隆的表达盒由 TEF1 启动子、来自黑曲霉的 lacA 基因和 PGK1 终止子组成,从 pFMT_lacA 质粒(Magalhães et al. 2014)扩增获得。lacA 基因序列包含天然分泌信号,用于β-半乳糖苷酶的胞外分泌(Domingues et al. 2000; Domingues et al. 2002)。通过1%琼脂糖凝胶电泳确认 lacA 表达盒和整合质粒骨架的正确扩增。正确条带用 QIAquick Gel Extraction Kit(Qiagen,德国)提取纯化。In-Fusion 反应按用户手册(Takara,日本)进行,使用100ng总DNA。骨架和插入片段的DNA质量用 In-Fusion 摩尔比计算器计算。混合所有组分后,混合物在50°C孵育15分钟,转化至大肠杆菌 NZY5α,并用 GenElute™ Plasmid Miniprep Kit(Sigma-Aldrich,美国)纯化。经 Sanger 测序确认构建体后,质粒用 NotI-HF®(New England Biolabs,美国)限制性内切酶线性化,随后用前述凝胶纯化试剂盒去除酶。线性化质粒(供体DNA)用于修复双链断裂并整合 lacA 表达盒。In-Fusion 组装所需的所有 PCR 均按 Phusion™ High-Fidelity DNA Polymerase 用户手册(New England Biolabs,美国)进行。本工作中使用的所有引物和质粒列于表 S1。
【数据】表达盒组分:TEF1 启动子、黑曲霉 lacA 基因、PGK1 终止子;琼脂糖凝胶浓度:1%;In-Fusion DNA 用量:100ng;孵育温度:50°C;孵育时间:15min;限制性内切酶:NotI-HF®;来源质粒:pFMT_lacA
2.4 转化与筛选
大肠杆菌 NZY5α 转化按 NZY5α 感受态细胞方案(Nzytech,葡萄牙)进行。首先,将5µL In-fusion 反应液加入50µL 大肠杆菌感受态细胞中。冰上孵育30分钟后,细胞在42°C热激40秒。随后冰上孵育2分钟,加入450µL SOC 培养基。在37°C、200rpm 培养1小时后,细胞涂布于补充氨苄青霉素(100 µg/mL)的 LB 琼脂平板,37°C 过夜培养。阳性转化子用 NZYTaq II 2x Green Master Mix(Nzytech,葡萄牙)通过菌落 PCR 确认。所有质粒用 GenElute™ Plasmid Miniprep Kit(Sigma-Aldrich,美国)纯化。
对于 CRISPR-Cas9 整合策略,Sb-WT 首先用携带 spCas9 的 pCfB2312 质粒转化。转化基于 PEG/醋酸锂法(Gietz and Schiestl 2007)。酵母细胞在20mL YPD 培养基中于37°C、250rpm 过夜培养。该培养物稀释至20mL 新鲜 YPD 培养基中,使目标 OD600 nm 达到0.1,在相同条件下培养5-6小时至 OD600 nm = 0.8。随后收集细胞,6000g 离心2分钟。将沉淀重悬于1mL 水中,6000g 离心1分钟。沉淀重悬于300µL 0.1M 醋酸锂中,4°C 保存过夜。此过程足以制备5-6次转化的感受态细胞。溶液按以下顺序加入:250µL PEG/LiAC 混合液、10µL 鲑鱼精 DNA(预先在95°C煮沸10分钟)、1µg 质粒和50µL 感受态细胞。PEG/LiAC 混合液由1125µL 50% PEG 3350和125µL 1M 醋酸锂组成,足以进行5次转化。转化混合物在37°C、250rpm 孵育30分钟,然后在42°C热激1小时。之后冰上孵育1分钟,6000g 离心2分钟。沉淀重悬于1mL YPD 中,在37°C、250rpm 培养4小时。恢复后,细胞离心,弃去大部分上清液。剩余上清液用于重悬细胞,涂布于补充 G418(100 µg/mL)的 YPD 琼脂平板。随后,携带 pCfB2312 质粒的 Sb-WT 用 gRNA 质粒和相应的含 lacA 表达盒的供体 DNA 转化。转化方法与上述相同,但转化混合物含1µg 线性化供体 DNA 和0.5µg 针对所选整合位点的 gRNA 质粒。最终涂布于补充 G418(100 µg/mL)、clonNAT(50 µg/mL)和 X-gal(40 µg/mL)的 YPD 琼脂平板。KanMX 和 clonNAT 分别是 pCfB2312 和 gRNA 质粒的酵母筛选标记。X-gal 用于筛选表达 lacA 基因的阳性转化子。选择蓝色转化子后,用 NZYTaq II 2x Green Master Mix(NZYtech,葡萄牙)进行菌落 PCR,确认表达盒的正确位置。CRISPR-Cas9 介导的基因组整合后,阳性转化子在 YPD 培养基中连续传代5-6次,直至无法在两种抗生素存在下生长,以消除 pCfB2312 和 gRNA 质粒。
【数据】大肠杆菌转化:5µL In-fusion 反应液 + 50µL 感受态细胞;冰孵育:30min;热激:42°C、40s;冰孵育:2min;SOC:450µL;恢复培养:37°C、200rpm、1h;氨苄青霉素:100 µg/mL;酵母转化:OD600 nm = 0.1→0.8,培养5-6h;醋酸锂浓度:0.1M;PEG/LiAC:250µL(1125µL 50% PEG 3350 + 125µL 1M LiAC);鲑鱼精 DNA:10µL,95°C煮沸10min;质粒:1µg;感受态细胞:50µL;孵育:37°C、250rpm、30min;热激:42°C、1h;恢复:37°C、250rpm、4h;筛选抗生素:G418 100 µg/mL、clonNAT 50 µg/mL、X-gal 40 µg/mL;质粒消除传代:5-6次
2.5 半乳糖生长实验
为研究半乳糖对布拉氏酵母生长的影响,使用四种含不同葡萄糖和半乳糖浓度的培养基。所用培养基如下:YPD(20 g/L 葡萄糖、20 g/L 蛋白胨、10 g/L 酵母提取物)、YPD1/2(10 g/L 葡萄糖、20 g/L 蛋白胨、10 g/L 酵母提取物)、YPG(20 g/L 半乳糖、20 g/L 蛋白胨、10 g/L 酵母提取物)或 YPGG(10 g/L 半乳糖、10 g/L 葡萄糖、20 g/L 蛋白胨、10 g/L 酵母提取物)。细胞在20mL YPD 培养基中于37°C、250rpm 过夜培养。该培养物稀释(OD600 = 0.1)至25mL 上述选定培养基中,在37°C、250rpm 培养48小时。定期取样监测生物量和糖类/发酵代谢物浓度。这些实验使用 Sb-WT 和 lacA 整合于 XII-5 位点的菌株(Sb-XII5)进行。
【数据】培养基:YPD(20 g/L 葡萄糖)、YPD1/2(10 g/L 葡萄糖)、YPG(20 g/L 半乳糖)、YPGG(10 g/L 半乳糖 + 10 g/L 葡萄糖);蛋白胨:20 g/L;酵母提取物:10 g/L;接种 OD600:0.1;培养体积:25mL;温度:37°C;转速:250rpm;时间:48h
2.6 β-半乳糖苷酶活性实验
为表征改造菌株的生长和 lacA 表达,酵母细胞在20mL YPD 培养基中于37°C、250rpm 过夜培养。该培养物……(原文此处截断)
【数据】培养基:YPD;体积:20mL;温度:37°C;转速:250rpm;原文未详述后续步骤
研究结果
3.1 11个 EasyClone-MarkerFree 整合载体中有8个与布拉氏酵母兼容
为评估 EasyClone-MarkerFree 载体集与布拉氏酵母的兼容性,我们首先分析了该载体集提供的整合质粒(表1)。每个整合质粒的上游和下游同源臂与布拉氏酵母 CNCM I-745 基因组(也称"biocodex";GenBank 登录号:GCA_001298375.2)进行比对,该菌株广泛用于商业和临床治疗胃肠道疾病(Czerucka and Rampal 2019; Pal et al. 2024; McFarland and Li 2025)。所有整合载体的同源臂与布拉氏酵母 CNCM I-745 的核苷酸同一性为93.66-100%(表1)。尽管相似性较高,为确定同源臂是否兼容,我们进一步分析了其错配情况。虽然 XII-1 位点的整合载体具有较高的核苷酸同一性百分比(93.66%和95.87%),但下游同源臂的错配与 PTK1 的 ORF 重合。该基因编码一种推测的丝氨酸/苏氨酸蛋白激酶,参与精胺摄取和多胺转运(Nozaki et al. 1996)。HDR 后,这些错配将导致4个密码子编码不同的氨基酸(Asn553Ser、Thr616Ile、Pro619Thr 和 Ser620Pro)。尽管 XI-5 下游同源臂具有高同一性百分比(99.56%),HDR 后也会在 ZRT3 基因中引入密码子改变,该基因负责液泡锌转运(MacDiarmid et al. 2000)。该改变导致丝氨酸被苯丙氨酸取代(Ser10Phe)。这些变化可能影响蛋白活性,在使用这些整合载体前需要额外确认以确保细胞功能不受影响。因此,XI-1 和 XI-5 整合载体是仅有的两个被认为与布拉氏酵母 CNCM I-745 不兼容的载体。有趣的是,XII-4 位点的上游同源臂呈现两个同义错配,表明无氨基酸改变。
【数据】同源臂同一性:93.66-100%;XII-1 下游同源臂同一性:93.66%和95.87%;XI-5 下游同源臂同一性:99.56%;XII-1 错配导致氨基酸改变:Asn553Ser、Thr616Ile、Pro619Thr、Ser620Pro;XI-5 错配导致氨基酸改变:Ser10Phe;不兼容位点:XI-1、XI-5;兼容位点数:8/11
3.2 EasyClone-MarkerFree 载体集的11个 gRNA 质粒中有8个与布拉氏酵母兼容
确认整合载体兼容性后,我们借助 BLAST(基本局部比对搜索工具)和 SnapGene 评估了 gRNA 的兼容性。因此,将布拉氏酵母基因组中的原间隔序列与载体集中每个 gRNA 质粒的原间隔序列进行比较。同时分析了基因组中 PAM 序列的存在。我们寻找化脓性链球菌 Cas9(SpCas9)偏好的 PAM 序列5'-NGG-3'(N = A、T、C、G)(Goldberg et al. 2021; Li et al. 2023)。对于原间隔序列,"种子"区域(位置+1至+12)的错配比 PAM 远端(位置+13至+20)错配更不易被 Cas9 耐受,"种子"区域已显示影响 Cas9/gRNA 复合物的活性(Hsu et al. 2013; Moreb and Lynch 2021)。在本分析中,我们认为原间隔序列中的单个错配即使 gRNA 质粒与布拉氏酵母不兼容,因为与其他100%匹配的位点相比,Cas9 切割可能效率低下。表2显示了每个位点的原间隔序列和 PAM 序列。我们发现在 XI-1 和 XI-2 原间隔序列的远端区域有2个错配,在 XI-5 原间隔序列的"种子"区域有1个错配。因此,它们被认为与布拉氏酵母不兼容。由于 PAM 序列紧接在这些原间隔序列上游(表2),可以设计特异性 gRNA 使这些位点与布拉氏酵母兼容。除 XI-1 位点的 PAM 序列外,所有其他 PAM 序列与酿酒酵母 CEN.PK113-7D 基因组(GenBank 登录号:GCA_002885995.1)中验证的相同(表S2)。我们还分析了每个靶位点染色体位置的坐标,虽然布拉氏酵母和酿酒酵母之间的精确坐标不同,但所有靶位点位于相同染色体的相似基因间区域,侧翼为相同基因(表S2)。
【数据】PAM 序列:5'-NGG-3';XI-1 和 XI-2 远端错配数:2;XI-5 种子区域错配数:1;不兼容 gRNA 位点:XI-1、XI-2、XI-5;兼容 gRNA 位点数:8/11;种子区域定义:位置+1至+12;远端区域定义:位置+13至+20
3.3 兼容 gRNA 未发现脱靶
为进一步评估显示100%原间隔序列核苷酸同一性的位点的兼容性,分析了整个基因组中潜在的脱靶位置(表3)。脱靶活性是 CRISPR-Cas 系统的主要局限,在设计 CRISPR-Cas 编辑策略时最小化该风险至关重要(Guo et al. 2023)。在之前的 gRNA 兼容性分析中,标准排除了未显示100%同一性的 gRNA。然而,对于本分析,重要的是考虑最多三个错配的序列,因为 Cas9 仍可识别这些位点。选择该阈值是因为多项研究报告 Cas 效率在2或3个错配后急剧下降(Hsu et al. 2013)。相应地,每个原间隔序列使用 BLAST 与所有布拉氏酵母染色体比对,以鉴定与原间隔序列匹配17个或更多核苷酸的序列。每个原间隔序列比对的結果见表S3。选择具有17个或更多比对碱基的序列后,我们分析了每个潜在脱靶位点下游或上游是否紧接 PAM 序列。还考虑了其他因素,如"种子"区域内的错配和连续错配的存在,因为这些被报道为排除潜在脱靶的重要标准(Hsu et al. 2013; Zheng et al. 2017)。总共仅鉴定出三个潜在脱靶位置,分别对应 X-2、XI-3 和 XII-4 位点(表3),因为所有其他比对显示与原间隔序列匹配少于17个核苷酸。对于 X-2 脱靶,序列两侧均未定位到 PAM 序列,且在"种子"区域(位置+10)发生一个错配。对于 XI-3 脱靶,在"种子"区域(位置+10)存在一个缺口,另有2个连续错配(位置+18至+20)。最后,对于 XII-4 脱靶位点,上游或下游均无 PAM 序列,且在"种子"区域(位置+1和+6)检测到错配。由于所有潜在脱靶在种子区域至少含有一个缺口或错配,且均未呈现 SpCas9 偏好的 PAM 序列,这些位点被认为与布拉氏酵母兼容,脱靶被排除。基于该分析,11个位点中有8个被确定与布拉氏酵母 CNCM I-745 CRISPR-Cas9 基因组编辑完全兼容,且无明显脱靶可能。选择 X-2、X-4、XI-3 和 XII-5 位点用于生成本工作中使用的 lacA 菌株(表S1)。
【数据】脱靶分析阈值:≥17个核苷酸匹配;潜在脱靶位点:X-2、XI-3、XII-4;X-2 种子区域错配:位置+10;XI-3 种子区域缺口:位置+10,连续错配:位置+18至+20;XII-4 种子区域错配:位置+1和+6;完全兼容位点:8/11;选定整合位点:X-2、X-4、XI-3、XII-5
3.4 半乳糖影响布拉氏酵母生长和代谢
在实验验证多个位点之前,首先靶向先前鉴定的 XII-5 位点整合 lacA 表达盒,生成 Sb-XII5 菌株。该菌株在与野生型菌株(Sb-WT)相同的条件下培养,随后对两者进行比较。由于β-半乳糖苷酶将乳糖水解为葡萄糖和半乳糖,通过分析 Sb-WT 在含葡萄糖、半乳糖或两种糖同时存在的培养基中的生长,评估了本研究所用菌株消耗半乳糖的能力。这些实验特别相关,因为先前研究报道,在包括本工作所用菌株在内的多种布拉氏酵母菌株中,存在导致 PGM2 基因(编码磷酸葡萄糖变位酶)早期截短的突变(Trp426*)(Liu et al. 2018)。该突变与益生菌酵母中观察到的低效半乳糖代谢有关(图1a),尽管文献报道了关于布拉氏酵母是否能在半乳糖中生长的矛盾结果……
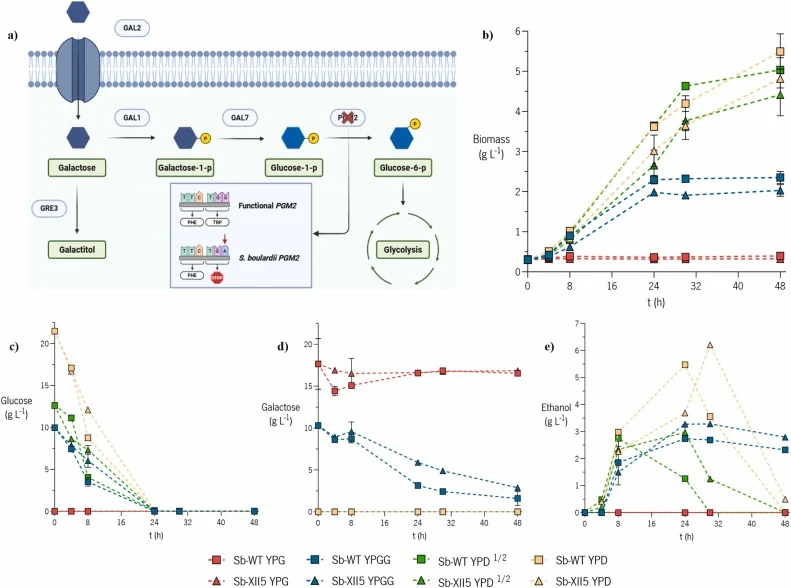
【数据】菌株:Sb-XII5、Sb-WT;整合位点:XII-5;突变:PGM2 Trp426*;培养基:含葡萄糖、半乳糖或两者;原文未详述具体生长数据
3.5 改造菌株在 YPDL 中的表征
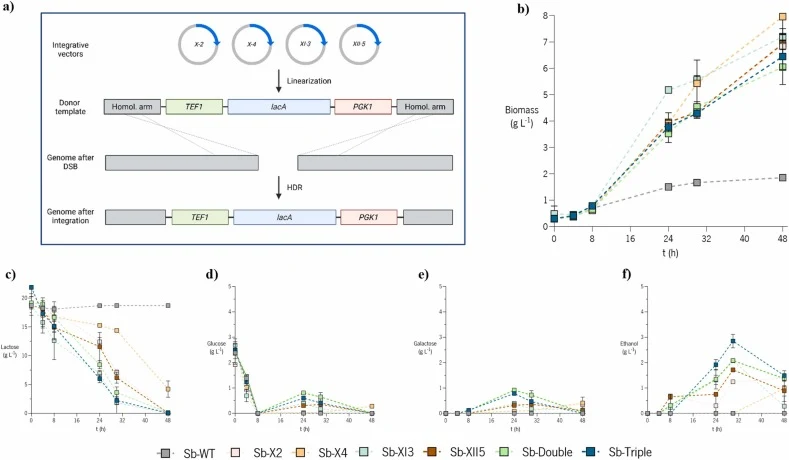
【数据】菌株:Sb-X2、Sb-4、Sb-XI3、Sb-XII5、Sb-Double、Sb-Triple;培养基:YPDL;发酵时间:48h;原文未详述具体数值
3.6 改造菌株在 YPD 中的表征
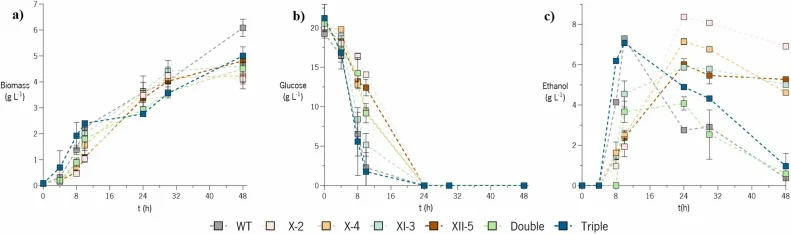
【数据】培养基:YPD;发酵时间:48h;原文未详述具体数值
3.7 发酵48小时的β-半乳糖苷酶活性
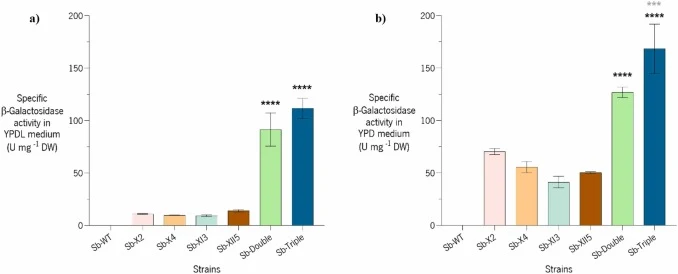
【数据】时间:48h;酶活单位:U/mg DW;培养基:YPDL、YPD;原文未详述具体数值
3.8 Sb-Triple 在 YPL 培养基(50 g/L 乳糖)中的发酵特性
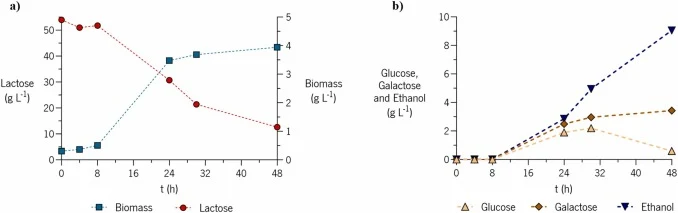
【数据】菌株:Sb-Triple;培养基:YPL;乳糖浓度:50 g/L;发酵时间:48h;原文未详述具体数值
3.9 Sb-WT 和 Sb-Triple 在不同 pH 下的 CFU
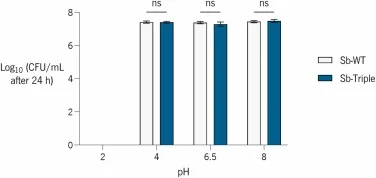
【数据】菌株:Sb-WT、Sb-Triple;pH 范围:2-8;时间:24h;统计显著性:α=0.05,ns p>0.05;原文未详述具体 CFU 数值
3.10 Sb-Triple 在 CWP 发酵中的生长和乳糖消耗
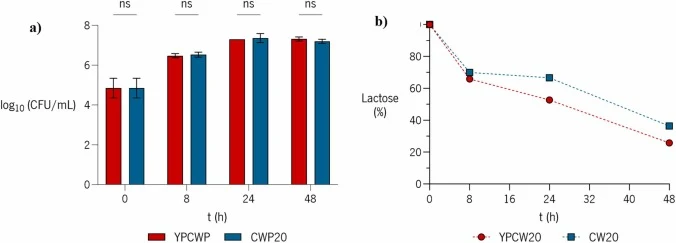
【数据】菌株:Sb-Triple;培养基:YPCW、CWP20;统计显著性:α=0.05,ns p>0.05;原文未详述具体数值
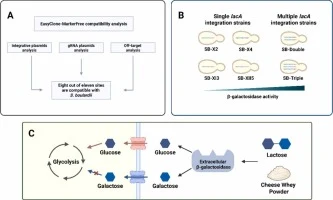
【数据】原文未详述
讨论与解读
本研究分析了布拉氏酵母中 CRISPR-Cas9 介导基因组整合的可能整合位点。8个鉴定出的整合位点中有4个经实验验证,为未来开发与乳糖不耐受应用相关的工程菌株提供了基础。首先,分析了 EasyClone-MarkerFree 载体集,评估其整合载体和 gRNA 载体与布拉氏酵母的兼容性。分析聚焦于同源臂同一性、gRNA 同一性、PAM 存在和脱靶可能性。同源臂分析排除了 XI-1 和 XI-5 位点,因为 HDR 后下游同源臂将分别在 PTK1 和 ZRT3 的 ORF 中引入密码子改变,导致翻译为不同氨基酸,可能影响蛋白功能。关于 gRNA 分析,XI-1、XI-2 和 XI-5 gRNA 质粒也被认为不兼容,因为它们与靶位点并非100%相同。5'-NGG-3' PAM 序列存在于所有位点,仅 XI-1 位点在布拉氏酵母中的 PAM 序列与酿酒酵母不同。这意味着如果为 XI-1、XI-2 和 XI-5 位点设计新的 gRNA,这些位点可以变得与布拉氏酵母兼容。此外,对于 XI-1 和 XI-5 位点,还需要设计新的下游同源臂以实现无额外密码子改变的 HDR。
编译者解读:该研究首次系统验证了 EasyClone-MarkerFree 载体集在布拉氏酵母中的适用性,将可用整合位点从零扩展至8个,具有工具学价值。三位点整合策略使β-半乳糖苷酶活性提升11.76倍,且未损害生长和耐酸性,展示了剂量效应在益生菌工程中的可行性。但研究局限于体外酶活和生长表征,未涉及动物模型或临床验证;lacA 基因组成型表达也缺乏时空控制。未来可结合诱导型启动子和生物防护回路,推动工程益生菌的临床转化。
参考来源
期刊:Microbiological Research, 2026
DOI: 10.1016/j.micres.2026.128734
DOI: 10.1016/j.micres.2026.128734