来源:A transcription Factor-sRNA cascade enhances acid tolerance in Lactococcus lactis by rewiring arginine metabolism(Food Microbiology)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
乳酸乳球菌是乳制品发酵的核心菌种,但发酵过程中乳酸积累引发的酸胁迫会抑制菌体生长和nisin等高值产物的合成。本研究在nisin生产菌株L. lactis F44中揭示了一条由转录因子AcrR1与sRNA s042组成的新型多层调控级联:AcrR1直接抑制s042转录,酸胁迫下AcrR1下调解除抑制,s042随之激活精氨酸代谢调控因子ArgR和AhrC,重塑精氨酸代谢方向,最终增强酸耐受性。该发现为工业发酵菌株的耐酸工程改造提供了精确的遗传靶点。
研究背景
乳酸乳球菌是一种食品级细菌,广泛应用于食品工业,在医药与健康领域也受到关注。工业生产中,乳酸乳球菌常遭遇低pH、高盐和抗生素等多种胁迫,其中酸胁迫尤为关键——糖酵解产生的乳酸不断积累导致环境酸化,限制细胞生长并降低抗菌肽nisin等有价值产物的生物合成。因此,理解其耐酸机制对提升工业应用性能至关重要。
细菌感知和响应环境变化的能力依赖于转录因子和sRNA的协同基因调控。在乳酸乳球菌中,研究团队此前已系统鉴定并表征了多个参与酸胁迫适应的关键转录调控因子,包括YthA、CodY、LssR,以及近期报道的TetR家族阻遏蛋白AcrR1。与此同时,L. lactis F44中已表征了多个酸响应sRNA:s015通过保守区域靶向多个生存关键基因;C263调控细胞壁……
研究方法
2.1 引物、菌株与培养条件
本研究所用菌株见补充表S1。乳酸乳球菌菌株在30 °C下于GM17肉汤(含0.5%葡萄糖的M17肉汤)中培养。加入1.5%琼脂制备固体培养基。大肠杆菌TG1在37 °C、220 rpm振荡条件下于Luria-Bertani培养基(0.5%酵母提取物、1%胰蛋白胨、1% NaCl)中培养,用于质粒克隆。质粒pLEB124和pCS1966分别用于基因过表达和敲除。在大肠杆菌中筛选质粒时,肉汤中加入100 μg/mL红霉素;在乳酸乳球菌菌株中终浓度为5 μg/mL。固体培养基中抗生素浓度加倍。
【数据】菌株:L. lactis F44、E. coli TG1;培养基:GM17肉汤(0.5%葡萄糖)、LB培养基(0.5%酵母提取物、1%胰蛋白胨、1% NaCl);温度:30 °C(乳酸乳球菌)、37 °C(大肠杆菌);转速:220 rpm;抗生素浓度:大肠杆菌100 μg/mL红霉素、乳酸乳球菌5 μg/mL;琼脂浓度:1.5%
2.2 质粒与重组菌株构建
引物见补充表S2。补充表S2中所示的pLEB124和pET28a衍生质粒通过无缝克隆技术构建,流程见图S1。L. lactis F44基因组按照细菌基因组DNA提取试剂盒(天根生化,北京,中国)说明书提取。目标基因从提取的基因组DNA中扩增,两侧携带与线性化pLEB124同源的约20 bp臂序列;质粒pLEB124使用Phanta Max超保真DNA聚合酶通过PCR线性化,然后用DNA凝胶回收试剂盒(天根生化,北京,中国)纯化。随后,含目标DNA的片段使用ClonExpress II一步克隆试剂盒(诺唯赞)组装到线性化pLEB124上,并克隆至E. coli TG1中。重组pLEB124衍生质粒用TIANprep Mini质粒试剂盒(天根生化,北京,中国)提取,然后通过电转化导入L. lactis F44,获得重组乳酸乳球菌菌株。用相同方法构建pET28a衍生质粒,然后转化至E. coli BL21 (DE3)中进行蛋白表达和纯化。pRSF-s042的构建与pLEB124衍生质粒类似,不同之处在于sRNA序列直接与转录终止子融合。s042突变序列(M1和M2)由GENEWIZ(苏州,中国)直接合成,然后克隆至相应载体。
【数据】同源臂长度:约20 bp;试剂盒:细菌基因组DNA提取试剂盒、DNA凝胶回收试剂盒、ClonExpress II一步克隆试剂盒、TIANprep Mini质粒试剂盒;菌株:E. coli TG1、E. coli BL21 (DE3);质粒:pLEB124、pET28a、pRSF-s042;突变体:M1、M2
2.3 基因敲除菌株构建
基因敲除菌株采用基于5-氟乳清酸的反向筛选系统构建,参照先前研究(Solem等,2008)。流程见图S2。基因acrR1的上下游同源臂组装到线性化质粒pCS1966上,获得重组质粒pCS1966-ΔAcrR1。质粒pCS1966-ΔAcrR电转化至L. lactis F44,通过红霉素抗性筛选获得第一次交叉重组。经过系列传代后,将细胞悬液涂布到含5-氟乳清酸的合成培养基上,通过菌落PCR筛选获得acrR1敲除菌株ΔAcrR1。用相同方法获得基因argR和ahrC敲除菌株ΔArgR和ΔAhrC。
【数据】筛选试剂:5-氟乳清酸;质粒:pCS1966;敲除基因:acrR1、argR、ahrC;敲除菌株:ΔAcrR1、ΔArgR、ΔAhrC;筛选方法:红霉素抗性筛选、菌落PCR
2.4 DNA pulldown实验与质谱分析
DNA pulldown实验用于筛选sRNA s042的候选转录调控因子。生物素标记探针与链霉亲和素磁珠之间高选择性且稳定的相互作用是捕获与DNA探针结合蛋白的关键。使用5′端生物素标记的引物扩增含s042预测启动子区域的279 bp序列(L. lactis F44基因组,401914…402192)。PCR纯化产物用作DNA pulldown探针,与链霉亲和素磁珠(Dynabeads M-280链霉亲和素,Thermo Fisher Scientific)在室温下孵育30 min。蛋白混合物来自培养8 h后的L. lactis F44细菌裂解液,与结合了DNA探针的磁珠混合,室温下轻摇30 min。然后,将磁珠再次加入细胞提取物中,在4 °C下再孵育30 min。随后用含F44片段化基因组DNA的缓冲液洗涤磁珠以去除非特异性结合蛋白。特异性DNA结合蛋白用洗脱缓冲液(25 mM Tris-HCl和500 mM NaCl)洗脱,并在4 °C下用三氯乙酸沉淀。沉淀的蛋白用Tris-HCl缓冲液(1 M,pH 8.0)溶解,随后通过液相色谱(LC)和串联质谱(LC-MS/MS)分析(BIOMS,中国)。质控方面,数据用scaffold Q+(版本4.6.2)处理,参数如下:蛋白和多肽的假发现率均小于1%,每个蛋白至少鉴定到一条特异性多肽。对照组为磁珠不与DNA探针结合但流程相同的组。实验组出现而对照组未出现的转录调控因子被认为是目标基因的候选转录调控因子。
【数据】探针长度:279 bp;基因组位置:401914…402192;孵育时间:30 min(室温)、30 min(4 °C);培养时间:8 h;洗脱缓冲液:25 mM Tris-HCl、500 mM NaCl;假发现率:<1%;质控软件:scaffold Q+ v4.6.2
2.5 EMSA
选择调控因子候选物WP_010906046.1、WP_017864420.1和WP_010905240.1,使用EMSA验证其与DNA探针(s042启动子)的相互作用,参照先前研究并稍作修改(Song等,2024)。将His标签蛋白插入pET28A的多克隆位点,然后在E. coli BL21 (DE3)中诱导表达。为进一步确定候选调控因子在体外的DNA结合特异性,重组蛋白通过Hi-Trap™ HP柱(GE Healthcare)纯化,并保存于−80 °C。荧光Cy5标记的DNA片段制备如下:使用含16 bp同源臂(AGCCAGTGGCGATAAG)的引物扩增s042启动子区域的DNA片段,PCR产物纯化。然后,PCR产物再用Cy5标记引物扩增一次,获得Cy5标记的s042启动子DNA片段,探针保存于−20 °C。结合反应在20 μL体系中进行,含1 × EMSA缓冲液(25 mM Tris-HCl,pH 7.9,0.2 mg/mL BSA,25%甘油)、50 nM荧光标记DNA探针和指定浓度的纯化重组蛋白。混合物在25 °C孵育30 min以形成蛋白-DNA复合物。反应产物在0.5 × TBE缓冲液中用8%非变性聚丙烯酰胺凝胶在4 °C下分离。蛋白-DNA复合物用荧光成像系统(Tanon 5200Multi,中国)可视化。
【数据】蛋白候选物:WP_010906046.1、WP_017864420.1、WP_010905240.1;同源臂长度:16 bp(AGCCAGTGGCGATAAG);EMSA缓冲液:25 mM Tris-HCl pH 7.9、0.2 mg/mL BSA、25%甘油;探针浓度:50 nM;孵育条件:25 °C、30 min;凝胶:8%非变性聚丙烯酰胺;缓冲液:0.5 × TBE;电泳温度:4 °C;蛋白保存温度:−80 °C;探针保存温度:−20 °C
2.6 DNase I足迹实验
DNase I足迹实验按照Wang等(2012)发表的方法进行。主要步骤如下:s042启动子DNA片段通过PCR获得,并通过第二轮PCR用6-羧基荧光素(FAM)探针标记。结合反应使用350 ng s042探针和梯度量的蛋白(25 °C,30 min)。然后加入10 μL 0.015单位的DNase I(Promega)进行消化(37 °C,60 s),加入十二烷基硫酸钠(SDS)终止反应。进行酚/氯仿抽提去除蛋白,随后乙醇沉淀分离DNA。样品溶于MiniQ超纯水,用DNA测序仪(ABi 3500,Applied Biosystems)分析。
【数据】探针用量:350 ng;结合条件:25 °C、30 min;DNase I用量:10 μL、0.015单位;消化条件:37 °C、60 s;终止试剂:SDS;标记物:FAM;仪器:ABi 3500 DNA测序仪
2.7 RNA提取与RT-qPCR转录分析
总RNA用细菌总RNA试剂盒(ZOMANBIO,北京,中国)按照制造商说明书从乳酸乳球菌中提取。使用TransScript® Green One-Step RT-qPCR SuperMix(全式金生物,北京)一步实现RNA的反转录和qPCR。RT-qPCR在LightCycler® 480(Roche Diagnostics,Penzberg,德国)上进行。用于标准化循环阈值(CT)值的内参为16S rRNA。相对q……
【数据】试剂盒:细菌总RNA试剂盒、TransScript® Green One-Step RT-qPCR SuperMix;仪器:LightCycler® 480;内参:16S rRNA;检测方法:RT-qPCR
研究结果
3.1 通过DNA pulldown和EMSA验证鉴定AcrR1为s042的直接上游转录阻遏蛋白
在先前研究中,通过RNA深度测序鉴定了与酸胁迫响应和调控相关的sRNA s042(Wu等,2018b)。s042的转录水平在酸胁迫下显著上调,这促使我们对其上游转录调控机制进行详细研究。s042的长度为143 bp,多序列比对分析显示该序列在乳酸乳球菌中高度保守,相似性高于94%(图S3)。这种保守性凸显了s042在乳酸乳球菌中的普遍性和重要性。进行DNA pulldown实验以获得调控s042转录的候选转录因子。实验组(磁珠结合含目标s042启动子区域的DNA探针)和对照组(不使用DNA探针)的蛋白样品收集后进行LC-MS/MS分析。实验组检测到而对照组未检测到的蛋白被认为是与s042启动子区域结合的特定结合蛋白。筛选到三个候选转录因子,包括WP_010906046.1(氮代谢调节蛋白P-II)、WP_017864420.1(氧化应激响应全局调控因子)和WP_010905240.1(TetR/AcrR家族转录调控因子,命名为AcrR1(Jian等,2024)),汇总于表1。随后,我们进行EMSA研究纯化的候选蛋白与s042启动子区域的体外特异性结合。如图1所示,s042启动子DNA与蛋白WP_010906046.1和WP_017864420.1在0至6 μM蛋白浓度范围内孵育后未观察到可检测的条带迁移,与阴性对照组(来自16s rRNA基因的随机序列)一致。相反,在AcrR1组中,蛋白浓度为2 μM时即观察到条带迁移。随着蛋白浓度增加(0-6 μM),迁移速率减慢,表明AcrR1能够在体外特异性结合s042启动子区域。虽然我们此前的工作鉴定AcrR1为多种途径(如辅酶A和氨基酸合成以及糖转运)的阻遏蛋白,参与酸耐受性,但ΔacrR1突变体显著的酸敏感表型暗示存在更核心的调控机制(Jian等,2024)。AcrR1与酸诱导sRNA s042启动子的特异性结合为这种主开关提供了有力的候选。因此我们假设AcrR1至少部分通过直接抑制s042转录来介导酸耐受性,从而控制对胁迫响应至关重要的下游调控级联。
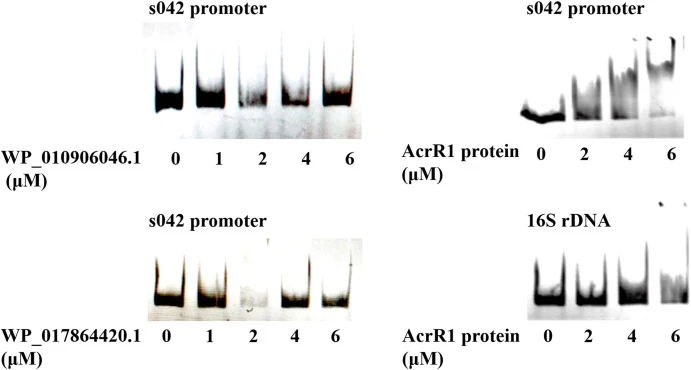
【数据】s042长度:143 bp;序列保守性:>94%;候选蛋白:WP_010906046.1、WP_017864420.1、WP_010905240.1(AcrR1);EMSA蛋白浓度范围:0-6 μM;AcrR1条带迁移起始浓度:2 μM;阴性对照:16s rRNA基因随机序列
3.2 AcrR1在s042启动子中结合的精确定位及序列鉴定
采用DNase I足迹分析转录因子AcrR1与s042启动子区域之间的结合位点。如图2A所示,我们鉴定了一个16 bp的结合区域,5′-GAAAACTGATTTGGTA-3′,受AcrR1蛋白保护免受DNase I消化。该结合位点位于s042编码序列上游,具体为−109至−94位。使用RNAfold(http://rna.tbi.univie.ac.at/)预测s042启动子的二级结构,发现结合位点位于s042启动子的发夹结构中(图2B)。基于这些结果,表明AcrR1能够有效结合s042启动子的发夹结构,从而调控s042转录。在MEME Motif数据库中分析结合序列5′-GAAAACTGATTTGGTA-3′,发现其与转录因子LexA相关的基序高度相似,包括来自谷氨酸棒杆菌、结核分枝杆菌和艰难梭菌的LexA基序(图2C)。据报道,LexA通过直接结合DNA基序参与SOS DNA修复相关基因的转录抑制,这种抑制在环境胁迫下会被解除,如在大肠杆菌(Courcelle等,2001)、枯草芽孢杆菌(Goranov等,2006)、铜绿假单胞菌(Cirz等,2006)和金黄色葡萄球菌(Cirz等,2007)中。AcrR1属于TetR/AcrR转录调控因子家族,这是细菌中最常见的转录调控因子家族之一,在细菌适应酸胁迫、抗生素耐药和其他环境胁迫中发挥关键作用。AguR和McbR是两个代表性的TetR家族调控因子,通过调控氨基酸代谢相关基因参与酸胁迫响应。例如,在酸胁迫下,铜绿假单胞菌中的AguR通过调控aguAB操纵子的表达促进胍丁胺(精氨酸脱羧酶(ADC)途径的中间体)的利用,进而增强胞内pH和铜绿假单胞菌的酸耐受性(Nakada等,2001)。类似地,McbR作为谷氨酸棒杆菌中的全局转录因子,主要控制含硫氨基酸生物合成相关基因(Rey等,2005)。McbR的缺失显著影响谷氨酸棒杆菌的生长和代谢,导致细菌在酸性环境中的存活率下降(Kromer等,2008)。然而,AcrR1调控s042转录并影响L. lactis F44酸胁迫的机制仍不清楚,需要进一步研究。
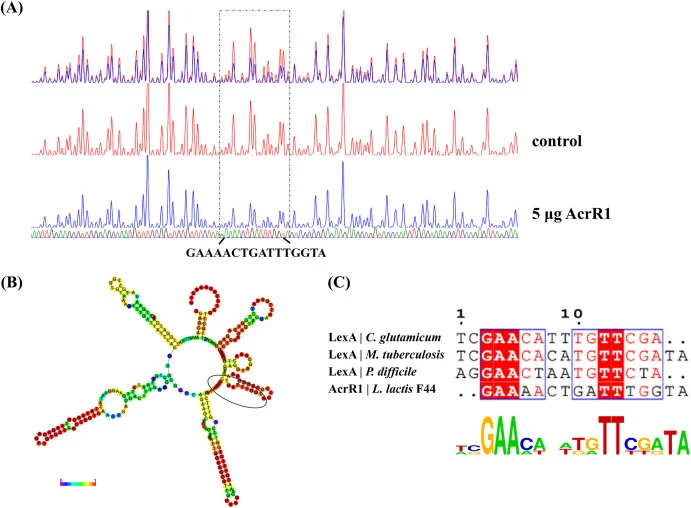
【数据】结合区域长度:16 bp;结合序列:5′-GAAAACTGATTTGGTA-3′;结合位置:−109至−94;预测工具:RNAfold;结合位点结构:发夹结构;相似基序:LexA(谷氨酸棒杆菌、结核分枝杆菌、艰难梭菌);调控因子家族:TetR/AcrR
3.3 AcrR1通过抑制s042转录来抑制酸耐受性
为研究AcrR1对L. lactis F44酸耐受性和s042转录的影响,我们构建了AcrR1过表达菌株F44/AcrR1和基于5-FOA筛选的同源重组双交换法敲除菌株ΔAcrR1。基因过表达和敲除流程见图S1和图S2。然后,通过比较三株菌在pH 3.0培养基中暴露3 h后的存活率来评估菌株F44、F44/AcrR1和ΔAcrR1的酸耐受性。菌株F44/AcrR1的存活率仅为F44的77.8%,而菌株ΔAcrR1的存活率显著增加,为F44的28.7倍(图3A)。结果表明AcrR1对L. lactis F44的酸耐受性起抑制作用。通过RT-qPCR进一步检测酸胁迫条件下acrR1的转录变化。在pH 3.0和pH 5.0培养基中暴露3 h后,F44中acrR1的转录水平分别为正常条件(pH 7.0)下的0.37和0.71倍(图3B)。这表明酸胁迫下acrR1转录下调。随后,通过比较菌株F44、F44/AcrR1和ΔAcrR1在pH 7.0和pH 5.0培养基中培养1 h后s042的转录水平,研究AcrR1对酸胁迫下s042转录水平的影响。以F44中s042的转录水平为基准。如图3C所示,在正常条件(pH 7.0)下,F44/AcrR1中s042的转录水平降至F44的0.74倍,而ΔAcrR1中s042的转录水平显著增加至1.25倍。这证实了AcrR1对s042转录具有抑制作用。在酸胁迫下,s042的转录水平(F44:5.21倍,F44/AcrR1:3.54倍,ΔAcrR1:6.81倍)相比pH 7.0下的F44显著增加,且三株菌之间的相对趋势与正常条件一致。此外,我们评估了AcrR1在d……
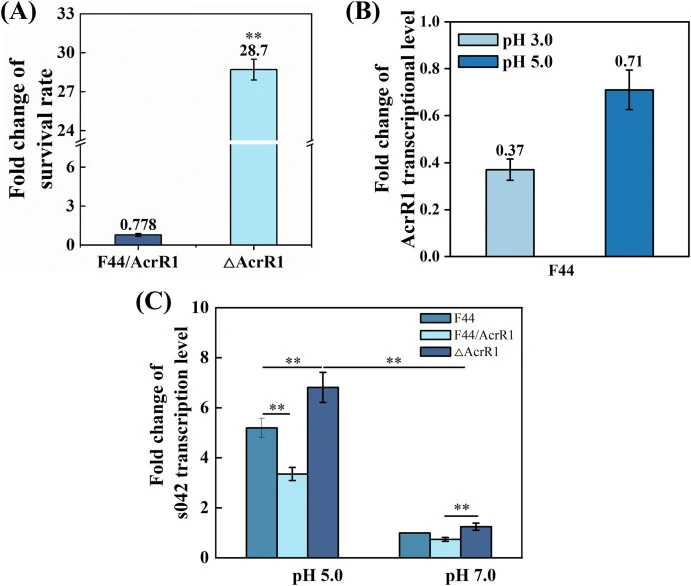
【数据】菌株:F44、F44/AcrR1、ΔAcrR1;酸胁迫条件:pH 3.0、3 h;F44/AcrR1存活率:F44的77.8%;ΔAcrR1存活率:F44的28.7倍;acrR1转录水平(pH 3.0):0.37倍;acrR1转录水平(pH 5.0):0.71倍;s042转录水平(pH 7.0,F44/AcrR1):0.74倍;s042转录水平(pH 7.0,ΔAcrR1):1.25倍;s042转录水平(酸胁迫,F44):5.21倍;s042转录水平(酸胁迫,F44/AcrR1):3.54倍;s042转录水平(酸胁迫,ΔAcrR1):6.81倍;培养时间:1 h
3.4 sRNA s042调控ArgR和AhrC的表达
为探究s042在酸耐受性中的下游调控机制,我们构建了s042敲除菌株Δs042,以及精氨酸代谢调控因子ArgR和AhrC的敲除菌株ΔArgR和ΔAhrC。在pH 3.0条件下评估各菌株的存活率。如图4A所示,Δs042、ΔArgR和ΔAhrC菌株在酸胁迫下的存活率均显著低于野生型F44,表明s042、ArgR和AhrC均对酸耐受性有正贡献。通过生物信息学预测sRNA s042与ahrC mRNA之间的相互作用(图4B),发现s042与ahrC mRNA的5′端区域存在潜在互补配对。为进一步验证s042对靶基因表达的调控作用,构建了融合目标基因ahrC的eGFP报告系统。如图4C所示,来自大肠杆菌DH5α的rrfB sRNA作为阴性对照。当s042与ahrC的eGFP报告融合时,荧光水平显著升高,表明s042在转录后水平激活ahrC表达。类似地,对ArgR也进行了相应分析,结果一致。
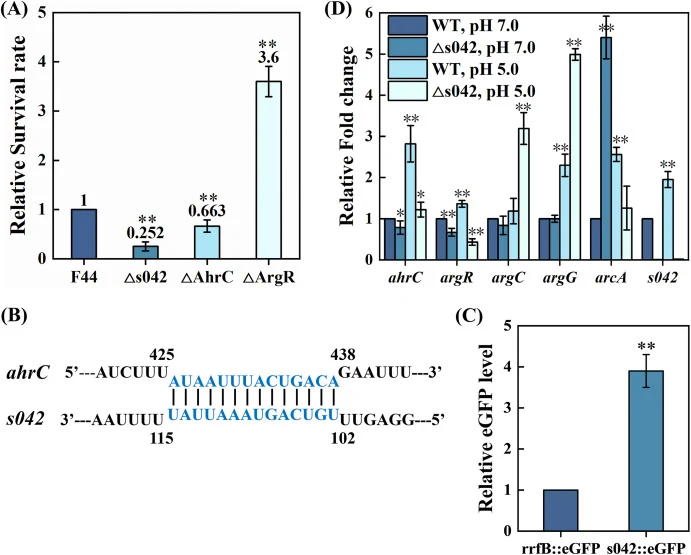
【数据】菌株:Δs042、ΔArgR、ΔAhrC、野生型F44;酸胁迫条件:pH 3.0;报告基因:eGFP;阴性对照:E. coli DH5α rrfB sRNA;靶基因:ahrC、ArgR;调控水平:转录后水平
3.5 AcrR1-s042-ArgR/AhrC级联调控乳酸乳球菌酸胁迫适应的模型
基于上述结果,我们提出了AcrR1-s042-ArgR/AhrC调控级联模型(图5)。在酸性条件下,阻遏蛋白AcrR1的转录下调。这种去阻遏使得sRNA s042的转录增加,s042在转录后水平激活精氨酸代谢调控因子ArgR和AhrC。ArgR和AhrC形成ArgR-AhrC复合物,该复合物解除对精氨酸脱亚胺酶(ADI)途径的阻遏,同时抑制精氨酸生物合成,从而增强酸耐受性。这一级联调控代表了乳酸乳球菌响应酸胁迫时动态重塑精氨酸代谢的精细多层调控回路。
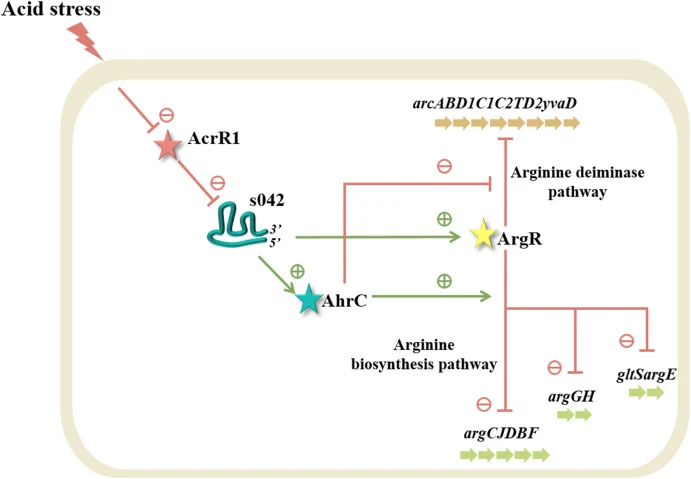
【数据】调控模型:AcrR1-s042-ArgR/AhrC;关键节点:AcrR1下调→s042上调→ArgR/AhrC激活→ArgR-AhrC复合物形成→ADI途径去阻遏+精氨酸合成抑制;调控层次:转录+转录后
讨论与解读
本研究系统解析了一条由转录因子和sRNA组成的连贯调控通路,用于乳酸乳球菌有效防御酸胁迫。转录因子AcrR1被鉴定为sRNA s042的直接阻遏蛋白,酸胁迫下AcrR1下调解除其抑制,导致s042产量增加。s042水平升高反过来在转录后增强精氨酸代谢调控因子ArgR和AhrC的表达,并促进ArgR-AhrC复合物形成。该复合物抑制精氨酸生物合成,同时解除对酸响应ADI途径的阻遏,从而提高乳酸乳球菌的酸耐受性。这一AcrR1-s042-ArgR/AhrC级联式调控代表了一种精细的多层调控回路,整合转录因子和sRNA,使乳酸乳球菌能够动态重塑其精氨酸代谢以响应酸胁迫。该回路的阐明从根本上将我们对精氨酸代谢调控的认知从静态的、基于阻遏蛋白的模型扩展为动态的、信号整合的系统,为胁迫生存而精细调控。同时,该研究为工程改造具有增强酸耐受性的工业鲁棒乳酸乳球菌菌株提供了精确的遗传靶点,有益于食品发酵过程。
编译者解读:该研究在方法上巧妙结合DNA pulldown与EMSA实现了从候选筛选到特异性验证的闭环,DNase I足迹将结合位点精确到16 bp,为后续工程改造提供了可直接编辑的靶标。其核心价值在于揭示了“转录因子→sRNA→代谢调控因子”的三层级联逻辑,将酸胁迫响应从单基因调控提升到代谢通路重塑的系统层面。局限在于目前证据链主要基于转录和结合层面,ArgR-AhrC复合物对ADI途径的直接调控尚未通过体外重构实验验证,且该级联在发酵实际工况(如连续酸化)中的动态行为仍待考察。
参考来源
期刊:Food Microbiology, 2026
DOI: 10.1016/j.fm.2026.105180
DOI: 10.1016/j.fm.2026.105180