来源:Integrative transcriptomic and functional analysis reveals fatty acyl elongases involved in sex pheromone biosynthesis in rice leaffolder, Cnaphalocrocis medinalis (Lepidoptera: Pyraloidea)(Insect Biochemistry and Molecular Biology)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
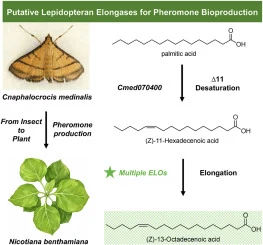
延长酶(elongase)是鳞翅目昆虫性信息素合成途径中的关键酶,与去饱和酶共同决定信息素前体的碳骨架结构。然而,迄今尚无鳞翅目昆虫的脂肪酰基延长酶获得功能验证。本研究以水稻显纹纵卷叶螟(Cnaphalocrocis medinalis)为对象,通过转录组测序鉴定候选基因,并利用本氏烟草(Nicotiana benthamiana)异源表达体系进行功能表征,首次实验证实了延长酶介导的C18信息素前体合成途径,为信息素前体的可持续生物合成提供了酶学基础。
研究背景
蛾类依赖性信息素进行交配通讯,人工合成信息素已广泛应用于害虫监测、大量诱捕和交配干扰等综合治理策略。解析信息素生物合成的分子机制,不仅有助于理解化学通讯的本质,也为物种特异性信息素的生物技术生产奠定基础。已鉴定的蛾类性信息素中约75%属于Type I化合物,由棕榈酸和硬脂酸经脂肪酰基去饱和、链缩短或链延长、还原及末端功能化等连续步骤衍生而来。目前,脂肪酰基去饱和酶(FAD)、脂肪酰基还原酶(FAR)以及一个参与链缩短的酰基辅酶A氧化酶(ACO)已获得功能表征,但催化碳链延长的脂肪酰基延长酶(ELO)在鳞翅目中尚无功能验证的报道。水稻显纹纵卷叶螟使用C18单不饱和醛和醇的混合物作为性信息素,暗示其合成途径中存在从C16前体延长的关键步骤。
研究方法
5.1 昆虫饲养与组织收集
所用水稻显纹纵卷叶螟标本最初从中国野外(22.80°N, 113.95°E)采集幼虫,带回实验室后以人工饲料在26 °C、长日照周期(16L, 8D)条件下饲养至羽化。所有实验均在上述条件下进行。蛹期进行性别鉴定,分别置于塑料纱网笼中。羽化后,雌雄成虫在相同条件下分开饲养,以10%蜂蜜溶液作为食物。蛾龄以羽化当天为第0天,此后依次为第1天、第2天等。在羽化后2-3天的暗期(暗期开始后2-5小时)从成虫中收集14种组织类型。为确保生物学重复性并减少个体差异,每个样品由约30个个体的混合样本组成,以克服生物量低的限制。具体包括雌雄两性的头部、胸部、腹部、足、翅和触角,以及雌性信息素腺(PG)和雄性毛刷(HP)。所有样品在液氮中速冻,随后用于RNA提取。
【数据】饲养温度:26 °C;光周期:16L, 8D;蜂蜜浓度:10%;取样时间:羽化后2-3天暗期(暗期开始后2-5h);样本量:约30头/样品;组织类型:14种
5.2 总RNA提取与转录组测序
使用TRIzol试剂按照制造商说明从成虫解剖的14种组织中提取总RNA。约30个个体混合用于RNA提取。使用NanoDrop分光光度计测定RNA浓度和纯度,A260/280比值在1.8至2.0之间的样品视为合格。合格RNA样品送至诺禾致源生物信息技术有限公司(中国北京),在Illumina NovaSeq X Plus平台上以双端150 bp(PE150)配置进行基于参考的转录组测序。为确保转录组的全面表征,同时采用参考基因组引导和从头组装两种策略。从头组装使用Trinity(Grabherr et al., 2011)对clean reads进行组装。参考引导组装使用HISAT2(Mortazavi et al., 2008)将clean reads比对到水稻显纹纵卷叶螟参考基因组(GenBank: GCA_014851415.1)。组织解剖和RNA测序独立进行两次以产生生物学重复。
【数据】RNA提取试剂:TRIzol;A260/280合格范围:1.8-2.0;测序平台:Illumina NovaSeq X Plus;读长:PE150;参考基因组:GCA_014851415.1;组装软件:Trinity、HISAT2;生物学重复:2次
5.3 qRT-PCR验证转录组组织表达谱
进行定量实时PCR(qRT-PCR)以验证所选基因的表达水平。首先使用逆转录试剂盒(HiScript Ⅲ RT SuperMix for qPCR (+gDNA wiper), Vazyme, 中国)从500 ng总RNA合成第一链cDNA,按照制造商说明操作。qRT-PCR反应在20 μL反应体系中进行,包含10 μL AceQ Universal SYBR qPCR Master Mix(Vazyme, 中国)、0.5 μL各引物(10 μM)、9 μL cDNA模板。扩增条件如下:95 °C初始变性5 min,随后40个循环的95 °C 10 s和60 °C 30 s,最后进行熔解曲线分析以确认特异性。由于从野外收集足够特定组织极为困难,每种组织仅获得一个混合样品(n = 1)。每个样品由约30个个体的混合样本组成以最小化个体变异,并进行技术三重重复。相对基因表达水平使用2^(-ΔΔCt)方法计算,以PGK作为内参基因(Zhao et al., 2022)。
【数据】总RNA用量:500 ng;反应体系:20 μL;SYBR Master Mix:10 μL;引物浓度:10 μM;引物体积:0.5 μL/条;cDNA模板:9 μL;变性:95 °C 5 min;循环:40个(95 °C 10 s, 60 °C 30 s);内参基因:PGK;技术重复:3次
5.4 序列与系统发育分析
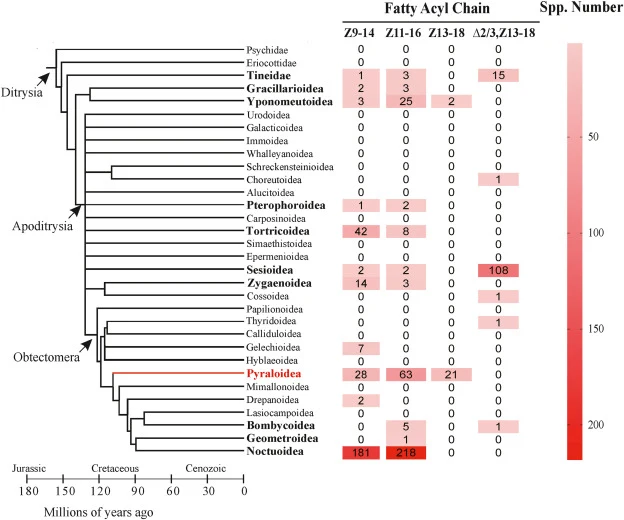
ELO候选基因的开放阅读框(ORF)从水稻显纹纵卷叶螟参考基因组(GenBank: GCA_014851415.1)获得。这些序列连同来自NCBI GenBank的功能表征同源物,使用MEGA v12.0.14(Kumar et al., 2024)中实现的MUSCLE算法进行比对。随后使用邻接法(Neighbor-Joining)构建系统发育树。最佳拟合核苷酸替换模型由软件自动选择,分支支持率通过1000次bootstrap重复评估。对于不同鳞翅目总科信息素脂肪酰基链的分析,鳞翅目系统发育树改编自Löfstedt et al. (2016)。
【数据】分析软件:MEGA v12.0.14;比对算法:MUSCLE;建树方法:Neighbor-Joining;bootstrap重复:1000次;参考基因组:GCA_014851415.1
5.5 使用cDNA末端快速扩增(RACE)进行全长cDNA克隆
最初使用cDNA作为模板通过标准PCR扩增Cmed153360基因未能成功。鉴于其序列相比其他延长酶候选基因异常长,我们怀疑参考基因组序列可能存在人为误差。因此,采用cDNA末端快速扩增(RACE)获取真实的全长cDNA。RACE使用HiScript-TS 5'/3' RACE Kit(Vazyme, 南京, 中国)进行,所得扩增子经克隆(pCE3 Blunt vector, Vazyme)和Sanger测序。将内部、5'和3' RACE片段组装以重建完整编码序列。最终序列与其他延长酶候选基因表现出高度同源性。此外,针对该组装序列设计的PCR引物成功扩增了Cmed153360,所得产物与RACE组装结果一致,从而确认了其准确性。
【数据】RACE试剂盒:HiScript-TS 5'/3' RACE Kit(Vazyme);克隆载体:pCE3 Blunt vector;测序方法:Sanger测序;验证方式:PCR扩增与RACE组装序列一致性比对
5.6 功能验证用候选基因的克隆
使用cDNA作为模板,以含有attB1和attB2位点的特异性引物对(表S4)在ETC811热循环仪(ETC, 杭州, 中国)上使用KOD One TM PCR Master Mix-Blue-(Takara, 日本)进行各候选基因的PCR扩增。循环参数如下:94 °C初始变性3 min,38个循环的98 °C 5 s、55 °C 10 s、68 °C 30 s,随后68 °C最终延伸10 min。对于若干候选基因:Cmed009890、Cmed022650、Cmed054120、Cmed077910、Cmed138850、Cmed153370,尽管使用了优化的循环条件和多组引物,仍未观察到预期大小的PCR产物。PCR产物经琼脂糖凝胶电泳并使用GeneJET Gel Extraction Kit(Thermo Scientific™)纯化。随后将ORF在BP clonase(Life Technologies)存在下克隆到pDONR221载体中以生成entry clone。每个ORF的entry clone经M13F和M13R引物测序确认正确后,通过LR反应(Invitrogen)克隆到植物表达载体pXZP393中。所得表达克隆通过测序分析。
【数据】PCR试剂:KOD One TM PCR Master Mix-Blue-;初始变性:94 °C 3 min;循环数:38;变性:98 °C 5 s;退火:55 °C 10 s;延伸:68 °C 30 s;最终延伸:68 °C 10 min;入门载体:pDONR221;表达载体:pXZP393;未能扩增的基因:Cmed009890、Cmed022650、Cmed054120、Cmed077910、Cmed138850、Cmed153370
5.7 本氏烟草材料与生长条件
用于农杆菌浸润的野生型本氏烟草(N. benthamiana)植株在温室中于16 h/8 h光照条件下生长。温室生长温度和相对湿度分别设置为昼夜24 °C/18 °C和40%。
【数据】光周期:16 h/8 h;温度:24 °C(昼)/18 °C(夜);相对湿度:40%
5.8 本氏烟草的农杆菌浸润
将病毒沉默抑制蛋白基因P19(WAK97598.1)导入GV3101菌株以抑制转基因沉默(Voinnet et al., 2003)。此外,将来自萼距花(Cuphea pulcherrima)的质体酰基-ACP硫酯酶基因CpuFatB1(AGG79283.1)转化到同一菌株中。该基因编码一种能够水解酰基链-ACP以释放游离饱和C16脂肪酸的酶(Xia et al., 2020; Kim et al., 2015),从而为下游去饱和酶和延长酶提供底物。延长酶基因IgalASE1(来自Isochrysis galbana,GenBank: AAL37626.1)也作为阳性对照转化。携带各基因构建体的农杆菌菌株在含适当抗生素的LB培养基中于30 °C过夜培养。培养物随后用100 μM乙酰丁香酮诱导2-3 h,离心收集,重悬于浸润缓冲液(5 mM MgCl2, 5 mM MES, 100 μM乙酰丁香酮, pH 5.7)中。
【数据】沉默抑制子:P19(WAK97598.1);菌株:GV3101;硫酯酶基因:CpuFatB1(AGG79283.1);阳性对照:IgalASE1(AAL37626.1);培养温度:30 °C;诱导剂:100 μM乙酰丁香酮;诱导时间:2-3 h;浸润缓冲液:5 mM MgCl2, 5 mM MES, 100 μM乙酰丁香酮, pH 5.7
研究结果
2.1 水稻显纹纵卷叶螟转录组概览
本研究收集了水稻显纹纵卷叶螟的14种组织,包括雌雄两性的头部、胸部、腹部、足、翅和触角,以及雌性信息素腺(PG)和雄性毛刷(HP)。Illumina测序共产生6.54亿条原始读长,其中超过96%在质量过滤后保留,获得约6.35亿条高质量clean reads(图S2a,表S1)。这些读长经从头组装获得86,256个unigenes和225,513个transcripts(图S2c)。测序数据质量高,平均错误率为0.01,Q20和Q30值分别为98.81%和96.63%,GC含量为47.37%(表S1)。此外,clean reads比对到参考基因组的平均比对率为75.04%(重复间一致)(图S2b)。功能注释显示,56.10%的unigenes匹配NT数据库序列,其次为NR(34.72%)和PFAM与GO(均为23.72%)(图S2d)。近半数unigenes(49.40%)与鳞翅目物种同源性最高,主要为亚洲玉米螟(Ostrinia furnacalis)(35.70%)(图S2f)。E值分布进一步证实了序列注释的可靠性(图S2e)。
【数据】原始读长:6.54亿条;质量过滤保留率:>96%;clean reads:约6.35亿条;unigenes:86,256个;transcripts:225,513个;平均错误率:0.01;Q20:98.81%;Q30:96.63%;GC含量:47.37%;平均比对率:75.04%;NT注释率:56.10%;NR注释率:34.72%;PFAM/GO注释率:23.72%;鳞翅目同源性:49.40%;亚洲玉米螟同源性:35.70%
2.2 信息素生物合成相关候选基因的鉴定
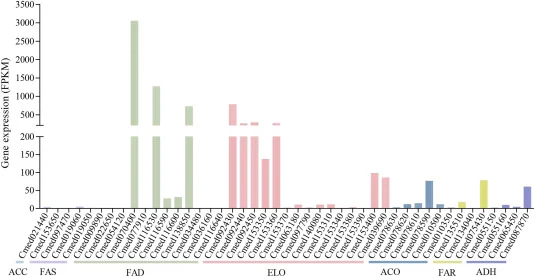
通过同源性搜索,共鉴定出45个推定参与性信息素生物合成的候选基因,包括1个乙酰辅酶A羧化酶(ACC)、4个脂肪酸合成酶(FAS)、12个FAD、6个ACO、15个ELO、3个FAR和4个醇脱氢酶(ADH)(表S2)。这些候选基因代表了参与脂肪酸前体合成、去饱和、链缩短、延长、还原和末端氧化的酶,共同覆盖了推定信息素生物合成途径的主要步骤。延长酶构成所鉴定到的最大候选酶家族(n = 15),与水稻显纹纵卷叶螟信息素生物合成中C16至C18链延伸的需求一致(表S2)。这些基因在信息素腺中的表达谱见图1和图S8,在两个独立转录组数据集中表现出高度一致的模式。若干FAD和ELO基因显示出相对较高的转录丰度,其中Cmed070400是表达量最高的FAD候选基因。为独立评估RNA-seq表达谱的可靠性,选取代表性FAD和ELO基因进行定量实时PCR(qPCR)分析。总体而言,qPCR结果与转录组数据一致(图S3),支持基于RNA-seq的表达谱用于后续候选基因筛选和功能表征的可靠性。
【数据】候选基因总数:45个;ACC:1个;FAS:4个;FAD:12个;ACO:6个;ELO:15个;FAR:3个;ADH:4个;最高表达FAD候选:Cmed070400;独立转录组数据集:2个
2.3 候选ELO及相关FAD的序列与系统发育分析
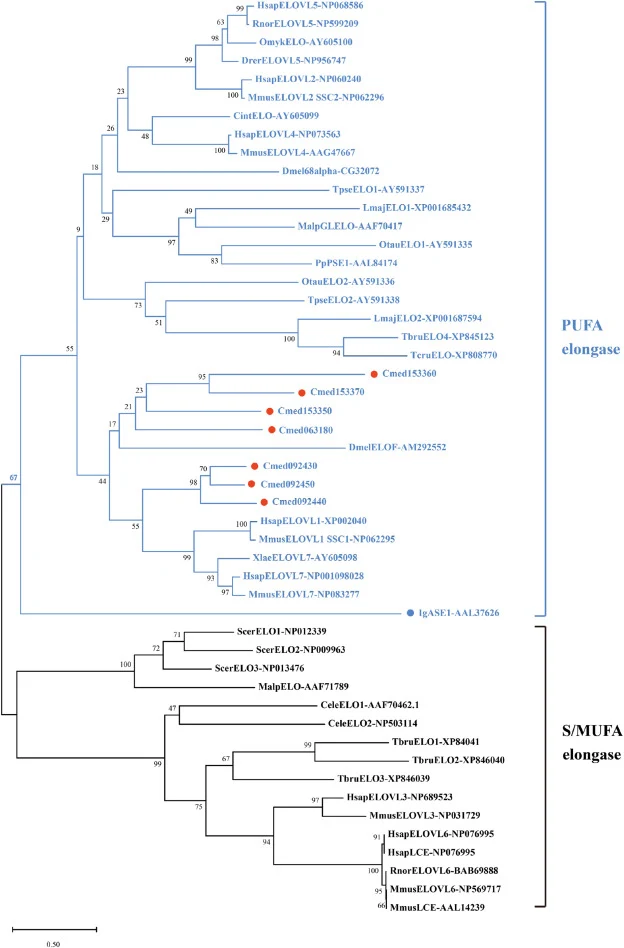
共鉴定出7个具有全长ORF的延长酶(ELO)候选基因:Cmed063180、Cmed092430、Cmed092440、Cmed092450、Cmed153350、Cmed153360和Cmed153370。这些基因分别编码270、314、311、317、307、259和306个氨基酸的蛋白质,对应ORF长度分别为810、942、933、951、921、826和918 nt。多序列比对揭示了三个保守基序(KxxExxDT、HxxHH和NxxVHxxMYxYY),这是ELO家族蛋白的典型特征,位于其中央结构域内(图S4b)。水稻显纹纵卷叶螟ELO样蛋白与已表征的延长酶如小鼠MmusELOVL1共享中等序列同一性(最高约40%)(表S3),支持其归类为延长酶样酶。使用来自不同分类群(包括昆虫、脊椎动物、酵母和藻类)的功能表征ELO蛋白进行系统发育分析,显示水稻显纹纵卷叶螟ELO候选基因聚集在多不饱和脂肪酸(PUFA)延长酶亚家族内(图2)。这种聚类提示这些酶可能参与信息素前体生物合成中不饱和脂肪酰基底物的延长。在水稻显纹纵卷叶螟转录组中鉴定的FAD中(图S4a),系统发育分析将Cmed070400置于鳞翅目Δ11去饱和酶进化支内,与先前表征的信息素生物合成FAD聚类在一起(图S5)。
【数据】全长ORF的ELO候选基因数:7个;蛋白长度:270、314、311、317、307、259、306 aa;ORF长度:810、942、933、951、921、826、918 nt;与MmusELOVL1序列同一性:最高约40%;保守基序:KxxExxDT、HxxHH、NxxVHxxMYxYY;bootstrap:1000次
2.4 Cmed070400生成信息素前体延长所需的底物
水稻显纹纵卷叶螟FAD候选基因在本氏烟草中的异源表达显示,仅表达Cmed070400的叶片产生Z11-16:acid(图S6),而表达其他FAD候选基因的叶片或野生型对照中未检测到该产物(图S6)。该结果表明Cmed070400催化棕榈酸Δ11位引入顺式双键,生成Z11-16:acid——水稻显纹纵卷叶螟性信息素生物合成中的关键前体。与这一功能角色一致,Cmed070400在信息素腺中去饱和酶基因中表达水平最高(图1)。qPCR进一步证实其表达在该组织中相比其他身体部位显著富集(图S3)。这些结果共同确认Cmed070400作为Δ11去饱和酶发挥功能,生成水稻显纹纵卷叶螟后续延长反应所需的底物。
【数据】功能基因:Cmed070400;催化反应:棕榈酸Δ11位去饱和;产物:Z11-16:acid;表达特征:信息素腺中去饱和酶基因中表达最高;qPCR验证:信息素腺显著富集
2.5 多个ELO在异源系统中表现脂肪酰基链延长活性
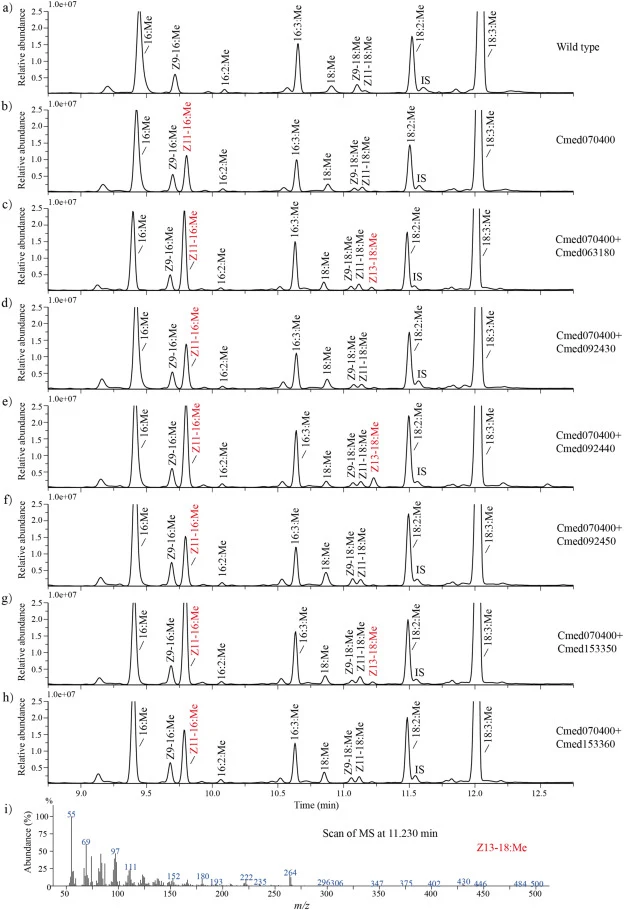
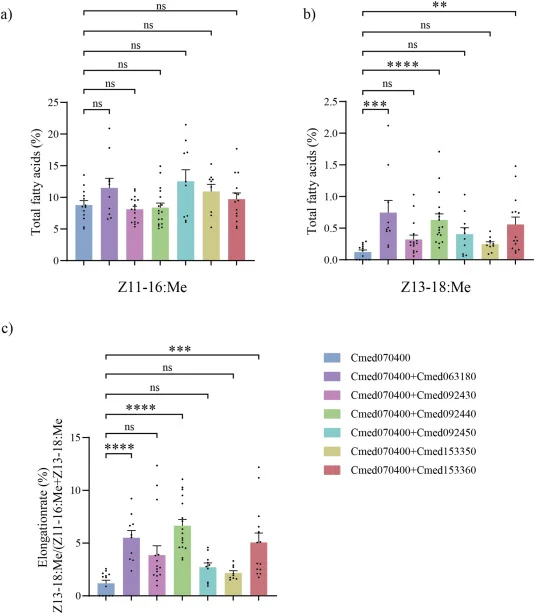
水稻显纹纵卷叶螟延长酶(ELO)候选基因在本氏烟草中的功能表征表明,多个ELO能够催化脂肪酰基链延长(图3和图4)。当单独表达时,Δ11去饱和酶Cmed070400产生高水平Z11-16:acid,以及少量Z13-18:acid(图S6c)。Cmed070400与各ELO候选基因共表达导致Z13-18:acid的差异性产生。其中,分别与Cmed063180、Cmed092440和Cmed153360共表达时,Z13-18:acid积累相比单独表达Cmed070400显著增加(图3和图4)。定量分析显示,与Cmed092440、Cmed063180和Cmed153360共表达使Z11-16:acid向Z13-18:acid的转化率提高超过5倍(图4c),表明这三种酶具有高且相当的延长效率。其他ELO候选基因显示较低或可忽略的活性。综上,这些结果表明水稻显纹纵卷叶螟中的前体延长可由多个延长酶催化,而非单一专用酶。
【数据】单独表达Cmed070400产物:高水平Z11-16:acid + 少量Z13-18:acid;高活性ELO:Cmed063180、Cmed092440、Cmed153360;转化率提升:>5倍;其他ELO活性:较低或可忽略;延长酶数量:多个
讨论与解读
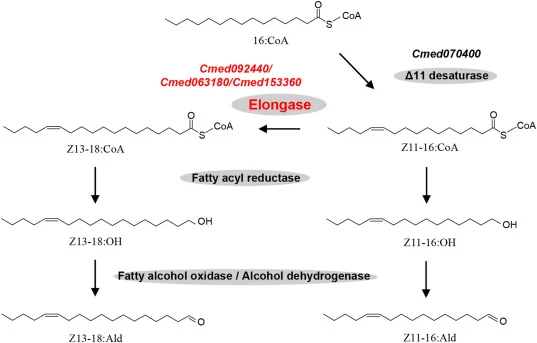
鳞翅目性信息素生物合成依赖一系列协调的酶促反应,决定信息素信号的化学结构和物种特异性。本研究建立了水稻显纹纵卷叶螟信息素前体形成的去饱和-延长途径:Δ11去饱和产生关键中间体Z11-16:acid,随后由延长酶延伸生成Z13-18:acid(图S1D),即主要信息素组分的直接前体(图6)。延长后,相应的脂肪醇(Z13-18:OH)由FAR产生。在某些蛾类中,该醇直接作为信息素释放(如苹果蠹蛾Cydia pomonella、Lampronia capitella),而在水稻显纹纵卷叶螟中,它经历最终氧化形成醛(Z13-18:Ald)。尽管有大量生化证据支持醛形成的最终氧化步骤,但负责的氧化酶在基因水平上仍未被鉴定。本研究因此解析了水稻显纹纵卷叶螟信息素生物合成的上游酶学框架,同时将末端氧化步骤凸显为未来研究的重要靶标。本研究中鉴定的4个醇脱氢酶(ADH)候选基因为鉴定负责醛形成的酶提供了潜在起点(表S2)。
编译者解读
该研究的核心贡献在于首次为鳞翅目昆虫性信息素合成中的延长酶提供了功能证据,打破了此前ELO仅停留在序列推测层面的僵局。方法上,作者巧妙利用本氏烟草共表达体系——通过共表达硫酯酶CpuFatB1释放C16底物、再叠加Δ11去饱和酶Cmed070400,构建了一个"底物供应-去饱和-延长"的最小 reconstitution 平台,使植物叶片成为信息素前体的微型工厂。这一策略的优势在于绕开了昆虫体内难以操控的酶学验证瓶颈。局限同样明显:延长酶在植物细胞中的活性能否反映昆虫信息素腺内的真实动力学尚不可知,且末端氧化酶仍缺失,意味着从C18酸到最终醛的完整路径尚未打通。对合成生物学而言,这三个高活性ELO(Cmed063180、Cmed092440、Cmed153360)加上Cmed070400,已构成一套可移植的C18信息素前体合成模块,但若要实现微生物或植物中的全途径生产,末端氧化步骤的酶学鉴定是绕不过去的下一关。
参考来源
期刊:Insect Biochemistry and Molecular Biology, 2026
DOI: 10.1016/j.ibmb.2026.104621
DOI: 10.1016/j.ibmb.2026.104621