来源:Sulfur assimilation determines S-adenosyl-l-methionine flux for enhancing methylation efficiency in heterologous biosynthesis(Trends in Biotechnology)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
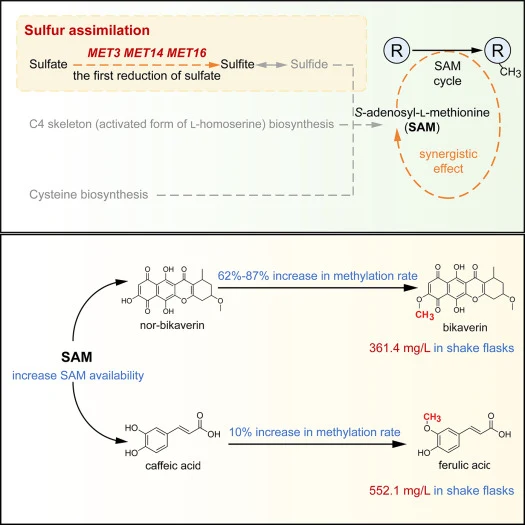
S-腺苷-L-甲硫氨酸(SAM)是细胞内最重要的甲基供体,广泛参与核酸、蛋白质和小分子代谢物的甲基化修饰。在异源生物合成甲基化天然产物时,SAM供应不足往往成为产量瓶颈。本研究以甲基化产物比卡菌素和铁酸为模型,通过比较不同酵母菌株的SAM水平和产物合成能力,结合转录组与蛋白质组分析,鉴定出硫同化途径中的MET3、MET14和MET16为关键工程靶点。过表达这三个基因可显著提升SAM通量,最终使比卡菌素产量达到361.4 ± 8.6 mg/L,铁酸产量达到552.1 ± 5.4 mg/L,技术成熟度达到TRL 4。
研究背景
SAM作为甲基供体,调控核酸、蛋白质及多种生理小分子的甲基化过程,在细胞功能调控中占据核心地位。近年来,研究发现SAM依赖性甲基化是铁酸等天然产物异源生物合成中的限速步骤,因为SAM水平受到细胞的严格调控以维持稳态。当引入涉及多步甲基化的异源合成途径(如长春碱和秋水仙碱生物合成)时,可能导致SAM耗竭,进而降低能量供应、触发细胞自噬,损害细胞的生产性能。
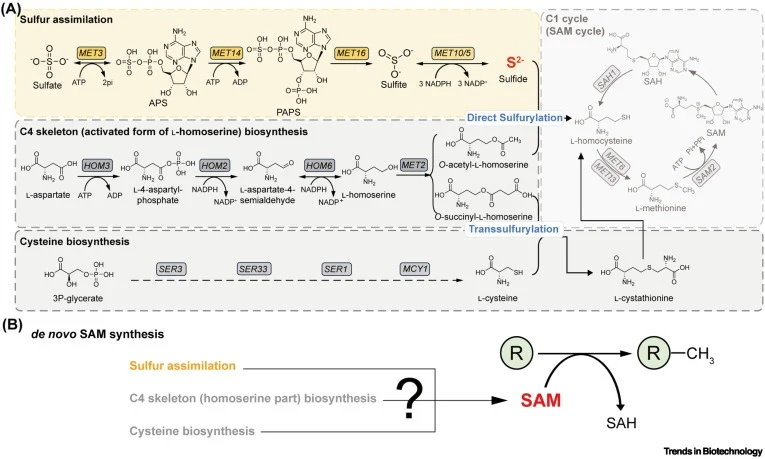
目前提升SAM可用性的策略主要聚焦于提高SAM循环效率(图1A),包括增强甲硫氨酸合酶和亚甲基四氢叶酸还原酶的表达与活性以促进同型半胱氨酸的甲基转移、上调SAM合成酶以增加甲硫氨酸的腺苷转移、以及通过上调SAH水解酶来增强SAH回收和ATP水平。然而,硫同化途径在SAM供应中的作用此前被忽视。本研究旨在系统鉴定SAM通量的关键限速步骤,并开发提升甲基化产物合成效率的工程策略。
研究方法
菌株与试剂
大肠杆菌NEB 10β菌株用于质粒扩增。酿酒酵母ATCC204508(S288C)和NCYC3610用于探索SAM供应差异,S288C同时作为所有基因操作的宿主菌株。基因操作所用引物列于在线补充信息表S11。DNA扩增使用TOYOBO®公司购买的KOD One™ PCR预混液。E.Z.N.A® DNA凝胶回收试剂盒和质粒小提试剂盒I购自Omega Bio-tek。所有化学标准品除另有说明外均购自Sigma-Aldrich。
【数据】菌株:大肠杆菌NEB 10β、酿酒酵母ATCC204508(S288C)、NCYC3610;试剂:KOD One™ PCR预混液、E.Z.N.A® DNA凝胶回收试剂盒、质粒小提试剂盒I;试剂来源:TOYOBO®、Omega Bio-tek、Sigma-Aldrich
质粒与菌株构建
外源基因经酿酒酵母密码子优化后合成,内源基因、启动子和终止子从酿酒酵母S288C基因组中扩增。所有基因表达盒(包括启动子、编码基因和终止子)通过重叠延伸PCR构建。这些表达盒两端具有35-50 bp与相邻线性载体同源的序列,通过酵母组装构建至质粒中。所构建菌株列于在线补充信息表S1。表达盒或质粒通过醋酸锂/单链载体DNA/PEG(LiAc/SS carrier DNA/PEG)法转化至酿酒酵母细胞。
【数据】同源臂长度:35-50 bp;转化方法:LiAc/SS carrier DNA/PEG法;宿主:酿酒酵母S288C
菌株培养条件
大肠杆菌菌株在Luria-Bertani培养基(LB培养基)中培养,含5 g/L酵母提取物、10 g/L胰蛋白胨、10 g/L NaCl。必要时添加20 g/L琼脂粉或100 μg/ml氨苄青霉素。大肠杆菌在37°C、220 rpm摇床中培养。酿酒酵母菌株的培养通常使用复合培养基(酵母提取物蛋白胨葡萄糖培养基,YPD培养基),含20 g/L葡萄糖、10 g/L酵母提取物、20 g/L蛋白胨。筛选含URA3标记质粒的酵母时,使用合成完全(SC)培养基,含20 g/L葡萄糖、6.7 g/L酵母氮源(YNB)、2 g/L缺省补充物、0.02 g/L组氨酸和0.1 g/L亮氨酸。比卡菌素和铁酸的发酵培养基为SC培养基,含40 g/L葡萄糖或半乳糖、6.7 g/L YNB、2 g/L缺省补充物、0.02 g/L组氨酸和0.1 g/L亮氨酸,铁酸发酵培养基中额外补充1.5 g/L咖啡酸。菌株在30°C、220 rpm摇床中、24深孔板内以2 mL培养液培养。测试生产能力时,将工程化比卡菌素生产菌株在MYPG培养基中培养,含40 g/L半乳糖、10 g/L酵母提取物、20 g/L蛋白胨。对于铁酸,将工程菌株在YPD培养基中培养,含20 g/L葡萄糖、10 g/L酵母提取物和20 g/L蛋白胨。进行生产能力测试时,比卡菌素生产菌株和铁酸生产菌株分别在30 mL和50 mL培养液的摇瓶中培养。测试生长状态时,菌株在30°C、8000 rpm摇床中、48深孔板内以1 mL培养液培养。
【数据】LB培养基:5 g/L酵母提取物、10 g/L胰蛋白胨、10 g/L NaCl;氨苄青霉素:100 μg/ml;大肠杆菌培养:37°C、220 rpm;YPD培养基:20 g/L葡萄糖、10 g/L酵母提取物、20 g/L蛋白胨;SC培养基:20 g/L葡萄糖、6.7 g/L YNB、2 g/L缺省补充物、0.02 g/L组氨酸、0.1 g/L亮氨酸;发酵培养基:40 g/L葡萄糖或半乳糖;铁酸发酵额外补充:1.5 g/L咖啡酸;酵母培养:30°C、220 rpm;MYPG培养基:40 g/L半乳糖、10 g/L酵母提取物、20 g/L蛋白胨;生产能力测试摇瓶体积:比卡菌素30 mL、铁酸50 mL;生长测试:30°C、8000 rpm、48深孔板、1 mL
代谢物提取
胞内SAM和SAH的提取方法参照文献[21]所述方法设计。具体为:取2 mL发酵液,离心保留酵母细胞,弃去上清。加入适量1.5 mol/L高氯酸,置于4°C处理2小时以实现完全提取。提取液随后通过0.2 μm水相膜过滤,用于后续分析。来自三个独立生物学重复的样品分别添加SAM标准溶液至终浓度0 mg/L、2 mg/L、8 mg/L和20 mg/L。提取和LC-MS分析后,通过比较测定浓度与理论添加量计算各加标水平的回收率。结果列于在线补充信息表S5。
比卡菌素使用四氢呋喃提取。具体为:取200 μL样品加入含100 μL石英砂的1.5 mL Eppendorf(Ep)管中。加入200~800 μL四氢呋喃后,在涡旋振荡器上涡旋20分钟。提取液以12,000 rpm离心1分钟,然后通过0.2 μm有机膜过滤,用于后续分析。
铁酸使用无水乙醇提取。具体为:取200 μL样品,加入等体积无水乙醇。混匀后静置2分钟。提取液随后通过0.2 μm有机膜过滤,用于后续分析。
胞质乙酰辅酶A、OAH和甲硫氨酸的提取参照文献[81]报道的方法。具体为:将1 mL细胞加入4 mL预冷(-80°C)甲醇中以淬灭细胞代谢,然后以6000 rpm离心2分钟收集细胞。随后向细胞沉淀中加入1 mL沸腾乙醇,继续煮沸15分钟。以6000 rpm离心2分钟后,上清液真空干燥并重悬于200 μL ddH₂O中。
【数据】SAM/SAH提取:2 mL发酵液、1.5 mol/L高氯酸、4°C、2小时、0.2 μm水相膜;SAM加标浓度:0、2、8、20 mg/L;比卡菌素提取:200 μL样品、100 μL石英砂、200~800 μL四氢呋喃、涡旋20分钟、12,000 rpm离心1分钟、0.2 μm有机膜;铁酸提取:200 μL样品、等体积无水乙醇、静置2分钟、0.2 μm有机膜;乙酰辅酶A/OAH/甲硫氨酸提取:1 mL细胞、4 mL预冷(-80°C)甲醇、6000 rpm离心2分钟、1 mL沸腾乙醇、煮沸15分钟、6000 rpm离心2分钟、200 μL ddH₂O重悬
分析方法
胞内SAM和SAH在UPLC-Q-Exactive(Thermo Fisher™)上定量,配备ACQUITY UPLC® HSS T3柱(100 mm×2.1 mm,1.8 μm)。取2 μL样品在梯度流动相中分析,流动相为两种溶剂:0.3%甲酸水溶液(A)和乙腈(B),流速0.3 mL/min。SAM定量的UPLC-MS分析参数列于在线补充信息表S6。
比卡菌素和铁酸通过超高效液相色谱(UPLC)在Thermo Scientific™ Vanquish™系统上定量,配备ACQUITY UPLC® BEH C18柱(100 mm×2.1 mm,1.7 μm)。取2 μL比卡菌素样品在梯度流动相中分析,流动相为两种溶剂:0.1%甲酸水溶液(A)和乙腈(B),流速0.3 mL/min,参数列于在线补充信息表S2。取1 μL铁酸样品在梯度流动相中分析,流动相为两种溶剂:0.1%甲酸水溶液(A)和甲醇(B),流速0.3 mL/min,参数列于在线补充信息表S7。
胞内甲硫氨酸池和OAH池在UPLC-Q-Exactive(Thermo Fisher™)上定量,配备ACQUITY UPLC® BEH C18柱(100 mm×2.1 mm,1.7 μm)。取2 μL样品在梯度流动相中分析,流动相为两种溶剂:含10 mM甲酸铵的水溶液(A)和乙腈(B),流速0.2 mL/min。甲硫氨酸和OAH定量的UPLC-MS分析参数列于在线补充信息表S4。
糖含量通过高效液相色谱(HPLC)在Thermo Scientific™ Vanquish™系统上定量,配备Shodex Asahipak NH2P-50 4E柱(250 mm×4.6 mm,5 μm)。取2 μL样品在梯度流动相中分析,流动相为两种溶剂:乙腈(A)和水(B),流速1 mL/min,参数列于在线补充信息表S8。
硫酸盐含量按照先前报道的方法[82]定量。乙酰辅酶A的定量使用乙酰辅酶A酶联免疫检测试剂盒(泽叶生物)进行。酿酒酵母菌株的生长状态使用高通量微生物生长曲线分析系统(MicroScreen,杰灵仪器)检测。
【数据】SAM/SAH分析:UPLC-Q-Exactive、HSS T3柱(100 mm×2.1 mm,1.8 μm)、2 μL、0.3%甲酸水溶液/乙腈、0.3 mL/min;比卡菌素分析:BEH C18柱(100 mm×2.1 mm,1.7 μm)、2 μL、0.1%甲酸水溶液/乙腈、0.3 mL/min;铁酸分析:BEH C18柱、1 μL、0.1%甲酸水溶液/甲醇、0.3 mL/min;甲硫氨酸/OAH分析:BEH C18柱、2 μL、10 mM甲酸铵/乙腈、0.2 mL/min;糖分析:NH2P-50 4E柱(250 mm×4.6 mm,5 μm)、2 μL、乙腈/水、1 mL/min;乙酰辅酶A定量:酶联免疫检测试剂盒(泽叶生物);生长检测:MicroScreen(杰灵仪器)
代谢通量分析
酿酒酵母基因组规模代谢模型Yeast8[67]通过添加异源途径(列于补充表S9)扩展,生成比卡菌素生产菌株(YJ-04、ZXC400、ZXC401、ZXC402)的模型。使用COBRA[83]工具箱进行通量平衡分析(FBA)计算通量分布。
【数据】模型:Yeast8;工具:COBRA工具箱;方法:通量平衡分析(FBA);菌株:YJ-04、ZXC400、ZXC401、ZXC402
转录组分析
细胞在发酵36小时时通过5,000×g离心1分钟收集,立即在液氮中冷冻。冷冻样品……(原文此处截断)
【数据】采样时间:发酵36小时;离心条件:5,000×g、1分钟;保存方式:液氮速冻
研究结果
SAM含量与甲基化速率相关
为探究硫同化、C4骨架生物合成和半胱氨酸生物合成中SAM通量的限制因素(图1B),我们以甲基化产物比卡菌素作为研究模型。我们将涉及nor-bikaverin经O-甲基转移酶(OMT)Bik3p甲基化[54]的生物合成途径(图2A)引入不同的野生型菌株,即ATCC 204508、NCYC 3630和NCYC 3610(在线补充信息图S1和表S1)。有趣的是,我们发现所得菌株(YJ-04、YJ-05和YJ-06)的比卡菌素产量存在差异,YJ-06的比卡菌素生产率比YJ-04高1.0倍(图2B;在线补充信息表S2)。此外,我们发现这三个菌株中前体nor-bikaverin的积累速率远高于比卡菌素(在线补充信息图S2B-D),这表明nor-bikaverin经SAM依赖性甲基化转化为比卡菌素是限速步骤,而nor-bikaverin的供应不是限制因素。由于YJ-06和YJ-04在三个测试菌株中分别表现出最高和最低的比卡菌素生产率,SAM定量显示YJ-06的残余SAM水平比YJ-04高5.23倍(图2C;在线补充信息表S3),这与比卡菌素生产率呈正相关。此外,OMT Bik3p在YJ-06和YJ-04中的表达水平相似(图2D)。这些发现表明,SAM供应而非甲基转移酶表达决定了nor-bikaverin生产比卡菌素过程中的甲基化效率。
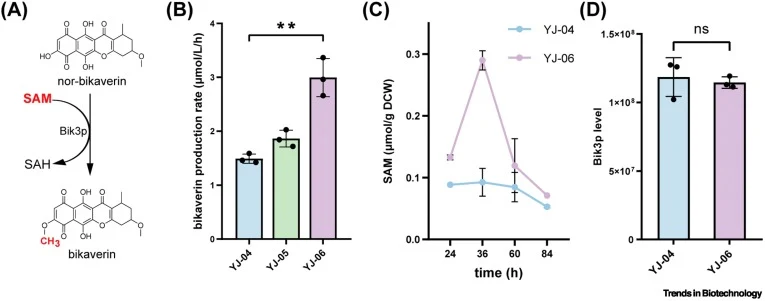
【数据】菌株:YJ-04、YJ-05、YJ-06;比卡菌素生产率差异:YJ-06比YJ-04高1.0倍;SAM水平差异:YJ-06比YJ-04高5.23倍;野生型菌株:ATCC 204508、NCYC 3630、NCYC 3610
硫同化显著影响SAM可用性
为鉴定SAM限制因素,我们首先对具有不同SAM水平的菌株YJ-04和YJ-06进行了比较分析。YJ-04和YJ-06在胞内SAM水平峰值期间取样(发酵36小时,图2C)。基于Illumina的转录组学和基于数据非依赖性采集的蛋白质组学分析揭示,YJ-06相对于YJ-04有563个上调基因和115个上调蛋白。上调基因/蛋白的KEGG富集突出了SAM相关途径:硫代谢(负责SAM从头合成)、半胱氨酸和甲硫氨酸代谢(负责SAM合成和回收)以及谷胱甘肽代谢(SAM的下游代谢)(图3A,B)。这些富集途径中的基因,如编码甲硫氨酸合酶(MET6)和腺苷甲硫氨酸合成酶(SAM2)的基因,被证实与高SAM可用性相关[21,38,55]。这些发现进一步验证了我们通过比较分析菌株YJ-06和YJ-04来研究SAM可用性限制因素的研究策略的可行性。
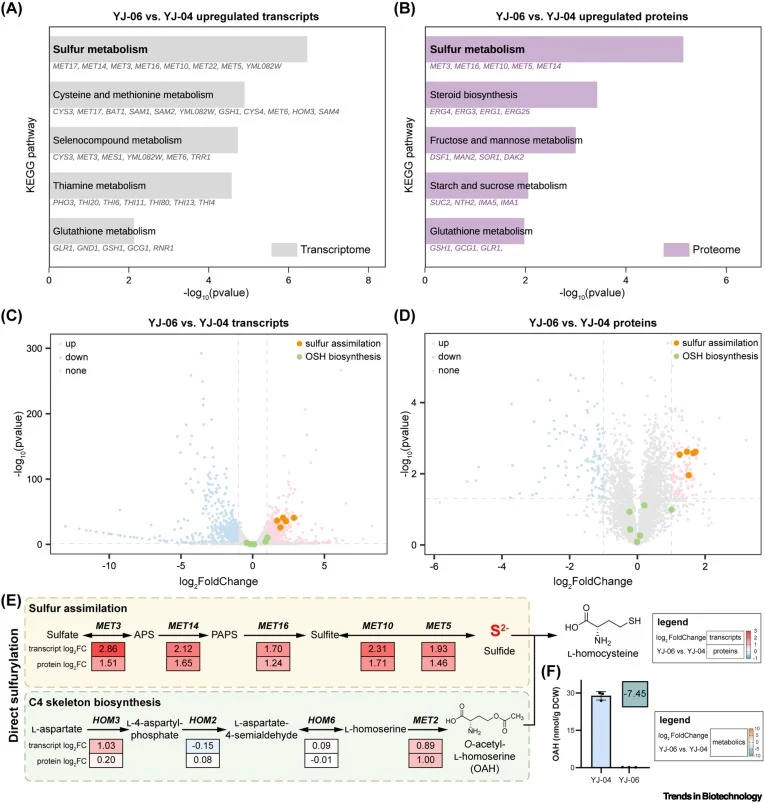
硫同化在转录和蛋白质组水平上均是最显著富集的途径,-log10(p值)分别为6.48和5.15(图3A,B)。基于这些数据,我们提出上调该途径可显著增加SAM可用性。42个共上调基因/蛋白的交叉分析进一步证实,硫同化是全细胞系统中SAM可用性的决定性限速步骤(在线补充信息图S3A,B)。我们随后分析了SAM生物合成的直接硫酰化,其中硫化物(来自硫同化)与O-乙酰-L-高丝氨酸(OAH,来自L-天冬氨酸)结合形成L-同型半胱氨酸,即SAM的前体(图1A)。值得注意的是,参与硫同化的基因和蛋白质均显著上调(图3C,D)。对参与直接硫酰化的基因进行定量,发现硫同化基因的转录上调倍数为2.25至6.26倍,蛋白质组上调倍数为1.36至2.27倍(图3E)。这些结果表明硫同化是SAM可用性的限速步骤。相反,胞内OAH的定量显示其在YJ-04中相对于YJ-06显著积累(图3F;在线补充信息表S4)。同样,YJ-04的胞质乙酰辅酶A(OAH的前体)也表现出高于YJ-06的水平(在线补充信息图S4)。这些结果表明OAH水平不是SAM可用性的限速步骤。此外,四分之三的C4骨架生物合成基因/蛋白在YJ-06与YJ-04相比无显著变化(图3C,D);仅HOM3表现出1.04倍的转录上调,MET2表现出1.01倍的蛋白质组上调(图3E)。这些结果表明C4骨架生物合成不是SAM可用性的限速步骤。此外,下调的基因/蛋白富集于TCA(三羧酸)循环(在线补充信息图S3C,D和S5),进一步表明草酰乙酸衍生的C4骨架生物合成减少(在线补充信息图S6)并未限制SAM可用性。此外,在缺乏SAM消耗途径的菌株中,YJ-09的SAM含量比YJ-08高27.9倍(在线补充信息图S7A)。值得注意的是,参与C4骨架生物合成的上调和下调基因与蛋白的不均匀分布,以及O-琥珀酰-L-高丝氨酸(OSH)含量的降低(在线补充信息图S8),也表明C4骨架生物合成在所有条件下均不约束SAM可用性。
【数据】采样时间:发酵36小时;上调基因数:563个;上调蛋白数:115个;硫同化富集显著性:-log10(p)=6.48(转录组)、5.15(蛋白质组);共上调基因/蛋白:42个;硫同化基因转录上调倍数:2.25-6.26倍;蛋白质组上调倍数:1.36-2.27倍;HOM3转录上调:1.04倍;MET2蛋白质组上调:1.01倍;YJ-09与YJ-08 SAM含量差异:27.9倍
转硫途径对SAM可用性影响甚微
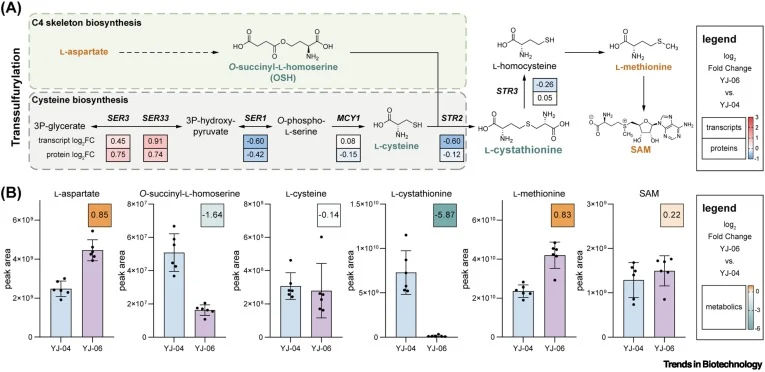
除直接硫酰化外,L-天冬氨酸衍生的OSH通过转硫途径与L-半胱氨酸结合产生L-同型半胱氨酸(图1A)。在转硫过程中,OSH与半胱氨酸经两步反应,先形成中间体L-胱硫醚,再合成L-同型半胱氨酸[51,56](图4A)。为研究转硫途径对SAM可用性的影响,我们随后通过转录组和蛋白质组分析分析了半胱氨酸生物合成途径。值得注意的是,虽然YJ-06中SER3和SER33的转录和蛋白丰度高于YJ-04,但SER1和MCY1编码的酶蛋白水平分别下调了25%和10%(图4A)。这些差异可能源于3-磷酸甘油的代谢通量未导向L-半胱氨酸生物合成。因此,我们的分析表明L-半胱氨酸生物合成在该系统中对SAM依赖性甲基化贡献甚微。我们进一步评估了整个转硫途径。YJ-06中负责L-胱硫醚(转硫途径的关键中间体)产生和消耗的基因(STR2和STR3)的转录或蛋白水平无显著变化(图4A)。基于这一发现以及我们之前关于C4骨架生物合成不限制SAM可用性的结论,我们假设整个转硫途径对SAM可用性影响可忽略。为验证这一假设,我们分析了代谢组学数据,发现YJ-06中SAM水平较YJ-04升高,其直接前体L-甲硫氨酸(78%)和OSH前体L-天冬氨酸(80%)也升高。然而,YJ-06中L-半胱氨酸和OSH水平较YJ-04分别下降9%和68%。关键的是,转硫途径中间体L-胱硫醚在YJ-06中较YJ-04急剧下降98%(图4B)。这些代谢组学数据强化了我们的结论:转硫途径对SAM可用性影响甚微。
【数据】SER1蛋白下调:25%;MCY1蛋白下调:10%;L-甲硫氨酸升高:78%;L-天冬氨酸升高:80%;L-半胱氨酸下降:9%;OSH下降:68%;L-胱硫醚下降:98%(均为YJ-06 vs YJ-04)
硫同化关键基因的鉴定
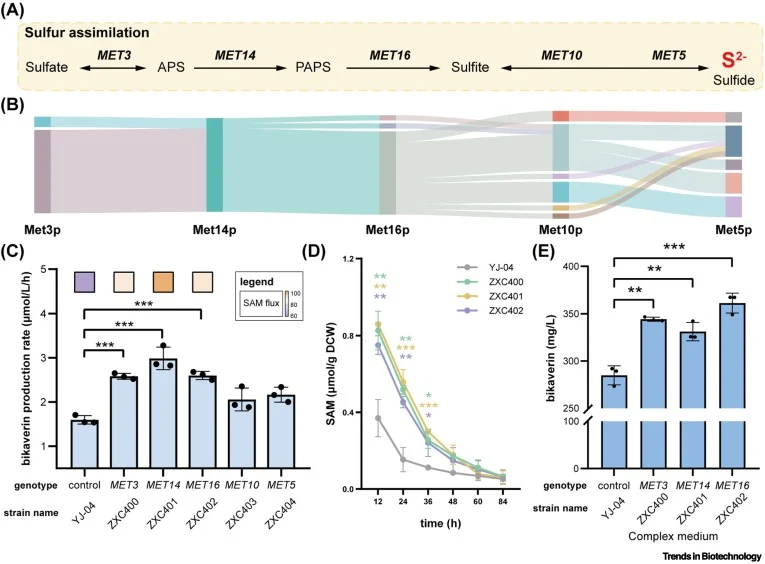
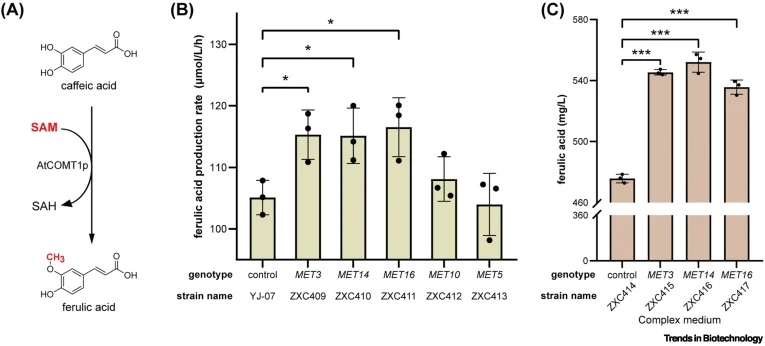
基于上述结果,我们进一步聚焦于硫同化途径中的关键基因。硫同化途径示意图如图5A所示。通过蛋白质序列关联分析的Sankey图分析(图5B),我们鉴定了参与硫同化的关键基因。随后,我们评估了硫同化途径中基因过表达对铁酸生产率的影响。咖啡酸通过AtCOMT1p的一步SAM依赖性甲基化转化为铁酸(图6A)。硫同化途径中基因过表达对铁酸生产率的影响如图6B所示。结果表明,MET3、MET14和MET16的过表达对铁酸生产率的提升最为显著(图6B,C)。
【数据】关键基因:MET3、MET14、MET16;模型产物:铁酸;甲基化酶:AtCOMT1p;底物:咖啡酸
工程菌株的产量验证
为验证硫同化关键基因过表达对甲基化产物生产的普适性,我们在比卡菌素和铁酸两种甲基化产物中进行了验证。在比卡菌素生产菌株中,过表达MET3、MET14和MET16后,比卡菌素产量达到361.4 ± 8.6 mg/L。在铁酸生产菌株中,过表达相同基因后,铁酸产量达到552.1 ± 5.4 mg/L。这些结果证明,硫同化途径的工程化改造可有效提升SAM通量,进而增强甲基化效率,且该策略在两种不同的甲基化产物中均得到验证,展示了技术的普适性。
【数据】比卡菌素产量:361.4 ± 8.6 mg/L;铁酸产量:552.1 ± 5.4 mg/L;工程靶点:MET3、MET14、MET16
讨论与解读
理解SAM通量的关键限速步骤有助于认识众多SAM介导的甲基化过程。SAM可用性增加所带来的甲基化效率提升,也可改善许多具有SAM依赖性甲基化的生物活性分子的合成效率[71]。此前研究主要关注C1循环和C4骨架生物合成[21,72],而硫同化在这些过程中的作用被忽视。本研究将SAM消耗模块比卡菌素引入不同酵母菌株,报道了高SAM含量与高比卡菌素生产率相关。我们证明硫同化在SAM耗竭期间对增加SAM可用性至关重要,并开发了提高酵母中甲基化产物产量的工程策略。
在正常生理条件下,SAM通过SAM循环维持稳态。相反,引入比卡菌素生物合成模块触发了SAM耗竭,促进硫同化途径的激活和SAM从头合成的启动,以补偿SAM消耗。硫同化基因表达的增加表明,MET3、MET14和MET16比MET10和MET5更有效地提高甲基化速率。MET3、MET14和MET16编码的三个高度相似的蛋白驱动硫酸盐还原的第一步。
编译者解读
该研究从代谢工程角度切入了异源生物合成中一个常被忽视的瓶颈——硫同化途径对SAM供应的限制。相比传统的SAM循环强化策略,靶向MET3/MET14/MET16三个还原步骤基因具有明确的通量控制优势。在两种甲基化产物中验证的普适性增强了该策略的可推广性。但需注意,验证仅在摇瓶水平完成,高细胞密度下硫同化与SAM循环的互作关系尚不明确,工业规模放大时硫源供应和硫代谢副产物积累可能成为新的限制因素。此外,该策略是否适用于多步甲基化途径(如长春碱)仍需验证。
参考来源
期刊:Trends in Biotechnology, 2026
DOI: 10.1016/j.tibtech.2026.03.003
DOI: 10.1016/j.tibtech.2026.03.003