来源:Targeted genomic editing of human gut Bacteroides species based on CRISPR-associated transposases(Cell Systems)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
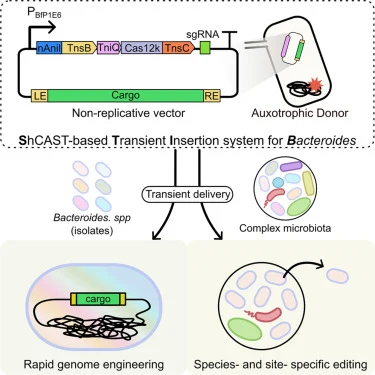
人肠道拟杆菌属是肠道微生物组中的优势菌群,对宿主免疫调节、代谢和多糖消化至关重要。然而,大多数拟杆菌是非模式微生物,遗传操作困难。本研究开发了STIB——一种基于ShCAST的瞬时插入系统,通过将切口归巢内切酶融合至转座酶、将ATP酶融合至Cas12k,实现了不依赖同源重组的高效定点插入,靶向插入率超过97%,并成功在复杂合成肠道菌群中实现了物种和位点特异性编辑。
研究背景
拟杆菌属是人肠道微生物组中的优势成员,在宿主免疫和代谢调节、多糖消化以及微生物间互作中发挥关键作用。此前研究揭示了其广泛的基因组可塑性和稳定的定殖能力,使其成为研究微生物-宿主互作和工程化活体治疗药物的理想模型。近年来,研究者通过将遗传修饰的分离株重新引入微生物组来阐明拟杆菌介导的微生物互作分子机制。自拟杆菌合成生物学的开创性工作以来,越来越多的遗传工具被开发用于拟杆菌物种,包括转座酶、整合酶、基于反向选择的等位基因交换和CRISPR-Cas系统等。然而,转座酶效率高但缺乏特异性;整合酶能承载大片段但插入位点有限且缺乏可编程性;基于反向选择的等位基因交换需要特定的突变基因组背景或多步诱导自杀基因表达。此前开发的CRISPR-Cas系统虽可在多种拟杆菌中实现可编程编辑,但依赖DNA双链断裂。
研究方法
菌株与培养条件
大肠杆菌S17-1 λpir用于质粒构建和纯培养中的接合转移。针对复杂微生物群落的编辑,使用突变型大肠杆菌供体菌株S17DMK。S17DMK的接合效率以大肠杆菌WM3064为基准进行评价。STIB介导基因组编辑的受体菌株包括:B. thetaiotaomicron VPI-5482、B. ovatus ATCC 8483、B. salyersiae DA1247、B. vulgatus ATCC 8482、B. fragilis NCTC 9343和BSC606,以及B. uniformis ATCC 8492。使用包含40株人肠道细菌菌株的合成群落(synCom)模拟复杂肠道微生物群。所有菌株在37°C厌氧条件下培养。大肠杆菌S17-1 λpir在LB培养基中培养。WM3064在含60 μg/mL二氨基庚二酸(DAP)的LB培养基中培养。突变型大肠杆菌S17DMK在含60 μg/mL DAP和50 μg/mL卡那霉素的LB培养基中培养。拟杆菌野生型菌株(B. thetaiotaomicron、B. ovatus、B. fragilis、B. salyersiae和B. vulgatus)在脑心浸液培养基(BHI,Oxoid Cat#CM1135)中培养,添加维生素K3(终浓度0.5 mg/L)和氯化血红素(终浓度5 mg/L),称为BHIS。细菌在厌氧工作站(Coy;85% N₂、10% H₂和5% CO₂)中培养。用于序贯编辑的突变型B. thetaiotaomicron在含氯霉素和/或红霉素的BHIS中培养。此外,突变型Bt-IMGC在特殊需要时于含0.5%(w/v)菊粉(Orafti® HP,约94.5%,平均DP≥23)的M9S(拟杆菌基础培养基)中培养。
【数据】菌株:B. thetaiotaomicron VPI-5482、B. ovatus ATCC 8483、B. vulgatus ATCC 8482、B. salyersiae DA1247、B. uniformis ATCC 8492、B. fragilis NCTC 9343和BSC606;培养基:BHIS(BHI+0.5 mg/L维生素K3+5 mg/L氯化血红素)、LB、M9S;温度:37°C;DAP浓度:60 μg/mL;卡那霉素浓度:50 μg/mL;菊粉浓度:0.5%(w/v);气相:85% N₂、10% H₂、5% CO₂
质粒设计与构建
本研究所用全部质粒和引物分别列于表S6和表S7。
ShCAST操纵子设计与合成
为最小化系统尺寸并便于递送,shCAST系统被重新设计为紧凑的多顺反子操纵子,由单一启动子-终止子对驱动所有组分的协调表达。四种效应蛋白(TnsB、TnsC、TniQ和Cas12k)的编码序列分别使用OPTIMIZER平台(genomes.urv.es)以“高表达基因”数据集为参考,针对B. thetaiotaomicron VPI-5482进行密码子优化。为实现CRISPR-转座子复合物的适当化学计量比,按顺序分配了强度递增的核糖体结合位点(RBS):RBS8(tnsB)、RBSB2(tnsC)、RBSB5(tniQ)和RBSB6(cas12k),其中较强的RBS驱动对靶向最关键的效应蛋白。sgRNA表达盒置于蛋白编码操纵子下游,紧邻非货物转座子臂,以防止质粒繁殖过程中的载体不稳定。整个重新设计的操纵子由化学合成(华大基因),nAniI购自北京擎科生物。
【数据】RBS分配:RBS8(tnsB)、RBSB2(tnsC)、RBSB5(tniQ)、RBSB6(cas12k);密码子优化平台:OPTIMIZER;参考数据集:高表达基因;合成供应商:华大基因;nAniI供应商:北京擎科生物
穿梭载体构建
将合成的shCAST操纵子克隆至psh2200,该载体为大肠杆菌-拟杆菌穿梭载体,携带大肠杆菌P15A复制起点、用于接合转移的转移起点(oriT)和拟杆菌p134复制子。嵌合氯霉素抗性盒由组成型J23119启动子偶联拟杆菌RBS组成,作为在大肠杆菌和拟杆菌中均具有功能的双选择标记。在psh2200中,cas12k、转座酶基因和sgRNA的转录由PBfP1E6启动子驱动。
【数据】载体:psh2200;复制起点:P15A(大肠杆菌)、p134(拟杆菌);oriT:有;启动子:J23119(氯霉素抗性)、PBfP1E6(cas12k/转座酶/sgRNA);筛选标记:氯霉素
STIB系统构建
为降低代谢负担并限制延长的CRISPR-转座子活性,开发了自杀载体策略。移除拟杆菌p134复制子,将P15A起点替换为条件性R6K gamma起点,该起点需要宿主编码的pir基因进行复制,因此接合后无法在拟杆菌中复制。货物模块设计为表达cmr(由Pcfxa驱动)或菊粉酶基因(由PBT1311驱动),用于成功编辑的代谢选择。为减少共整合事件并提高靶向特异性,将密码子优化的nAniI切口酶融合至TnsB(由RBS8驱动),构建psh3300。随后,将TnsC融合至Cas12k(由RBSB6驱动),得到最终STIB质粒psh4300-cmr-NTRNA。所有质粒使用pEASY-Basic无缝克隆与组装试剂盒(TransGen Biotech)通过Gibson组装构建。靶向不同基因组位点的sgRNA序列通过Golden Gate组装使用NEBridge Golden Gate组装试剂盒(BsaI-HFv2,New England Biolabs)导入相应骨架质粒。
【数据】自杀载体:R6K gamma起点(需pir基因);货物基因:cmr(Pcfxa驱动)、菊粉酶(PBT1311驱动);融合蛋白:nAniI-TnsB(RBS8驱动)、TnsC-Cas12k(RBSB6驱动);最终质粒:psh4300-cmr-NTRNA;组装方法:Gibson组装;sgRNA克隆:Golden Gate(BsaI-HFv2)
表达元件强度评估
(原文此处中断,后续方法未在节选中完整呈现。)
研究结果
STIB系统的构建与优化
此前在变形菌门中的研究证实,ShCAST活性依赖于高水平的效应蛋白表达。受通过调控元件调谐成功改造I-F型CAST系统的启发,我们试图在B. thetaiotaomicron中最大化ShCAST表达。首先使用荧光素酶报告系统对七种启动子-核糖体结合位点(RBS)组合进行了基准测试(表S1)。与此前报道一致,PBfP1E6-RBS8配置产生了最高的发光信号(图S1A)。为进一步优化翻译,我们测试了PBfP1E6启动子控制下的一系列RBS变体,鉴定出RBSB6、RBSB5、RBSB2和RBS8为最强候选(图S1B)。受原核生物中常见的紧凑多顺反子操纵子启发,我们对四种ShCAST效应蛋白的编码序列进行了密码子优化,并设计了多顺反子构建体。在该设计中,PBfP1E6驱动所有效应蛋白的同时表达,四个基因按强度递增顺序排列优先RBS,以确保平衡且稳健的蛋白生产(图1A)。
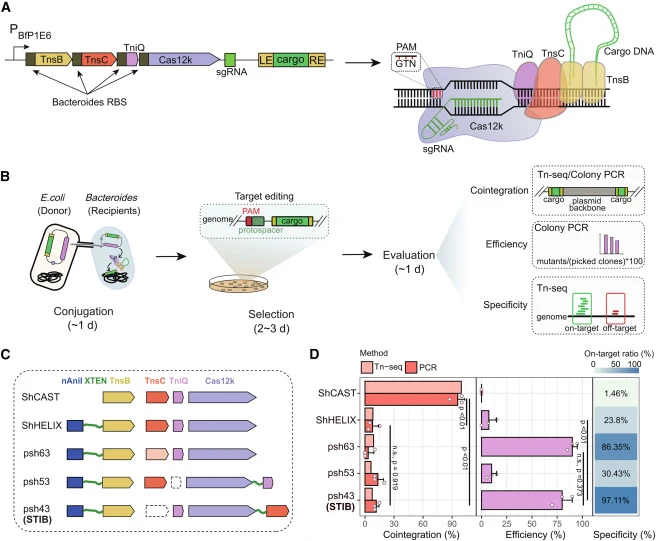
同时,我们构建了一个复制型拟杆菌载体,用于在拟杆菌细胞中维持重新设计的ShCAST系统及靶向胸苷激酶基因(tdk)的sgRNA的表达(表S2)。该载体通过接合转移导入B. thetaiotaomicron(图S1C和S1D),通过RNA引导的靶向插入破坏tdk,突变体可在含5-氟-2‘-脱氧尿苷(FUdR)的平板上生长。我们观察到成功编辑的接合子(图S1E和S1F),但FUdR平板上93个菌落中仅有一个具有tdk基因型,表明编辑效率极低(图S1G)。尽管如此,这些初步结果表明ShCAST系统可在拟杆菌中实现靶向编辑。
【数据】启动子-RBS组合测试数:7种;最高发光配置:PBfP1E6-RBS8;最强RBS候选:RBSB6、RBSB5、RBSB2、RBS8;FUdR平板阳性率:1/93;靶基因:tdk
随后,我们通过移除拟杆菌复制子并引入氯霉素抗性基因(cmr)作为货物,构建了瞬时ShCAST系统,实现了简化的4天内一步基因组编辑(图1B)。然而,我们检测到该瞬时ShCAST系统效率低(约0%,共20个菌落)(图S2A和S2B)、共整合率高(100%)(图S2A和S2C)且特异性差(1.46%)(图S2D)。这些发现表明ShCAST系统需要进一步优化以降低共整合并提高效率和特异性。
【数据】编辑时间:4天;效率:约0%(20个菌落);共整合率:100%;特异性:1.46%
此前在大肠杆菌中的研究报道,将5’切口归巢内切酶(nAniI)融合至转座酶TnsB,称为HELIX,可降低共整合并提高特异性。同时,降低AAA+ ATP酶(TnsC)表达或将CRISPR效应蛋白(Cas12k)与TnsC或靶位点相关因子(TniQ)融合可增强特异性。因此,我们初步将nAniI及其识别序列整合到瞬时载体中,构建了ShHELIX构建体(图1C)。后续评估显示共整合频率显著降低(Tn-seq:从99.5%降至8.1%;PCR:从95.8%降至7.8%;ANOVA检验:p < 0.01),特异性大幅提高(从1.3%升至22%),效率适度改善(从0%升至7.2%)(图1D)。此外,我们正如先前报道在脱靶位点观察到一个A/T富集基序(图S3A)。
【数据】共整合率(Tn-seq):99.5%→8.1%;共整合率(PCR):95.8%→7.8%;ANOVA p < 0.01;特异性:1.3%→22%;效率:0%→7.2%
受这些发现启发,我们基于ShHELIX构建体设计了两条策略以进一步提高效率和特异性。第一,根据先前报道和RBS计算器预测计算相对表达强度(以RBSB2为基线)。通过替换不同强度的RBS,这些RBS可将TnsC的表达范围降低约100至约2,800倍,生成psh63、C53和C56(图1C和S3B)。第二,我们将TnsC或TniQ融合至Cas12k,分别生成构建体psh43和psh53(图1C)。所有基于ShHELIX的系统在平行转座实验中进行了评估。后续菌落PCR和Tn-seq分析显示,所有构建体均维持低共整合率(图1D和S3C;ShHELIX vs. ShCAST:p < 0.01;psh43 vs. ShHELIX:p = 0.919,无显著差异)。此外,psh43和psh63系统的编辑效率均超过80%且无显著差异(图1D和S3D;p = 0.373)。同时,psh43显示出更高的特异性(97.1%),优于psh63(86.3%)(图1D和S4A)。
【数据】TnsC表达范围降低:约100-至约2,800倍;编辑效率:psh43和psh63均>80%;p = 0.373;特异性:psh43为97.1%,psh63为86.3%;共整合率比较:ShHELIX vs. ShCAST p < 0.01;psh43 vs. ShHELIX p = 0.919
为减轻潜在的位点偏差,我们比较了psh43、psh53和psh63在两个不同靶位点(Bt02和Bt03,表S2)的效率。结果表明psh43在新测试位点(Bt02和Bt03)表现出显著更高的效率(图S4B,双因素ANOVA:p = 0.038)。总体而言,我们的观察表明psh43系统在拟杆菌中实现了快速、特异且高效的基因组插入。这一优化的瞬时系统被命名为STIB(基于ShCAST的拟杆菌瞬时插入系统)。
【数据】比较构建体:psh43、psh53、psh63;测试位点:Bt02、Bt03;双因素ANOVA p = 0.038
STIB在B. thetaiotaomicron中的系统表征
为全面表征STIB在整个基因组中的性能,我们接下来在B. thetaiotaomicron的十个不同基因组靶位点评估了STIB,包括此前描述的三个位点,涵盖开放阅读框(ORF)和基因间区(表S2)。转座实验后,我们观察到这些位点的编辑效率范围为29%至91%(图2A)。
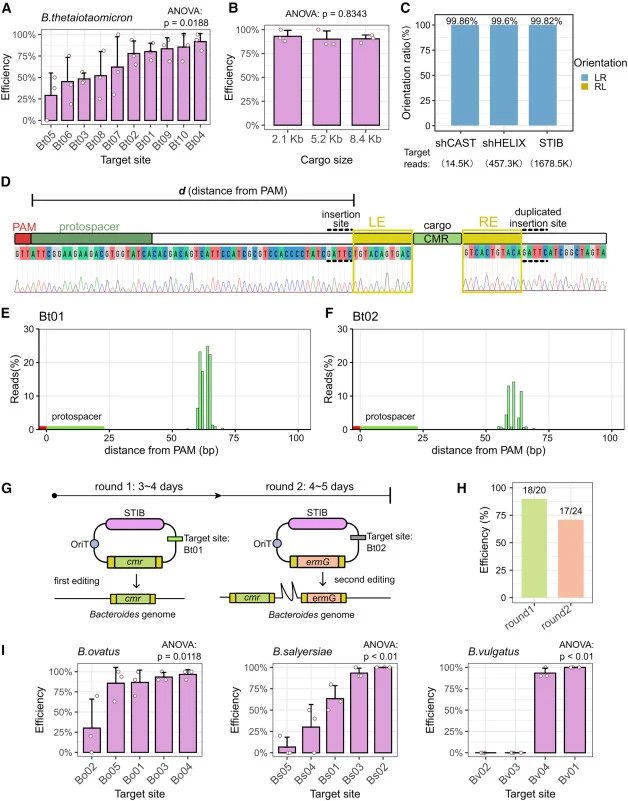
我们还评估了货物大小对编辑效率的影响,以确定STIB是否能促进大片段插入,如在大肠杆菌中报道的那样。将携带不同大小货物(2.5、5.5和8.4 kb)的STIB载体在Bt01位点导入B. thetaiotaomicron。通过微滴数字PCR对所有接合子进行效率评估。与预期一致,无论货物大小如何,均观察到高编辑效率(>85%)(图2B)。
【数据】测试位点数:10个;编辑效率范围:29%-91%;货物大小:2.5、5.5、8.4 kb;编辑效率(各货物大小):>85%;检测方法:微滴数字PCR
为进一步研究插入方向,我们比较分析了STIB、ShCAST和ShHELIX在Bt01位点产生的插入模式。Tn-seq分析显示,STIB与ShCAST一样维持强烈的单向插入偏好,T-LR(转座子左端靠近靶位点)方向超过99%(图2C)。对Bt01靶向菌落的Sanger测序显示,cmr货物插入在PAM下游61 bp处,伴随预期的5 bp靶位点重复(图2D)。为广泛检查编辑窗口,我们调查了所有Bt01接合子在预期编辑窗口(PAM位点下游100 bp)内的插入位置。98.2%的靶向插入位于PAM位点下游60至66 bp之间(图2E)。在Bt02靶位点观察到类似的插入分布模式,77.8%的靶向插入也定位在PAM下游60至66 bp之间(图2F)。总体而言,这些数据表明STIB实现了精确高效的基因组编辑并维持单向插入偏好。
【数据】T-LR方向比例:>99%;cmr插入位置:PAM下游61 bp;靶位点重复:5 bp;Bt01编辑窗口内插入比例:98.2%(60-66 bp);Bt02编辑窗口内插入比例:77.8%(60-66 bp)
利用STIB加速的位点特异性编辑工作流程——其速度超过其他拟杆菌编辑方法——我们设计了序贯基因编辑的概念验证实验(图2G)。首先,构建了靶向Bt01并携带cmr的STIB载体,导入B. thetaiotaomicron进行第一轮编辑(约3天)。同时,准备了靶向Bt02并携带红霉素抗性基因(ermG)的第二STIB载体。第一轮后,将成功编辑的菌落作为底盘,使用第二载体在Bt02进行第二轮编辑(约4天)。
【数据】第一轮编辑时间:约3天;第一轮靶点:Bt01,货物:cmr;第二轮编辑时间:约4天;第二轮靶点:Bt02,货物:ermG
靶向基因组插入实现突变株富集
(图3相关结果)
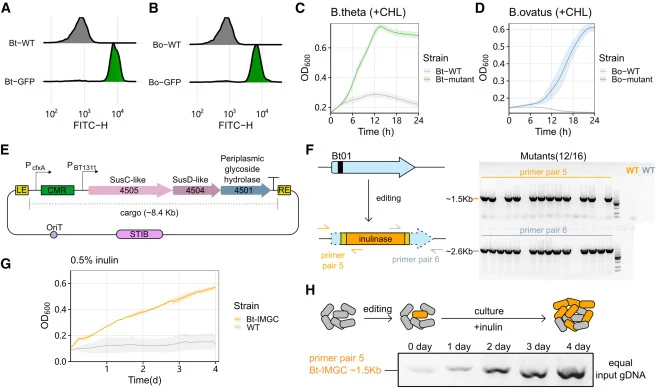
外源gfp基因在B. thetaiotaomicron中的表达强度(图3A)。gfp基因在B. ovatus中的表达强度(图3B)。野生型(Bt-WT,灰色)和Bt02突变体(Bt...)的生长曲线(图3C)。
【数据】原文未详述具体数值
复杂肠道微生物群落中拟杆菌的物种和位点特异性编辑
(图4相关结果)
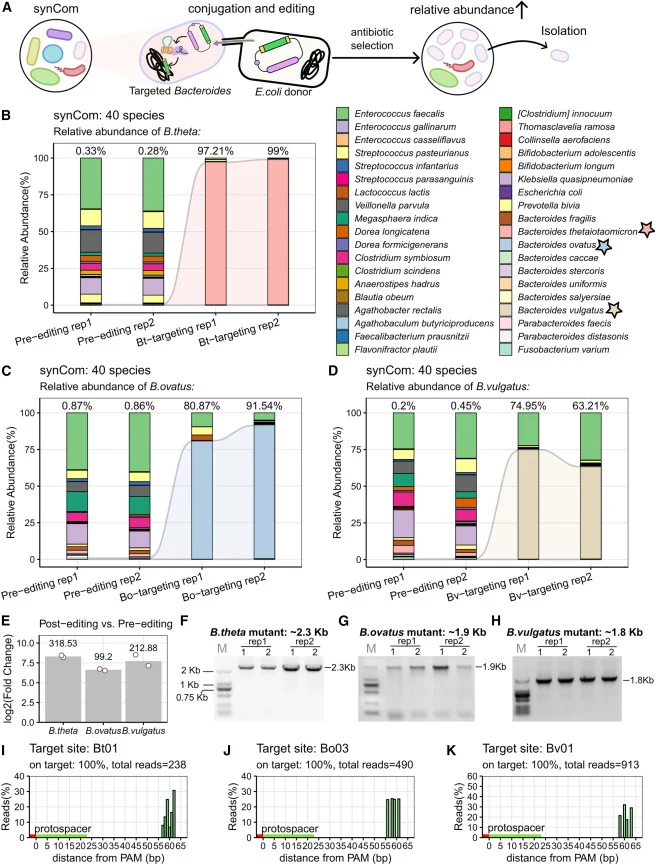
STIB在微生物群中介导靶向编辑,随后通过抗生素选择进行扩增和编辑株分离(图4A)。40种合成人肠道细菌群落中群落组成的变化(图4B-4D)。
【数据】群落组成:40种合成人肠道细菌
讨论与解读
拟杆菌是人肠道微生物组中的优势成员,对其精确操作对于理解和工程化肠道微生物组至关重要。然而,当前工具主要针对分离株开发,且通常依赖细胞同源重组能力。本研究开发了STIB——一种可编程工具,能够在多种拟杆菌物种和复杂群落中实现大片段遗传货物的位点特异性插入。STIB源自ShCAST系统,该系统以在变形菌门中高效、不依赖同源重组的基因组插入而闻名。然而,ShCAST在拟杆菌中的初始表达导致极低的特异性和效率,伴随高共整合率——性能明显劣于大肠杆菌中观察到的水平。通过引入nAniI优化STIB,将系统转变为“剪切-粘贴”机制以最小化共整合,而TnsC与Cas12k的融合显著增强了靶向特异性和效率(图1;ANOVA检验:p < 0.01)。在多种拟杆菌的多个靶位点以及不同货物大小(2.5、5.5和8.4 kb)的比较分析证实了STIB consistently高效率(图2A、2B、2I和S6)。与先前的拟杆菌遗传工具相比,STIB操作简便,可在任意所需位点以高特异性实现大DNA片段的基因组插入(表S5)。酪氨酸整合酶也能实现基因组插入;然而,其插入……
编译者解读
STIB的核心突破在于将CRISPR关联转座酶从变形菌门拓展至拟杆菌门,并通过nAniI-TnsB融合和TnsC-Cas12k融合双策略巧妙解决了异源宿主中共整合率高和特异性低的瓶颈。该系统不依赖同源重组、可承载8.4 kb大片段、4天内完成编辑,且能在40种菌的合成群落中实现物种特异性靶向,为肠道微生物组的功能研究和活体治疗工程化提供了迄今最实用的编辑工具之一。局限在于编辑窗口较窄(主要集中于PAM下游60-66 bp),且对非模式拟杆菌的递送效率仍需进一步验证。
参考来源
期刊:Cell Systems, 2026
DOI: 10.1016/j.cels.2026.101650
DOI: 10.1016/j.cels.2026.101650