来源:Integrated bioprocess engineering of Spirulina platensis for crude-oil phycoremediation and enhanced PHB biosynthesis under optimized trophic regimes(Biomass and Bioenergy)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
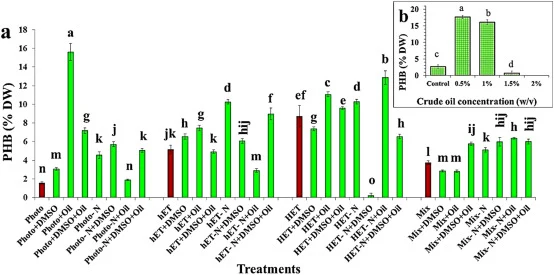
原油污染与可持续材料需求正形成交汇的全球性挑战。本研究以螺旋藻(Spirulina platensis)为底盘,在1%(w/v)原油富集培养基中系统优化了光自养、异养(含/不含葡萄糖)和混养七种营养模式,并引入DMSO作为膜通透性增强剂。原油暴露在光自养和异养条件下刺激了生物量产出;氮限制虽降低总细胞量,却将碳流导向储存代谢,使PHB积累提升最高达10倍,脂质和碳水化合物产量在光自养和混养氮缺陷处理下提高约100%。GC-MS显示多数条件下短链脂肪烃(C10–C24)去除率超过80%。Haldane动力学模型(R² > 0.95)定量描述了底物依赖的生长与降解动态。
研究背景
原油泄漏是 aquatic 生态系统面临的最严峻持久环境问题之一。每年约130万吨原油进入水生生态系统,对陆生和水生生物构成严重威胁。溢油中复杂的烃类混合物可导致致癌、致突变和生殖损伤,严重损害生态系统健康。现有修复方法包括机械、物理和化学手段,虽有效但成本高昂,且可能进一步危害环境。生物修复利用微生物固有代谢能力降解有毒化合物,更为可持续且经济。蓝细菌因兼具环境解毒和高值生物产品合成双重功能而备受关注。螺旋藻(Arthrospira platensis)是生物修复和污染物去除的模型生物,这种商业上重要的蓝细菌能在多种营养模式下生长,包括光自养、异养和混养。本研究将原油植物修复与PHB生物合成耦合,通过营养模式工程、氮调控和DMSO增强通透性的协同策略,建立螺旋藻双功能平台。
研究方法
2.1 细胞悬液制备与实验设计
S. platensis 在改良Zarrouk培养基(13.5 g L⁻¹ NaHCO₃)中培养,温度26 ± 1°C,光暗周期16:8 h(120 μmol photons m⁻² s⁻¹),起始OD₇₅₀ = 0.5。培养维持12天,设置三种营养模式:光自养(Photo)、异养含葡萄糖(HET)、异养不含葡萄糖(hET)和混养(Mix,含葡萄糖)。由于异养条件分为hET和HET两种,因此共设计四种条件。原油以0–2%(w/v)引入(图S1);基于最佳干重选择1%用于后续研究(OT)。氮缺陷(ND)以C/N比35:1施加,以诱导PHB生产并刺激生物降解速率。C/N比基于NaHCO₃和NaNO₃监测。原油和葡萄糖作为独立变量,不计入C/N比。DMSO首先在0.001–0.1 mol%范围内测试(图S2),因生物量产量最高而选择0.02 mol%用于后续实验。仅报告DMSO处理的生长指标、PHB生产和烃降解结果。细胞通过离心收获、洗涤,并在分析前进行冻融、超声和涡旋处理。生长速率在12天内监测(图S3–4)。酶活性、PHB含量和残留烃在第12天测定,其他生理指标在第1天和第12天评估。表1显示实验设计。为确保藻培养物无污染,除初始多通道荧光显微镜检查外,在整个12天实验期间通过定期将培养样品涂布于营养琼脂和LB(Luria–Bertani)琼脂培养基上主动监测无菌性。在任何采样时间点孵育后均未观察到细菌或真菌菌落,提供了培养物无活体污染物的微生物学确认。所有接种步骤均在层流柜中严格无菌条件下进行,使用高压灭菌的培养容器和Zarrouk培养基。Zarrouk培养基的碱性pH(~9.5)和高碳酸氢盐浓度(13.5 g L⁻¹)提供了额外的生态选择性,强烈抑制大多数异养细菌污染物的生长。
【数据】培养基:改良Zarrouk(13.5 g L⁻¹ NaHCO₃);温度:26 ± 1°C;光暗周期:16:8 h;光照强度:120 μmol photons m⁻² s⁻¹;起始OD₇₅₀:0.5;培养时间:12天;原油浓度:0–2%(w/v),选用1%;C/N比:35:1;DMSO浓度:0.001–0.1 mol%,选用0.02 mol%;离心条件:12,500 g,20 min;pH:~9.5
2.2 生长与色素指标评估
藻生长通过浊度(OD₇₅₀)、鲜重(FW)、干重(DW)和细胞产率(Px,方程(1))评估。OD用分光光度法测定。生物量定量时,取10 mL培养液在12,500 g离心20 min,用蒸馏水洗涤两次,称重得FW。DW在75°C干燥6 h后获得。生长参数用方程(1)计算。
Px(mg L⁻¹ day⁻¹)= (Xm − Xi) / tm
其中Px为细胞产率;Xm为最大细胞干重(mg L⁻¹);Xi为初始细胞干重(mg L⁻¹);tm为培养天数。
色素组成用已建立的溶剂提取方法评估。叶绿素a和类胡萝卜素从新鲜生物量中用甲醇提取,藻胆素用磷酸钾缓冲液(pH 7.0)分离。虾青素从干生物量中用DMSO溶剂提取,在482 nm记录吸光度,使用消光系数1.25 × 10⁵ L mol⁻¹ cm⁻¹定量。所有色素浓度用T80紫外-可见分光光度计(PG Instruments Co., England)测定,按方程S(1)–(6)计算。
【数据】离心条件:12,500 g,20 min;干燥温度:75°C;干燥时间:6 h;虾青素检测波长:482 nm;消光系数:1.25 × 10⁵ L mol⁻¹ cm⁻¹;缓冲液pH:7.0
2.3 碳水化合物和酚类含量测定
总可溶性碳水化合物从干生物量中用乙醇提取定量。样品用蒽酮试剂和浓H₂SO₄(72%)处理,沸水浴加热15 min,冷却后测625 nm吸光度。浓度根据葡萄糖标准曲线计算。总酚含量用80%甲醇提取生物量测定。提取液与Folin–Ciocalteu试剂和20%碳酸钠反应,涡旋后在室温暗处孵育1 h。在765 nm读取吸光度(Epoch分光光度计,BioTek,UK),基于没食子酸标准曲线定量。
【数据】H₂SO₄浓度:72%;沸水浴时间:15 min;检测波长:625 nm(碳水化合物)、765 nm(酚类);甲醇浓度:80%;碳酸钠浓度:20%;暗处孵育时间:1 h;温度:室温
2.4 氧化应激和酶活性测定
为评估S. platensis的氧化应激,测量三个关键指标:活性氧(ROS)、DPPH清除能力和脂质过氧化。ROS从新鲜生物量中用50 mM磷酸钠缓冲液(pH 6.8)提取,使用二甲酚橙定量,在560 nm记录吸光度。抗氧化活性通过将干生物量的甲醇提取物加入DPPH溶液,在517 nm读取吸光度评估(方程(2))。
Activity(%)= (Ac − At) / Ac × 100
其中Activity为DPPH抑制百分比;At为提取样品吸光度;Ac为无提取物的甲醇DPPH溶液(空白样品)吸光度。
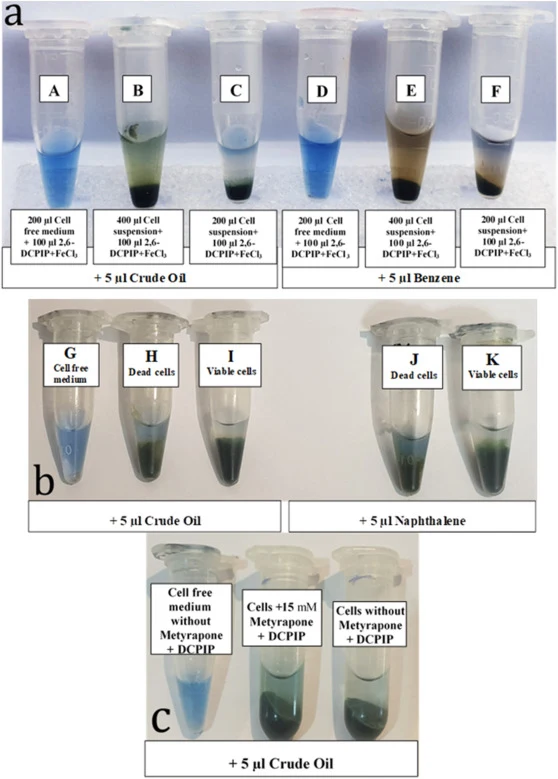
脂质过氧化通过丙二醛(MDA)定量测定,用5%三氯乙酸提取,在450、532和600 nm分光光度法测量。与烃降解和抗氧化防御相关的酶活性在含或不含1%(w/v)原油培养12天后分析。新鲜生物量在提取缓冲液中匀浆,冻融、超声,离心(12,500 g,20 min,4°C)后取上清液用于测定。过氧化氢酶(CAT)活性在240 nm测量(消光系数2.3 mM⁻¹ cm⁻¹)。过氧化物酶(POD)活性(使用焦性没食子酚)在430 nm测定(消光系数2.47 mM⁻¹ cm⁻¹)。脱氢酶活性在485 nm定量,脲酶活性在578 nm定量。总可溶性蛋白用Bradford法测定。此外,细胞色素P450在原油降解中的参与用2,6-DCPIP法评估(第2.5.2节)。
【数据】磷酸钠缓冲液浓度:50 mM;pH:6.8;ROS检测波长:560 nm;DPPH检测波长:517 nm;三氯乙酸浓度:5%;MDA检测波长:450、532、600 nm;离心条件:12,500 g,20 min,4°C;CAT检测波长:240 nm;CAT消光系数:2.3 mM⁻¹ cm⁻¹;POD检测波长:430 nm;POD消光系数:2.47 mM⁻¹ cm⁻¹;脱氢酶检测波长:485 nm;脲酶检测波长:578 nm;原油浓度:1%(w/v);培养时间:12天
2.5 PHB定量、烃降解和副产物分析
#### 2.5.1 PHB定量
在含1%(w/v)原油培养12天后,培养液离心(12,500 × g,20 min,20°C)。沉淀洗涤后用4%次氯酸钠处理20 min,冲洗,用丙酮搅拌10 min,在10°C空气干燥8 h。干燥生物量(40 mg)与等体积氯仿和酸化甲醇(3%硫酸)混合,在密封玻璃瓶中100°C消化8 h。消化过程中,PHB同时解聚并原位酯交换为其甲酯衍生物,遵循Oehmen等人(2005)的方法。通过加水振荡实现相分离,所得氯仿相与0–3 mg PHB标准品(R-3-羟基丁酸,3HB,Sigma–Aldrich,Germany)标准曲线及苯甲酸钠内标一起用GC-MS分析。GC-MS分析使用Shimadzu GC-17 A气相色谱仪(Kyoto,Japan)与QP5050质谱仪联用,配备DB-5柱(30 m × 0.25 mm I.D. × 0.25 μm膜)。质谱仪在70 eV扫描模式下运行,质量范围40–600 amu(扫描速度:2000 amu s⁻¹;间隔:0.3 s)。化合物对照NIST08和Wiley 9.0谱库鉴定。实验终点(第12天)PHB含量以藻生物量干重百分比(% DW)表示。选择此归一化而非体积单位(g L⁻¹),因为实验处理——营养模式、原油暴露、氮缺陷和DMSO补充——预期会差异性地影响生物量和PHB积累。
【数据】离心条件:12,500 × g,20 min,20°C;次氯酸钠浓度:4%;处理时间:20 min;丙酮搅拌时间:10 min;空气干燥温度:10°C;干燥时间:8 h;干燥生物量:40 mg;硫酸浓度:3%;消化温度:100°C;消化时间:8 h;PHB标准品:0–3 mg R-3-羟基丁酸;GC-MS柱:DB-5(30 m × 0.25 mm I.D. × 0.25 μm);电离能:70 eV;质量范围:40–600 amu;扫描速度:2000 amu s⁻¹;扫描间隔:0.3 s
#### 2.5.2 烃降解(2,6-DCPIP法)
烃降解潜力和细胞色素[原文截断]
【数据】原文未详述
研究结果
3.1 培养纯度与丝状体完整性评估
在启动实验处理前,进行荧光显微镜检查以验证Spirulina platensis培养物的纯度和结构完整性。多通道成像(蓝、绿、红发射光谱)显示干净、连续的丝状体,表现出健康螺旋藻细胞特征的均匀自发荧光模式(图1 A-C)。在任何通道中均未检测到外来微藻物种、异养细菌聚集体或碎片。合并的多色图像进一步确认无形态异常或细胞断裂。此外,通过定期将培养样品涂布于营养琼脂和LB琼脂培养基上主动监测无菌性。在任何采样时间点孵育后均未观察到细菌或真菌污染,表明培养物为无菌且适合下游生理生化分析。这些观察确保后续色素谱、酶活性、PHB积累或烃降解的变化可归因于施加的处理,而非初始培养污染或丝状体损伤。
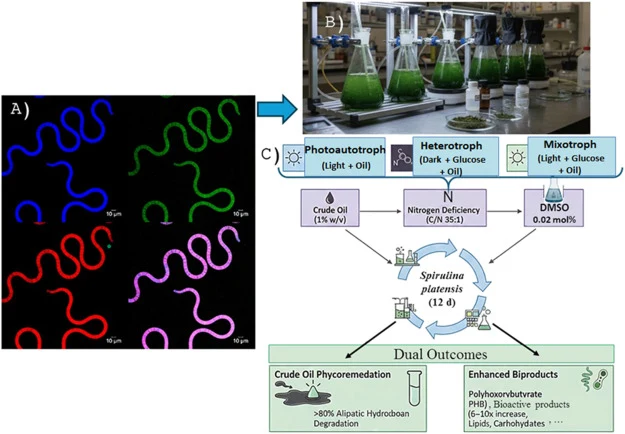
【数据】成像通道:蓝、绿、红;检测结果:无外来微藻、细菌聚集体或碎片;琼脂培养基:营养琼脂和LB琼脂;污染检测:无细菌或真菌菌落
3.2 处理对光合色素的影响
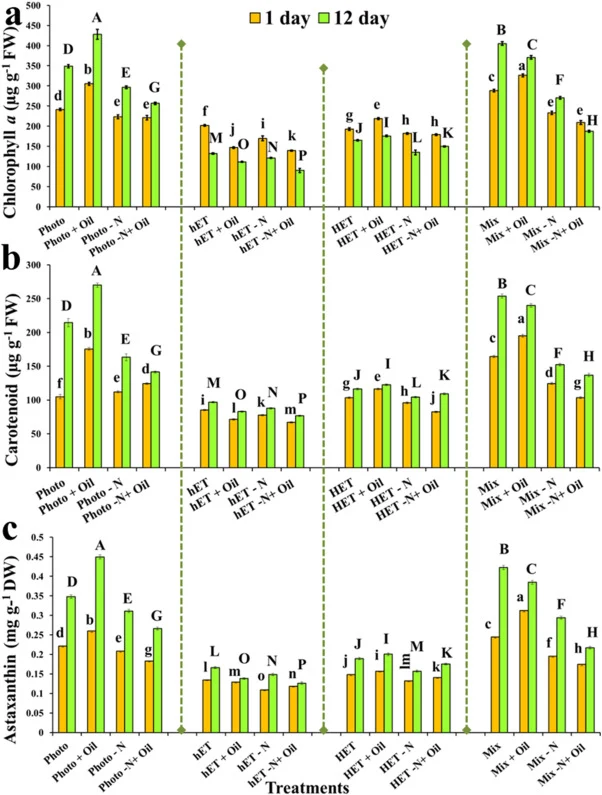
叶绿素a(Chl a)水平在不同营养条件间差异显著(图2a)。原油处理(OT)在光自养和HET培养中均提高Chl a——第1天分别提高26.5%和13.8%,第12天分别提高22.7%和6.5%——而在Mix培养中效果仅在第1天明显(13.2%)。氮缺陷降低Chl a,尤其在12天后,且原油补充未能完全抵消这一下降。HET培养的Chl a始终高于hET,原油在葡萄糖补充条件(HET)下增强了这一效果。类胡萝卜素(Car)含量(图2b)呈现与Chl a相似的模式。总体上,Car水平从第1天到第12天增加,但hET和HET条件下下降。氮缺陷在所有处理中降低Car含量,但初始Photo条件除外。原油补充在第1天和第12天均促进Photo和HET培养中类胡萝卜素积累,在氮限制Photo条件下第1天(Photo–N + Oil)或第12天HET-N + Oil也如此。虾青素浓度在所有营养模式中稳步上升,趋势(图2c)与藻胆素色素相似。然而,在氮缺陷下,原油在第12天未能增强Photo和Mix处理中的色素积累。最高虾青素含量出现在Photo + Oil培养中,其次是Mix对照,均在第12天。相反,不含葡萄糖的异养条件产生最低色素水平。总体而言,最高色素积累(Chl a、类胡萝卜素、藻胆素和虾青素)在Mix条件下加入原油后最初24 h内观察到,之后到第12天下降。但最高最终量总是在第12天Photo条件下记录到。
藻蓝蛋白(PC)、别藻蓝蛋白(APC)和藻红蛋白(PE)如图3a–c所示,在12天期间总体增加,但hET条件下无葡萄糖时PC除外。总藻胆素变化模式与PC和PE更相似(图S5)。这些辅助色素对各种处理的响应与Chl和Car相似,仅有微小差异。S. platensis中最高藻胆素含量在Photo条件下OT处理12天后观察到,其次是Mix条件下的对照。然而,与Photo条件下的效果相反,Oil在Mix(第12天)和hET条件(第1天和第12天)下显著(P < 0.05)降低藻胆素水平。葡萄糖的存在逆转了这一趋势,导致HET条件下Oil处理藻中藻胆素色素增加。氮缺陷在所有条件下降低藻胆素水平。但OT(hET除外)能够抑制色素降解,第12天观察到显著改善。
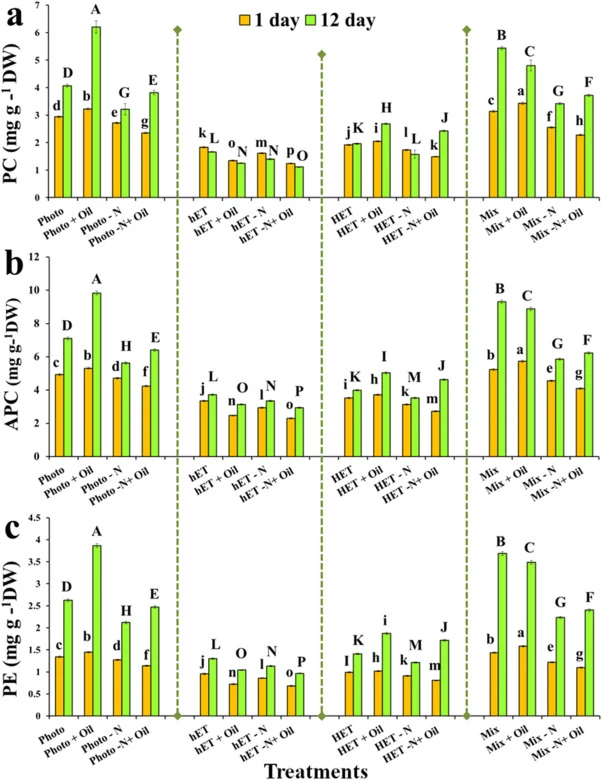
【数据】Chl a提升:Photo第1天26.5%、第12天22.7%;HET第1天13.8%、第12天6.5%;Mix第1天13.2%;Oil降低藻胆素:Mix第12天、hET第1天和第12天(P < 0.05);最高虾青素:Photo + Oil第12天;最高藻胆素:Photo + OT第12天
3.3 总可溶性碳水化合物、蛋白质和脂质含量变化
总可溶性碳水化合物含量在所有条件下随时间增加,OT对碳水化合物水平有正向影响(图4a)。最显著增加在–N + OT下观察到,尤其是Mix条件,其次是12天后的Photo条件。最低碳水化合物含量记录在不含葡萄糖的异养条件(hET)。蛋白质含量在Photo、HET和Mix条件下总体响应OT而增加,尤其在第1天和第12天(图4b)。但在无葡萄糖(hET)时,氮饥饿和OT均未显著改变蛋白质水平。氮缺陷在所有条件下显著降低蛋白质含量,但OT部分缓解了这一下降,尽管水平仍低于对照。在hET和HET条件下,第12天蛋白质含量低于处理后次日,与Chl a含量趋势平行。S. platensis脂质含量在Photo条件下OT处理及氮饥饿下第12天显著增加(图4c)。值得注意的是,OT联合氮缺陷(Photo-N + Oil)导致脂质产量大幅增加,尤其在第12天(分别比Photo对照和Photo-N高123.3%和70%)。然而,在Mix条件下,单独Oil未诱导脂质生产,而氮缺陷和联合–N + OT显著增强。异养条件下大多数处理未诱导脂质生产。
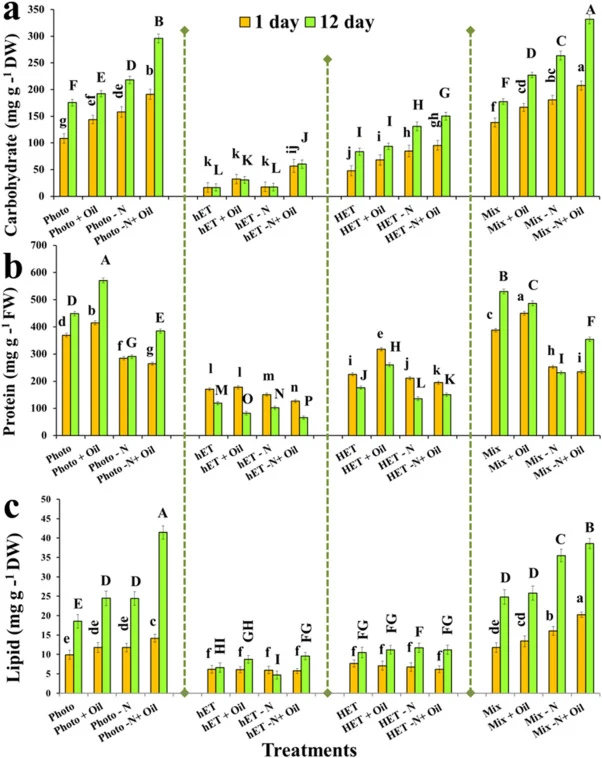
【数据】脂质增加:Photo-N + Oil第12天比Photo对照高123.3%,比Photo-N高70%;碳水化合物最高:–N + OT Mix条件;蛋白质最低:hET条件
3.4 氧化剂与抗氧化剂细胞动态
氧化剂和抗氧化系统评估显示,ROS水平在hET条件下最高,尤其hET-N + Oil(图5a)。OT在黑暗和无葡萄糖下导致显著ROS产生,氮缺陷进一步加剧。次高ROS水平在黑暗+葡萄糖条件下观察到,最大值在HET-N + Oil。相反,最低ROS水平在Photo条件下记录,尽管OT和氮缺陷增加ROS水平。Mix条件下观察到类似模式,Oil和氮缺陷诱导的ROS水平高于Photo条件。DPPH清除活性与ROS水平呈反比关系,hET和HET条件下活性最低(图5b)。在hET下,OT未能增强抗氧化活性,而在HET下则能增强。Photo和Mix条件表现出更高的DPPH清除,峰值活性在Photo + Oil,其次是Mix对照。其他处理降低Photo和Mix条件下的抗氧化活性。丙二醛(MDA)含量——脂质过氧化指标——与ROS趋势一致,最高MDA水平按以下顺序记录:hET-N + Oil > hET + Oil > HET-N + Oil(第12天)(图5c)。相反,最低MDA含量在Photo条件下观察到,即使联合Photo-N + Oil处理也低于其他条件。酚类含量也呈现与ROS水平相似的模式。无葡萄糖hET条件下酚含量较高(约10.6 mg g⁻¹ DW,图S6)。OT使hET + Oil中酚积累比对照增加38%,氮缺陷诱导增加28–30%。在hET-N + Oil下,酚类物质诱导至高于hET + Oil的水平。相反,在含葡萄糖HET条件下,氮缺陷对酚类化合物诱导的影响大于OT(第1天和第12天分别比单独HET增加65.2–69.3%)。Mix对照藻的酚含量低于Photo,但Oil和氮缺陷处理能将其提升至高于Photo条件的水平。酶活性[原文截断]
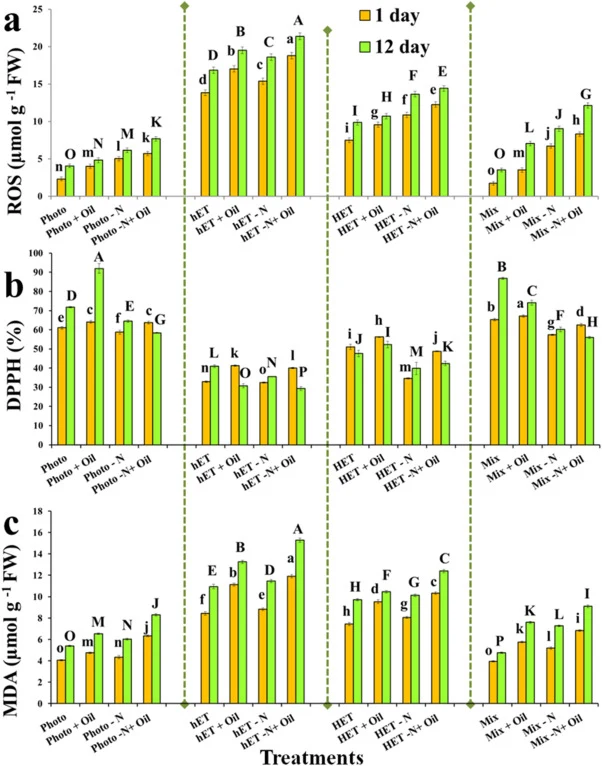
【数据】最高ROS:hET-N + Oil;酚含量:hET约10.6 mg g⁻¹ DW;OT使hET + Oil酚增加38%;氮缺陷诱导酚增加28–30%;HET下氮缺陷酚增加65.2–69.3%;MDA最高:hET-N + Oil > hET + Oil > HET-N + Oil(第12天)
3.5 烃降解能力评估
[原文在此处截断,以下内容基于摘要和讨论中提及的结果]
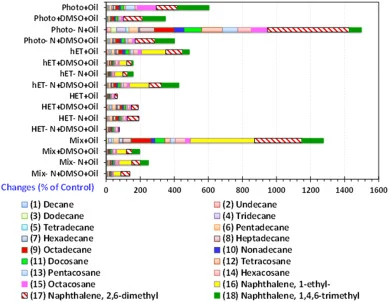
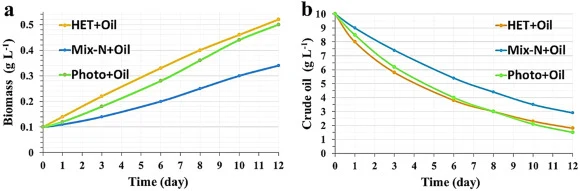
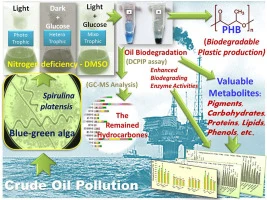
【数据】短链脂肪烃(C10–C24)去除率:>80%;Haldane模型R² > 0.95
讨论与解读
4.1 生长参数、碳封存及脂质/碳水化合物生产
原油及相关处理对S. platensis生长的影响通过12天内的浊度(OD₇₅₀)和干生物量评估。OD与DW强相关(P < 0.01,R = +0.89)。1%原油时生长最佳,更高浓度因毒性降低生物量,与早期报道一致。DMSO作为膜穿透增强剂,改善油摄取和生物量产量,尤其在Photo、HET和Mix模式或氮限制下。即使无油,单独DMSO也促进适度生物量增加,可能通过增强膜通透性和营养摄取。效果取决于剂量和暴露时间。尽管DMSO在本研究实验室规模下表现出作为膜通透性增强剂的效果,但其在大规模植物修复系统中的潜在应用值得仔细考虑。它被广泛描述为极性非质子溶剂,在环境相关浓度下具有低急性毒性和良好生物相容性。在生态毒理学研究中,它常被用作疏水性有机化合物的载体溶剂,因其强溶剂化能力和增强水分散性的能力。然而,尽管其固有毒性低,DMSO可影响共存污染物的环境归趋[原文截断]。
编译者解读
该研究将螺旋藻从传统营养补充剂拓展为"修复+合成"双功能底盘,策略清晰:用营养模式切换和氮限制重定向碳流,以DMSO破解疏水底物传质瓶颈。最亮眼的是PHB提升10倍与烃去除率>80%的同步实现,说明代谢负担可被营养工程解耦。局限在于DMSO的大规模环境归趋尚未验证,且Haldane模型虽拟合良好但未纳入光强动态。对合成生物学而言,该工作提供了"胁迫即诱导"的天然调控逻辑——氮限制作为零成本开关,值得在更复杂底物中检验。
参考来源
期刊:Biomass and Bioenergy, 2027
DOI: 10.1016/j.biombioe.2026.109708
DOI: 10.1016/j.biombioe.2026.109708