来源:System-level metabolic and enzyme engineering enables high-titer gastrodin biosynthesis in yeast(Bioresource Technology)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
天麻素是一种临床用于治疗偏头痛及神经血管疾病的神经保护性酚苷,但其可持续规模化生产始终面临挑战。本研究针对酿酒酵母中天麻素生物合成的三重瓶颈——莽草酸途径碳流受限、分支酸节点代谢竞争强烈、植物源糖基转移酶对4-羟基苄醇催化效率低下——建立了机制导向的代谢与酶重编程策略。最终菌株在摇瓶中产5.44 g/L天麻素,在5 L补料分批发酵中达到90.34 g/L,为目前报道的最高微生物滴度。
研究背景
植物源天然产物是药理活性分子的重要来源。天麻素是兰科植物天麻的主要活性成分,1984年获中国国家药品监督管理局批准用于治疗神经衰弱、偏头痛、三叉神经痛、枕神经痛等神经血管疾病。除已确立的临床适应症外,天麻素近年来因其更广泛的神经保护、肝保护、心脏保护、抗病毒和抗癌特性而重新受到关注。然而,干燥天麻根茎中天麻素的天然丰度极低(约0.41%),植物提取不可持续。化学合成虽可达58.1%的产率,但需使用危险试剂和高压条件,限制了其环境与工业可行性。这些局限促使研究者转向微生物生物合成——一种可规模化、可持续且环境友好的替代方案。迄今已有多个微生物宿主被改造以构建从分支酸到天麻素的从头合成路线。在该路径中,分支酸经分支酸丙酮酸裂解酶(UbiC)转化为4-羟基苯甲酸,再由羧酸还原酶(CAR)-磷酸泛酰巯基乙胺基转移酶(PPTcg)还原为4-羟基苯甲醛,进一步转化为4-羟基苄醇(4HBA),最终由UDP-糖基转移酶(UGT)催化糖基化生成天麻素。然而,碳流进入莽草酸途径受限、分支酸节点代谢竞争强烈以及植物源UGT对4HBA催化效率低,共同制约了天麻素的微生物产量。
研究方法
2.1 菌株与培养基
本研究所用全部酿酒酵母菌株列于补充材料中。酵母菌株根据实验目的常规培养于YPD培养基或最小MV培养基中。MV培养基根据需要补充l-苯丙氨酸(l-Phe)和/或l-酪氨酸(l-Tyr)以进行营养缺陷型评估。对于基因组编辑,菌株在含G418的YPD琼脂平板上进行筛选。大肠杆菌DH10β和NEB Stable菌株用于质粒构建,在含适当抗生素的LB培养基中培养。培养基详细组成和培养条件见补充材料。
【数据】培养基:YPD或最小MV培养基;筛选抗生素:G418;营养补充:l-Phe和/或l-Tyr(按需);大肠杆菌菌株:DH10β、NEB Stable;培养条件:原文未详述
2.2 菌株构建
全部酿酒酵母菌株均采用CRISPR–Cas9辅助的同源重组构建。含有目标表达模块和同源臂的整合盒被组装后,与Cas9–gRNA质粒一起导入进行基因组编辑。Guide RNA基于先前报道的基因组位点或使用CHOPCHOP工具设计。转化子在含G418的平板上筛选,并通过菌落PCR和Sanger测序验证。天然基因和调控元件从酿酒酵母基因组DNA中扩增,异源基因经密码子优化后合成。质粒构建、guide序列、引物和整合位点的详细信息见补充材料。
【数据】编辑方法:CRISPR–Cas9辅助同源重组;筛选标记:G418;验证方法:菌落PCR、Sanger测序;guide设计工具:CHOPCHOP;异源基因:密码子优化后合成
2.3 UGT变体的蛋白表达与纯化
UGT变体以His6标签融合蛋白形式在大肠杆菌BL21 (DE3)中异源表达,并使用Ni-NTA亲和层析纯化。蛋白表达和纯化的详细步骤见补充材料。
【数据】表达宿主:大肠杆菌BL21 (DE3);标签:His6;纯化方法:Ni-NTA亲和层析;表达条件:原文未详述
2.4 体外酶学测定
UGT变体的糖基化活性以4HBA和UDP-糖为底物进行评估。反应在规定的缓冲条件下进行,用甲醇淬灭后进行分析。产物生成和底物消耗通过超高效液相色谱(UPLC)基于峰面积定量。所有测定均做三次重复。详细反应条件和色谱参数见补充材料。
【数据】底物:4HBA、UDP-糖;淬灭剂:甲醇;检测方法:UPLC(峰面积定量);重复次数:3次;缓冲条件:原文未详述
2.5 AtUGT72B1突变体文库构建与筛选
对AtUGT72B1进行丙氨酸扫描突变以鉴定对催化活性有贡献的残基,随后在选定位置进行迭代饱和突变。突变体文库使用NNK简并密码子构建,并通过全细胞生物转化测定进行筛选。显示改善产物生成的变体被选出,并用纯化酶在体外活性测定中进一步验证。文库构建、表达和筛选的详细步骤见补充材料。
【数据】突变方法:丙氨酸扫描突变、迭代饱和突变;简并密码子:NNK;筛选方法:全细胞生物转化;验证方法:纯化酶体外活性测定
2.6 动力学参数测定
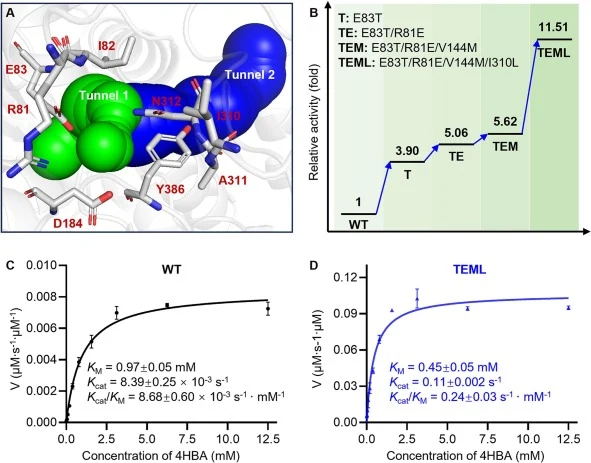
AtUGT72B1和TEML变体的动力学参数在初速度条件下使用纯化酶和不同浓度的4HBA测定。反应时间(WT为15 min,TEML为5 min)和酶浓度在预实验中优化以确保初速度条件,产物生成与时间和酶浓度均呈线性关系,底物转化率低于10%。反应用甲醇淬灭,产物生成通过LC–MS/MS分析定量。所有测定均做三次重复。详细反应条件和仪器参数见补充材料。
【数据】反应时间:WT 15 min、TEML 5 min;底物转化率:<10%;淬灭剂:甲醇;检测方法:LC–MS/MS;重复次数:3次;底物:4HBA(浓度梯度)
2.7 分子对接与分子动力学模拟
进行了结构建模、分子对接和分子动力学(MD)模拟以分析AtUGT72B1变体的蛋白–配体相互作用。TEML变体基于同源结构建模,依次对UDP-葡萄糖和4HBA进行对接。进行MD模拟以评估构象稳定性和相互作用动力学。详细模拟方案见补充材料。
【数据】方法:结构建模、分子对接、MD模拟;对接底物:UDP-葡萄糖、4HBA(依次);模拟参数:原文未详述
2.8 摇瓶培养、补料分批发酵与代谢物定量
对于摇瓶培养,酿酒酵母菌株在YPD培养基中于30 °C振荡培养,收集培养上清液进行代谢物分析。补料分批发酵在5 L生物反应器中使用菌株GAS36进行。初始工作体积为1.8 L,发酵在30 °C下进行,pH维持在5.8。通气(2.5 vvm)和搅拌(400–600 rpm)被控制以维持溶解氧在约40%。初始葡萄糖耗尽后,补加浓缩葡萄糖以维持残余葡萄糖低于0.5 g/L,从而最小化溢流代谢。发酵过程中施加营养补料和维生素补充以支持细胞生长和代谢活性。定期收集样品以监测生物量和代谢物浓度。葡萄糖、甘油、乙醇和乙酸通过高效液相色谱(HPLC)使用Aminex HPX-87H柱定量,而4HBA和天麻素使用C18柱配合紫外检测分析。详细发酵条件和色谱参数见补充材料。
【数据】生物反应器:5 L;工作体积:1.8 L;温度:30 °C;pH:5.8;通气:2.5 vvm;搅拌:400–600 rpm;溶解氧:约40%;残余葡萄糖:<0.5 g/L;初始葡萄糖:20 g/L;HPLC柱:Aminex HPX-87H(葡萄糖/甘油/乙醇/乙酸)、C18(4HBA/天麻素);检测:UV
研究结果
3.1 鉴定用于酿酒酵母中天麻素从头合成的高效UGT
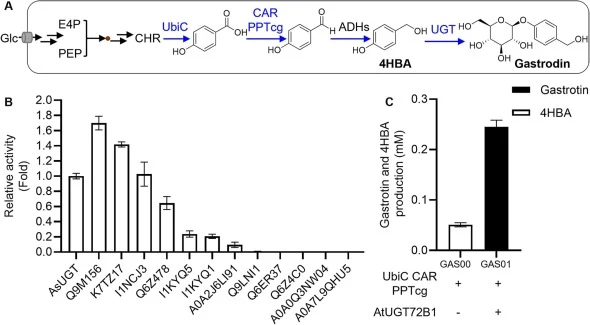
UDP-糖基转移酶(UGT)催化天麻素生物合成的最后一步,将葡萄糖基团转移至4HBA形成天麻素(图1A)。然而,先前研究表明来自蛇根木(Rauvolfia serpentina)的UGT(AsUGT)在酿酒酵母中催化该反应效率低下,从而限制了整体生产效率。这可能归因于AsUGT对4HBA的有限催化活性,其体外测定中相对较低的活性反映了这一点(图1B)。为解决这一瓶颈,使用Foldseek服务器(https://search.foldseek.com)以AlphaFold模型AF-Q9AR73-F1(AsUGT)为查询进行了基于结构同源性的搜索。未应用严格的相似性截断值,而是基于Foldseek比对分数选择代表不同结构相似性范围的候选UGT。选取了13个显示不同程度结构相似性的候选UGT进行异源表达、纯化和4HBA糖基化活性的体外酶学评估。在测试的UGT中(图1B),两个表现出优越活性,一个表现出相当活性,其中来自拟南芥的UGT72B1(UniProt ID: Q9M156;GenBank登录号AAK25972.1,以下称AtUGT72B1)对4HBA表现出最高的催化效率——约为AsUGT的1.7倍。为在体内验证AtUGT72B1的功能并建立天麻素生物合成的宿主菌株,首先修复了酿酒酵母CEN.PK2-1C中的营养缺陷型(ura3-52、trp1-289、leu2-3,112和his3Δ1),产生原养型菌株HL195。该设计与本研究所用的基于CRISPR的无标记基因组工程策略兼容,并消除了对营养缺陷型营养补充的需求,从而提高了菌株对发酵和潜在工业应用的适用性。随后,将来自大肠杆菌的UbiC、来自诺卡氏菌(Nocardia iowensis)的CAR和来自谷氨酸棒杆菌(Corynebacterium glutamicum)的PPTcg的基因表达盒整合到HL195中,获得菌株GAS00,其产生0.05 mM 4HBA。在GAS00中过表达AtUGT72B1得到菌株GAS01,其产生0.25 mM天麻素,未检测到4HBA积累(图1C)。
【数据】候选UGT数量:13个;AtUGT72B1催化效率:约为AsUGT的1.7倍;出发菌株:CEN.PK2-1C;修复的营养缺陷型:ura3-52、trp1-289、leu2-3,112、his3Δ1;原养型菌株:HL195;GAS00 4HBA产量:0.05 mM;GAS01天麻素产量:0.25 mM;4HBA积累:未检出
3.2 发现具有优越反馈抑制抗性的DAHP合酶变体增强莽草酸通量
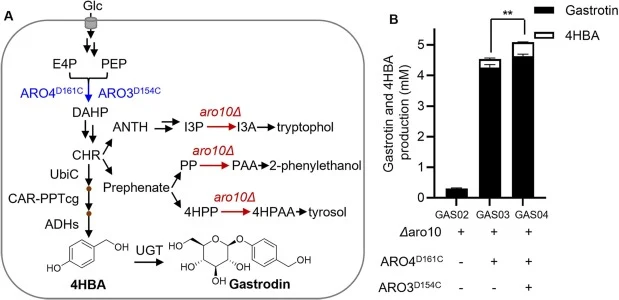
解除3-脱氧-d-阿拉伯庚酮糖酸7-磷酸(DAHP)合酶的反馈抑制是增强碳流向莽草酸衍生代谢物的成熟策略。先前工作鉴定了酿酒酵母天然DAHP合酶Aro3中的D154N突变(Aro3D154N),该突变显著减轻了10 mM l-苯丙氨酸(l-Phe)的抑制,但在更高浓度如20 mM时效果减弱。该突变被认为降低了DAHP合酶与其变构抑制剂l-Phe之间的结合亲和力。基于这些发现,假设同一位点的替代替换可进一步增强反馈抗性。为探索这一点,在ARO4缺失的背景菌株(HL195 Δaro4)中对Aro3的D154残基进行了位点饱和突变。若干突变包括D154P和D154W损害了在液体最小培养基中的基础生长,而D154V、D154L、D154I和D154F在固体最小培养基上显示生长缺陷(见补充材料),因此被排除在进一步分析之外。相比之下,八个变体——D154A、D154C、D154S、D154T、D154N、D154Q、D154Y和D154H——维持了正常的基础生长,并表现出对20 mM l-Phe的显著改善耐受性,表明反馈抑制的增强解除。在从OD600 = 1培养物起始并经过10倍系列稀释的点滴实验中,Aro3D154C和Aro3D154S等变体在20 mM l-Phe下比Aro3D154N至少多维持一个稀释级别的可见生长,表明反馈抑制抗性增强(见补充材料)。鉴于Aro3和Aro4之间强烈的序列保守性,将相应的替换D161C和D161S引入Aro4以评估是否可重现类似效果。Aro4D161C显示出与广泛使用的Aro4K229L突变体相当的l-Tyr抑制抗性,而Aro4D161S显示出中等程度的耐受性降低(见补充材料)。这些观察表明,在DAHP合酶的变构抑制位点将保守酸性残基替换为半胱氨酸是增强对芳香族氨基酸反馈抑制抗性的广泛有效策略。为评估这些反馈不敏感变体对天麻素生产的功能影响,首先在菌株GAS01中删除ARO10以阻断碳流进入竞争性芳香族杂醇途径——如酪醇、2-苯乙醇和色醇(图2A)——得到菌株GAS02。该菌株产生0.3 mM天麻素,未检测到4HBA积累。在GAS02中过表达Aro4D161C得到菌株GAS03,其产生4.26 mM天麻素和0.28 mM 4HBA——总芳香族产物滴度增加约14倍。向GAS03中添加Aro3D154C进一步增强了产量,菌株GAS04达到4.64 mM天麻素和0.45 mM 4HBA——总芳香族滴度整体增加12.1%(图2B)。总体而言,这些结果强调,合理设计的增强DAHP合酶反馈抗性的突变对于解锁莽草酸途径的代谢通量至关重要,从而使天麻素等高价值芳香族化合物的高效生物合成成为可能。
【数据】突变位点:Aro3 D154、Aro4 D161;维持正常生长的变体:D154A、D154C、D154S、D154T、D154N、D154Q、D154Y、D154H(共8个);l-Phe耐受浓度:20 mM;GAS02天麻素产量:0.3 mM;GAS03天麻素产量:4.26 mM、4HBA 0.28 mM;总芳香族产物增加:约14倍;GAS04天麻素产量:4.64 mM、4HBA 0.45 mM;总芳香族滴度增加:12.1%
3.3 精细调控芳香族氨基酸生物合成以将莽草酸通量重定向至天麻素生产
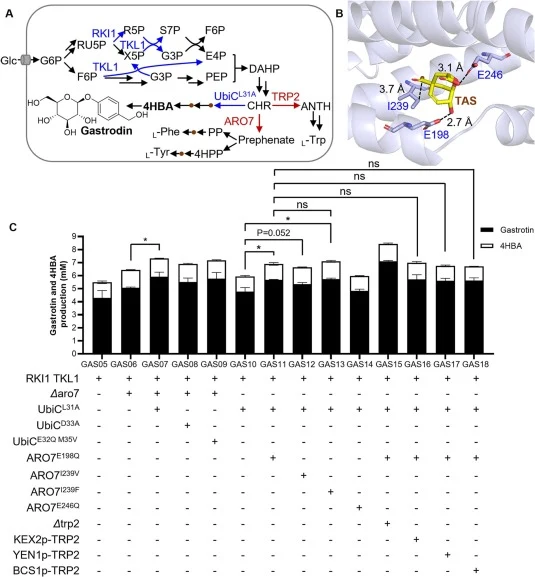
在莽草酸途径中,分支酸作为关键代谢分支点,通过分支酸变位酶Aro7为l-Tyr和l-Phe提供前体,或通过邻氨基苯甲酸合酶Trp2进入l-Trp途径(图3A)。由于这些竞争路线直接消耗4HBA形成所需的同一中间体,代谢通量从芳香族氨基酸生物合成被重定向至天麻素生产。为防止上游限制掩盖分支点效应,首先通过在GAS04中过表达RKI1和TKL1(分别编码核糖-5-磷酸酮醇异构酶和转酮醇酶)来增强前体供应,得到GAS05。该干预使总芳香族化合物增加7.8%(图3C),与E4P可用性限制莽草酸途径通量的作用一致。在前体供应增强后,随后研究了限制通量进入l-Tyr和l-Phe分支对4HBA生产的影响。在GAS05中删除ARO7使总芳香族化合物提高17.2%,证实降低Aro7活性有效将分支酸重定向至UbiC节点。然而,Aro7的完全缺失导致l-Tyr和l-Phe营养缺陷(见补充材料),强调需要精细调控而非废除这一必需节点以实现可规模化发酵。分支点评估中的第二个混杂因素是UbiC受4-羟基苯甲酸的强烈产物抑制,这可能掩盖ARO7调控的效果。为消除这一干扰,筛选了三种先前报道的抑制抗性UbiC变体——UbiCL31A、UbiCD33A和UbiCE32Q M35V。其中UbiCL31A被鉴定为最有效,使总芳香族化合物提高13.7%(GAS05 → GAS07;图3C)。因此GAS07作为评估Aro7变体的干净背景。随后基于Aro7与过渡态类似物的活性态复合物进行了结构导向工程改造。
【数据】过表达基因:RKI1、TKL1;GAS05总芳香族增加:7.8%;ARO7删除总芳香族增加:17.2%;UbiC变体:UbiCL31A、UbiCD33A、UbiCE32Q M35V;UbiCL31A总芳香族增加:13.7%(GAS05 → GAS07);ARO7缺失表型:l-Tyr和l-Phe营养缺陷
3.4 优化碳分配增强天麻素生产
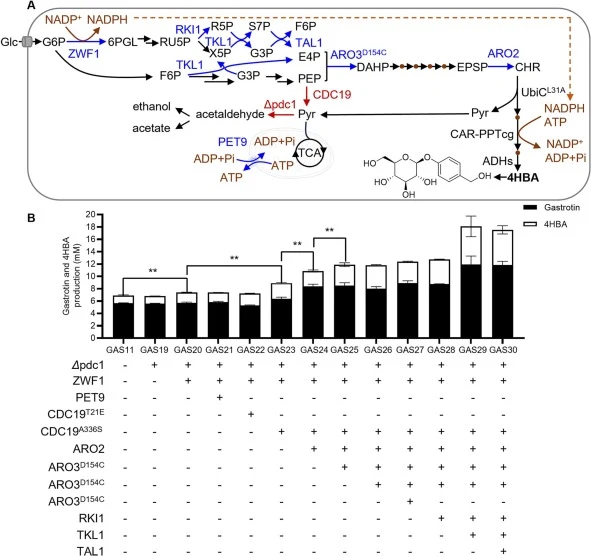
为增强碳流朝向天麻素生物合成,通过过表达RKI1、TKL1和转醛醇酶基因TAL1增加了E4P供应,这些与反馈抗性DAHP合酶变体协同作用以增强莽草酸途径通量(图4A)。同时,通过微调磷酸烯醇式丙酮酸(PEP)-丙酮酸分配来优化中央碳代谢。这些代谢重构策略共同提高了E4P、PEP和NADPH的可用性,为天麻素生产提供了充足的前体和还原力。
3.5 AtUGT72B1的定向进化通过迭代饱和突变提高催化活性
结构分析显示AtUGT72B1具有两个预测的通道:通道1(绿色)预测用于4HBA进入,通道2(蓝色)用于UDPG进入/退出(图5A)。通道内衬残基以棒状模型显示。基于结构导向的迭代饱和突变,对AtUGT72B1进行了定向进化以提高催化活性。经过多轮突变和筛选,获得了催化效率显著提高的变体TEML,其催化效率相对野生型酶提高26.6倍。同时,增强UDP-葡萄糖生物合成进一步支持了在升高的途径通量下的高效糖基化。
【数据】突变方法:迭代饱和突变;变体名称:TEML;催化效率提升:相对野生型提高26.6倍;通道分析:通道1(4HBA进入,绿色)、通道2(UDPG进入/退出,蓝色)
3.6 补料分批发酵生产天麻素
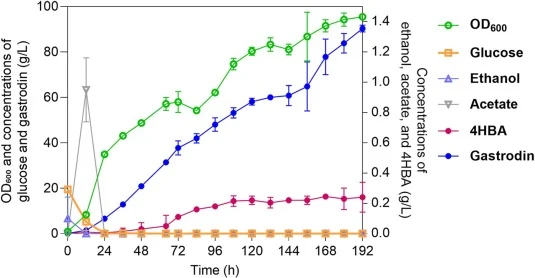
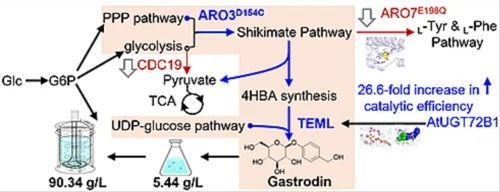
在5 L生物反应器中使用菌株GAS36进行补料分批发酵,工作体积1.8 L。初始20 g/L葡萄糖耗尽后开始葡萄糖补料,维持残余葡萄糖低于0.5 g/L。整合这些多层次工程策略后,摇瓶中天麻素产量达到19.01 mM(5.44 g/L),补料分批发酵中达到90.34 g/L,代表了迄今报道的最高微生物滴度。
【数据】生物反应器:5 L;工作体积:1.8 L;初始葡萄糖:20 g/L;残余葡萄糖:<0.5 g/L;摇瓶天麻素产量:19.01 mM(5.44 g/L);补料分批发酵天麻素产量:90.34 g/L;摇瓶碳产率:0.272 g/g葡萄糖;摇瓶生产速率:0.057 g/L/h;发酵碳产率:0.228 g/g葡萄糖;发酵生产速率:0.47 g/L/h
讨论与解读
本研究通过协同重构前体进入莽草酸途径、精确衰减竞争性分支点通量、合理平衡中央碳代谢以及通过酶进化解决末端糖基化瓶颈,实现了高水平生产。最终菌株在摇瓶中产5.44 g/L天麻素(0.272 g/g葡萄糖,0.057 g/L/h),在5 L补料分批发酵中达到90.34 g/L(0.228 g/g葡萄糖,0.47 g/L/h),展示了高效的碳利用和强大的工业潜力。本工作所描述的协调策略——将中央代谢架构优化与定制化酶性能增强相结合——为工程化微生物细胞工厂生产莽草酸衍生酚类和芳香族糖苷提供了一种有前景且可能可推广的方法。尽管在此仅展示了莽草酸→4HBA→天麻素途径,该策略可能适用于相关芳香族生物合成系统。更广泛地,本工作强调了将靶向酶重新设计与系统级代谢重编程耦合作为植物源芳香族化合物可持续生物制造的可规模化策略的有效性。
编译者解读:该研究的方法论价值在于"系统级同步"思路——不是单点突破,而是同时解决前体供应、竞争分支和终端酶效率三个层级的瓶颈。Aro3/Aro4变体的半胱氨酸替换策略具有跨物种可迁移性,而AtUGT72B1的26.6倍催化效率提升则展示了结构导向进化在植物酶适配微生物宿主中的潜力。局限在于:90.34 g/L的滴度虽为最高报道,但发酵周期和碳产率(0.228 g/g)仍有优化空间;此外,该策略在非莽草酸途径的芳香族化合物中的普适性尚需验证。
参考来源
期刊:Bioresource Technology, 2026
DOI: 10.1016/j.biortech.2026.134802
DOI: 10.1016/j.biortech.2026.134802