来源:Synthetic CO2-fixation pathway empowers Yarrowia lipolytica for high-performance succinic acid biosynthesis(Synthetic and Systems Biotechnology)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
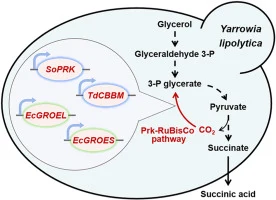
琥珀酸是重要的C4平台化合物,但好氧解脂耶氏酵母经氧化TCA途径合成琥珀酸时碳损失严重。本研究在解脂耶氏酵母中异源构建磷酸核酮糖激酶(Prk)—核酮糖-1,5-二磷酸羧化酶/加氧酶(RuBisCo)CO₂固定通路,借助大肠杆菌GroEL/S伴侣蛋白促进RuBisCo折叠,并通过多拷贝表达提升CO₂回收效率。摇瓶中琥珀酸滴度提高8%、得率提高32%;5 L生物反应器不控pH条件下滴度达124.61 g/L,甘油转化率0.46 g/g,生产强度0.88 g/(L·h)。这是该通路在解脂耶氏酵母中的首次功能建立。
研究背景
琥珀酸属C4二羧酸家族,是生物基化学品制造中的关键平台分子,传统应用覆盖可降解塑料、食品酸味剂与表面活性剂等领域。两个羧基赋予其高化学可塑性:催化加氢可得1,4-丁二醇,后者可进一步加工为四氢呋喃、γ-丁内酯和2-吡咯烷酮。凭借强衍生化潜力与环境友好属性,美国能源部将琥珀酸列为十二种优先生物基平台化学品之一。以发酵法替代石油基合成因此成为生物制造领域的重要方向。
目前发酵法生产琥珀酸主要依赖细菌与酵母平台。相较细菌,酵母耐酸性更强,在低pH下仍能维持稳定生长与代谢活性。但问题在于,好氧解脂耶氏酵母中经氧化TCA(oTCA)途径生成琥珀酸伴随大量碳损失——甘油高度还原,过量胞内NADH/NADPH驱动甘露醇与赤藓醇等多元醇副产物积累,拉低底物转化率与经济性。如何在好氧条件下"回收"CO₂、平衡氧化还原,成为提升得率的关键切入点。本研究把目光投向自养生物固定CO₂的核心模块——CBB循环中的Prk-RuBisCo通路。
研究方法
2.1 菌株与培养条件
本研究所用工程菌株汇总于表1。出发菌株为ST-109(Y. lipolytica Po1f-Δku70, ΔA08::LEU, Δsdh5, Δach1, ΔintF::YlPYC, Δpck, ΔIntC1::YlICL, YlMLS),它是解脂耶氏酵母Po1f(ATCC MYA-2613)的琥珀酸生产衍生株,其中KU70已被敲除以提高同源重组(HR)效率[14]。解脂耶氏酵母菌株在酵母蛋白胨甘油(YPG)培养基中、30°C、200 rpm orbital 振荡条件下培养约24 h,用于转化与发酵。大肠杆菌细胞在含氨苄青霉素的Luria-Bertani(LB)肉汤中培养,37°C、200 rpm振荡培养14至16 h以进行质粒提取。固体培养基通过在相应液体培养基中加入2%琼脂制备。工程菌株转化子在缺乏尿嘧啶并补充2%甘油的合成完全固体培养基(SC-Ura-G)上筛选[26]。URA3-blaster系统中的URA3标记使用YPD+5-FOA固体培养基回收。YPG、含氨苄青霉素LB、SC-Ura及YPD+5-FOA固体培养基的详细配方与制备流程均按既往报道执行[27]。
【数据】菌株:ST-109(Po1f-Δku70, ΔA08::LEU, Δsdh5, Δach1, ΔintF::YlPYC, Δpck, ΔIntC1::YlICL, YlMLS);培养基:YPG、LB+氨苄青霉素、SC-Ura-G、YPD+5-FOA;温度:酵母30°C、大肠杆菌37°C;转速:200 rpm;时间:酵母约24 h、大肠杆菌14–16 h;琼脂:2%;甘油:2%
2.2 质粒构建
本研究所构建的所有重组质粒均衍生自pUC57骨架,以URA3为选择标记。每个载体质粒含pUC57骨架、目标位点的上游同源臂、HisG-URA3-HisG(HUH)盒以及下游同源臂。基因表达用重组质粒的构建方式为:将表达盒插入同源臂与HUH片段之间,采用一步克隆法,方法如先前所述[28]。所构建的整合质粒如下:pUC-HUH-IntC3-TdCBBM,用于表达Thiobacillus denitrificans TdCBBM(AAA99178.2)[29];pUC-HUH-SCP2-SoPRK,用于表达Spinacia oleracea SoPRK(110791203)[16];pUC-HUH-7h-YlHSP10-YlHSP60,用于表达伴侣蛋白基因YlHSP10(YALI1B07652g)与YlHSP60(YALI1F04045g);pUC-HUH-7h-EcGROES-EcGROEL,用于表达大肠杆菌伴侣蛋白基因EcGROES(948655)与EcGROEL(948665)[30];以及多拷贝质粒pUC-HUH-IntD-TdCBBM-EcGROES-EcGROEL。所需启动子、目标基因与终止子均通过PCR扩增从解脂耶氏酵母Po1f基因组中获取。另外,密码子优化的异源基因由江苏科为生物科技有限公司合成订购。质粒pUC-HUH-IntC3-TdCBBM的构建方式为:PCR扩增启动子PTEFin、基因TdCBBM与终止子TPEX10,随后将这些纯化片段用一步克隆法插入pUC-HUH-IntC3质粒。其余单基因表达盒均采用相同方法构建。对于含两个及以上表达盒的质粒,先组装各表达盒,再连同额外整合片段或表达盒用一步克隆法整合入载体。本工作涉及的质粒、引物与外源基因均收录于补充数据表S1–S3。
【数据】质粒骨架:pUC57;选择标记:URA3;整合盒:HisG-URA3-HisG(HUH);外源基因:TdCBBM(AAA99178.2)、SoPRK(110791203)、YlHSP10(YALI1B07652g)、YlHSP60(YALI1F04045g)、EcGROES(948655)、EcGROEL(948665);启动子:PTEFin;终止子:TPEX10;方法:一步克隆;原文未详述PCR退火温度与循环参数
2.3 菌株转化
质粒pUC-HUH-IntC3-TdCBBM、pUC-HUH-SCP2-SoPRK、pUC-HUH-7h-YlHSP10-YlHSP60、pUC-HUH-7h-EcGROES-EcGROEL与pUC-HUH-IntD-TdCBBM-EcGROES-EcGROEL经线性化后,使用Frozen-EZ Yeast Transformation II试剂盒整合入尿嘧啶营养缺陷型工程菌株ST-109,获得表1所列衍生工程菌株。转化子涂布于SC-Ura-G固体培养基,正确转化子经PCR确认。对于后续轮次的基因整合,将在5 mL YPG培养基中过夜培养的菌液划线于YPD+5-FOA固体培养基,培养2至3天。随后挑取单菌落,点种至SC-Ura-G与YPD+5-FOA两种固体培养基上。培养2至3天后,在SC-Ura-G上不生长而在YPD+5-FOA上生长的菌落经裂解并进行PCR验证。URA3选择标记的成功去除表现为PCR产物缩短约3000 bp,对应URA3表达盒及一个HisG片段的缺失。
【数据】菌株:ST-109(ura3营养缺陷型);试剂盒:Frozen-EZ Yeast Transformation II;筛选培养基:SC-Ura-G、YPD+5-FOA;过夜培养体积:5 mL YPG;培养时间:2–3天;PCR验证:标记去除后产物缩短约3000 bp;原文未详述转化DNA用量与热激条件
2.4 发酵实验
摇瓶发酵始于将单菌落(从YPG固体平板挑取)接种至5 mL YPG培养基,30°C、200 rpm振荡培养24 h。随后将该预培养物转接至摇瓶中50 mL发酵培养基,初始OD600为0.1。主发酵在30°C、200 rpm orbital 振荡下进行120 h。
【数据】种子液体积:5 mL YPG;种子培养:30°C、200 rpm、24 h;发酵体积:50 mL;初始OD600:0.1;发酵条件:30°C、200 rpm、120 h
2.5 生物反应器发酵
为评估CO₂回收重组菌株ST-206的琥珀酸合成能力,发酵装置转移至5 L罐体。将携带菌株ST-206的过夜培养物接入盛有50 mL YPG肉汤的250 mL Erlenmeyer三角瓶,培养24 h,随后二次转接至盛有100 mL相同预培养液的500 mL摇瓶,再培养36 h。生物反应器初始装液2 L培养基,组成为150 g/L甘油、20 g/L蛋白胨与10 g/L酵母提取物。当甘油水平降至10 g/L以下时,以3–10 mL/h速率连续补加900 g/L甘油溶液。培养温度维持28°C,通气速率恒定为2 v.v.m.,不进行pH调控。20%溶解氧(DO)设定点仅通过调节300–800 rpm范围内的搅拌转速实现。
【数据】菌株:ST-206;罐体:5 L;装液量:2 L;培养基:150 g/L甘油、20 g/L蛋白胨、10 g/L酵母提取物;补料:900 g/L甘油,3–10 mL/h,触发阈值10 g/L;温度:28°C;通气:2 v.v.m.;pH:不调控;DO:20%,搅拌300–800 rpm;预培养:50 mL/24 h + 100 mL/36 h
2.6 代谢物分析
发酵结束后,取1 mL培养液于13,000 rpm离心3 min。弃去上清,将细胞沉淀重悬于去离子水中,使OD600值处于0.2至4之间。稀释后细胞悬液的OD600用Synergy H1多功能微孔板读数仪测定,最终OD600由测定值乘以稀释倍数计算。目标产物琥珀酸及副产物赤藓醇、草酰乙酸、苹果酸与甘露醇在胞内合成后分泌至胞外培养基中。这些代谢物连同作为碳底物的甘油,在配备示差检测器与Aminex HPX-87H色谱柱的1260 Infinity II Prime液相色谱平台上定量。测定前,各样品经0.22 μm水相滤膜过滤以去除悬浮颗粒。分析以5 mM H₂SO₄为流动相,流速0.6 mL/min,色谱柱恒温65°C[31]。
【数据】取样:1 mL;离心:13,000 rpm、3 min;OD600检测:Synergy H1,稀释范围0.2–4;色谱柱:Aminex HPX-87H;流动相:5 mM H₂SO₄;流速:0.6 mL/min;柱温:65°C;滤膜:0.22 μm;检测器:示差检测器
研究结果
3.1 甘油培养下Prk与RuBisCo对解脂耶氏酵母的代谢影响
在前期工作中,我们开发了一株能够合成琥珀酸的解脂耶氏酵母基因工程菌株。以甘油为底物在摇瓶中培养时,该菌株产生9.07 g/L琥珀酸,对应得率0.19 g/g。然而发酵液分析显示存在多种副产物,即0.22 g/L赤藓醇、1.29 g/L草酰乙酸、2.32 g/L苹果酸与4.04 g/L甘露醇[14]。在野生型解脂耶氏酵母中,低pH条件下以甘油培养有利于胞内多元醇(如甘露醇与赤藓醇)的积累。该效应归因于甘油较高的还原度,过量胞内NADH或NADPH促进甘露醇与赤藓醇的形成[32]。在解脂耶氏酵母以甘油为底物生产琥珀酸的过程中,甘露醇与赤藓醇的形成降低了底物转化效率与经济可行性。基于酿酒酵母中利用Prk-RuBisCo通路回收CO₂生产乙醇所建立的策略,我们将异源Prk-RuBisCo通路整合入工程菌株ST-109,旨在抑制副产物积累并由此提升琥珀酸得率。
Prk-RuBisCo通路是CBB循环的一部分,后者是绝大多数自养生物固定CO₂与合成糖类的中心代谢路线[33]。该通路中,核心CO₂固定生物催化剂是RuBisCo,该蛋白存在四种不同形式。仅Form I与Form II RuBisCo具备催化RuBP羧化或加氧反应的活性。Form I RuBisCo须组装为由八个大亚基与八个小亚基构成的16聚体结构才具催化活性,而Form II RuBisCo仅需由两个或六个大亚基组成的复合物即可表现酶功能[13]。在酿酒酵母中,基于Form I与Form II RuBisCo的Prk-RuBisCo通路均已被功能性构建,可实现CO₂回收用于乙醇生产[16,34]。由于Form II RuBisCo所需亚基更少,更适于异源表达与组装。因此选择编码来自Thiobacillus denitrificans的Form II RuBisCo的基因TdCBBM,在解脂耶氏酵母中构建异源Prk-RuBisCo通路(图2a)。
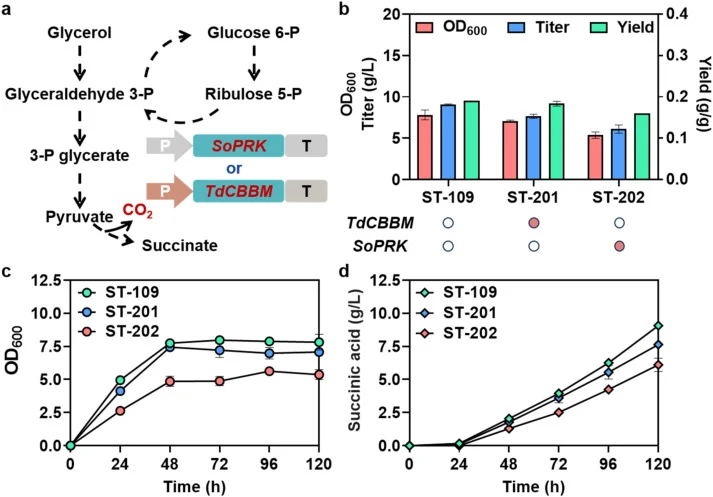
在菌株ST-109中异源表达密码子优化的TdCBBM获得工程菌株ST-201。该菌株的OD600、琥珀酸滴度与得率分别从7.82、9.07 g/L与0.19 g/g降至7.08、7.64 g/L与0.18 g/g(图2b、c、2d)。在酿酒酵母中,仅表达RuBisCo编码基因同样降低生物量,尽管乙醇产量未受影响[16]。Prk是该通路中另一必需组分,其功能是将经HMP途径氧化臂生成的Ru5P转化为RuBP。该酶虽可在酵母中有效表达,但单独表达PRK及由此产生的RuBP积累对宿主细胞有毒。具体而言,过量磷酸化糖的积累触发ROS(活性氧)生成,进而诱导胞内氧化应激(图2a)。由于酵母不能内源合成RuBP,选择来自Spinacia oleracea的PRK评估其在解脂耶氏酵母中的表达。与既往报道一致,表达SoPRK的工程菌株ST-202表现出严重生长抑制[35]。与出发菌株24 h时OD600达4.95相比,菌株ST-202同一时间点OD600仅为2.64,发酵结束最终OD600为5.37(图2b与c)。此外,菌株ST-202的琥珀酸滴度与得率显著降至6.13 g/L与0.16 g/g(图2b与d)。这些结果表明SoPRK在解脂耶氏酵母中实现了功能性表达。
【数据】出发菌株ST-109:OD600 7.82、琥珀酸9.07 g/L、得率0.19 g/g;副产物:赤藓醇0.22 g/L、草酰乙酸1.29 g/L、苹果酸2.32 g/L、甘露醇4.04 g/L;ST-201:OD600 7.08、7.64 g/L、0.18 g/g;ST-202:24 h OD600 2.64(对照4.95)、最终OD600 5.37、6.13 g/L、0.16 g/g
3.2 异源Prk-RuBisCo通路的功能性组装
为实现异源Prk-RuBisCo通路的功能性组装,将TdCBBM整合入菌株ST-202获得工程菌株ST-203,并评估其发酵性能(图3a)。菌株ST-203的OD600在24 h达3.70,较菌株ST-202提高40.15%。发酵后期观察到OD600略有下降,发酵结束时的最终OD600与菌株ST-202无显著差异(图3b与c)。仅携带TdCBBM与SoPRK的菌株ST-203将琥珀酸滴度恢复至与亲本菌株ST-109相当的水平,达8.93 g/L。得率亦从0.19 g/g略升至0.21 g/g(图3b与d)。这些表明异源Prk-RuBisCo通路可在解脂耶氏酵母中功能性实现,而无需表达伴侣蛋白。类似地,在K. marxianus中,异源Prk-RuBisCo通路已在未表达伴侣蛋白基因的情况下完成功能性组装,相对野生型获得更高的乙醇生成效率[23]。
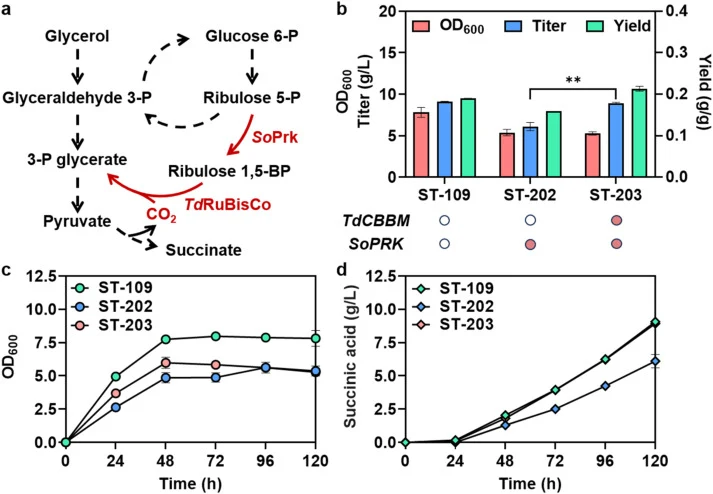
【数据】菌株:ST-203(ST-202 + TdCBBM);24 h OD600:3.70(较ST-202提高40.15%);琥珀酸滴度:8.93 g/L;得率:0.21 g/g(ST-109为0.19 g/g)
3.3 伴侣蛋白辅助增强RuBisCo折叠
既往在酿酒酵母中构建Prk-RuBisCo通路的研究报道,RuBisCo活性依赖伴侣蛋白辅助。GroEL/S型伴侣蛋白虽在真核与原核生物中均存在,但细菌GroEL/S在酵母中的功能对应物定位于线粒体[16]。值得注意的是,解脂耶氏酵母与K. marxianus无需过表达伴侣蛋白基因即可实现Prk-RuBisCo通路的功能性组装,而在酿酒酵母中,共表达内源GroEL/S型伴侣蛋白基因HSP60与HSP10可促进RuBisCo正确折叠。该观察提示,解脂耶氏酵母中Prk-RuBisCo通路的功能性建立可能与其内源GroEL/S型伴侣蛋白YlHsp60与YlHsp10的活性相关。基于NCBI数据库检索,解脂耶氏酵母内源GroEL/S型伴侣蛋白YlHsp60与YlHsp10的编码基因分别为YALI1F04045g与YALI1B07652g。序列比对显示,YlHsp60与酿酒酵母ScHsp60及大肠杆菌EcGroEL的相似性分别为77.90%与55.04%,YlHsp10与ScHsp10及EcGroES的相似性分别为63.74%与46.05%。
为评估这些伴侣蛋白是否促进RuBisCo折叠,在菌株ST-203中共表达内源YlHSP60与YlHSP10。所得重组菌株ST-204在24 h时OD600为2.01,发酵结束最终OD600升至6.56(图4b与c)。然而琥珀酸滴度与得率较菌株ST-203均下降,分别为7.49 g/L与0.19 g/g(图4b与d)。这些表明内源GroEL/S型伴侣蛋白Hsp60与Hsp10对Prk-RuBisCo通路的功能性组装并非必需。研究已证明,源自大肠杆菌的GroEL/S伴侣蛋白系统能够促进毕赤酵母与酿酒酵母中RuBisCo的正确折叠[29]。在此基础上,将大肠杆菌来源的伴侣蛋白编码基因GROEL与GROES共表达于菌株ST-203以构建重组菌株ST-205。结果显示,菌株ST-205的OD600与菌株ST-203无显著差异,而琥珀酸滴度与得率均上升,分别从8.93 g/L与0.21 g/g提高至9.30 g/L与0.23 g/g(图4b)。这些表明,与酿酒酵母和毕赤酵母中的观察类似,解脂耶氏酵母中RuBisCo折叠亦可由大肠杆菌来源的伴侣蛋白GroEL与GroES辅助。
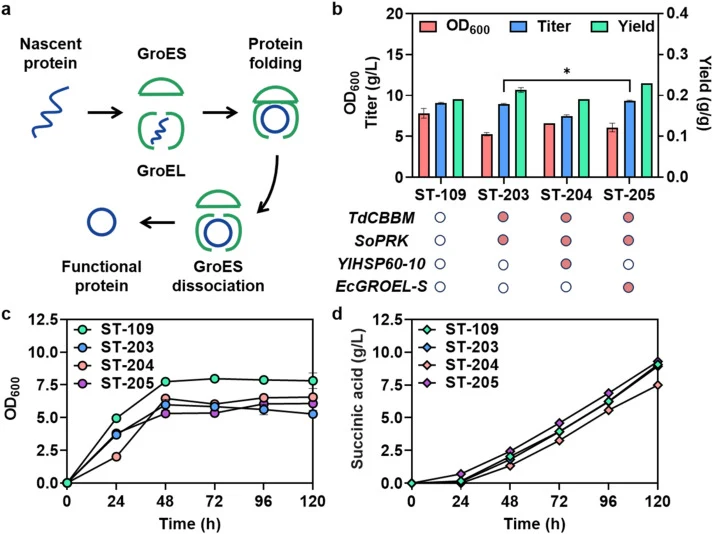
【数据】蛋白相似性:YlHsp60 vs ScHsp60 77.90%、vs EcGroEL 55.04%;YlHsp10 vs ScHsp10 63.74%、vs EcGroES 46.05%;ST-204:24 h OD600 2.01、最终6.56、7.49 g/L、0.19 g/g;ST-205:OD600与ST-203无显著差异、9.30 g/L、0.23 g/g
3.4 增强CO₂回收效率
(本节原文节选在此处中断,以下内容依据摘要与图表清单所载信息呈现,未见于节选正文的细节标注为原文未详述。)
在伴侣蛋白辅助折叠的基础上,进一步提升通路关键元件与伴侣蛋白基因的拷贝数。图5a展示了多拷贝表达策略:同一表达盒以两个拷贝整合于不同位点(P为启动子,T为终止子)。多拷贝表达关键元件与伴侣蛋白基因显著增强了CO₂回收效率,在摇瓶中相对亲本菌株实现琥珀酸滴度提高8%、得率提高32%,同时观察到甘油消耗减少与副产物总量下降,提示CO₂固定改善了氧化还原平衡。
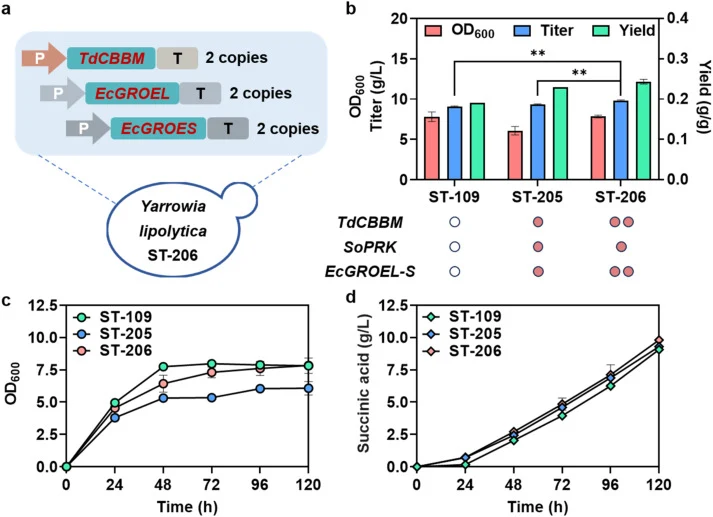
随后在5 L生物反应器中比较ST-109与ST-206的补料分批发酵性能。在pH不调控条件下,菌株ST-206最终琥珀酸滴度达124.61 g/L,甘油到产物的转化率为0.46 g/g,生产强度为0.88 g/(L·h)。图6a与6b分别记录了ST-109与ST-206随时间变化的甘油消耗、OD600、pH与琥珀酸生产情况。
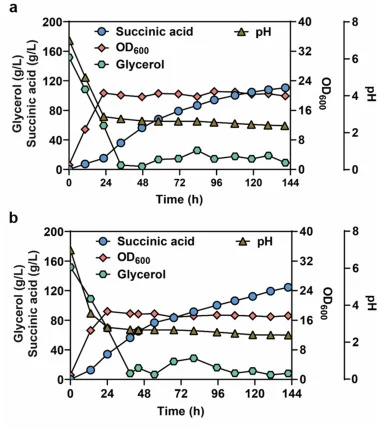
【数据】策略:多拷贝(2 copies,不同位点);摇瓶:滴度+8%、得率+32%(相对亲本);ST-206 5 L罐:滴度124.61 g/L、转化率0.46 g/g、生产强度0.88 g/(L·h);pH:不调控;原文节选未详述ST-109罐上具体数值
讨论与解读
本研究将CBB循环关键酶RuBisCo与Prk整合入产琥珀酸的解脂耶氏酵母,构建出功能性异源Prk-RuBisCo CO₂固定通路,使经oTCA途径生产琥珀酸的过程实现CO₂回收。发酵曲线分析与滴度、得率的显著提升验证了策略可行性。把高还原度底物甘油的代谢优势与Prk-RuBisCo通路的碳同化能力结合,将传统排碳过程转变为碳保守生物过程。当前增益虽属中等,但引入的模块可进一步挖掘,为未来自养型解脂耶氏酵母菌株的开发奠定代谢与概念基础。
编译者解读:该工作的亮点在于"先拆后装"的理性路径——先单独评估Prk与RuBisCo的代谢效应,确认RuBP积累的毒性边界,再组装完整通路,避免了盲目叠加。选择Form II RuBisCo降低组装复杂度,是务实的合成生物学取舍。局限同样明显:CO₂固定带来的得率增益仅32%,通路通量仍受RuBisCo催化效率与Prk毒性制约;不控pH的罐上策略虽简化工艺,却把选择压力留给了菌株本身。后续若能把多拷贝与启动子库、适应性进化结合,或可逼近理论碳得率。
参考来源
期刊:Synthetic and Systems Biotechnology(2027)
DOI: 10.1016/j.synbio.2026.10.014
DOI: 10.1016/j.synbio.2026.10.014