来源:Coupling corncob fractionation with covalent enzyme assembly for resveratrol biosynthesis from lignin-derived p-coumaric acid(Bioresource Technology)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
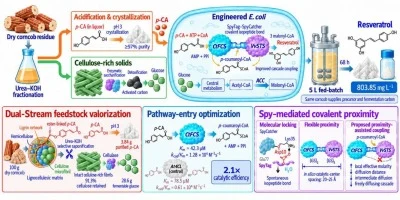
木质素是自然界最丰富的可再生芳香碳源,但其生物转化长期受制于"分级解聚"与"微生物途径设计"之间的脱节。本研究将低温尿素-氢氧化钾(UK)分级、途径入口酶替换与SpyTag/SpyCatcher共价酶组装三者串联:UK分级从玉米芯中释放191.97 ± 7.42 mg/g Klason木质素的对香豆酸(p-CA),同时保留富纤维素渣用于糖化;以木质素源p-CA为芳香前体、糖化液为碳源,在大肠杆菌中把植物4CL换成木质素降解菌来源的CtFCS,并用共价组装拉近连续反应酶对,最终在5 L补料分批发酵中产出803.85 ± 10.06 mg/L白藜芦醇。
研究背景
木质素是储量最大的可再生芳香结构来源,理论上可支撑化石基化学品的替代生产,但在可持续生物炼制的框架下,其高效增值始终难以落地。现有白藜芦醇的从头合成平台大多依赖精制碳源,原料成本高企;碳源贡献虽因宿主与工艺设计而异,但直接使用木质素或农业残渣显然可以降低对精制糖的依赖。当前木质素升级主要走热化学解聚加微生物漏斗化路线。玉米芯在此有其独特优势——其草本木质素富含天然酯键连接的p-CA,是回收苯丙烷类前体的理想原料。白藜芦醇(3,5,4′-三羟基二苯乙烯)是食品、医药与化妆品领域的高价值苯丙烷类化合物,从植物中提取耗溶剂量大、产量不稳,微生物生产因而受到越来越多关注。本研究即以此为模型,检验"分级—途径—组装"协同设计的可行性。
研究方法
2.1 菌株、培养基与化学试剂
本研究所用全部菌株与质粒分别列于表S1和表S2。大肠杆菌DH5α用于克隆与质粒扩增,大肠杆菌BL21(DE3)用于异源蛋白表达与白藜芦醇生产。Luria-Bertani(LB)培养基含10 g/L胰蛋白胨、5 g/L酵母提取物和10 g/L NaCl,用于种子培养与质粒扩繁。胰蛋白胨与酵母提取物购自BD Difco(美国);生产培养基中使用的是同一种酵母提取物。各维生素组分购自Sigma-Aldrich(美国)。固体培养基另加20 g/L琼脂。抗生素按需加入,终浓度分别为100 μg/mL氨苄青霉素、50 μg/mL卡那霉素或34 μg/mL氯霉素。白藜芦醇在改良M9基础培养基中生产,并补充表S3所列的微量元素与维生素。M9基础盐与酵母提取物一同高压灭菌。单独灭菌的碳水化合物母液以及经0.22 μm过滤的微量元素和维生素溶液,在基础培养基冷却后无菌加入;制备细节见补充方法1.4和1.8。p-CA(≥98%)与白藜芦醇(≥98%)标准品购自麦克林(中国上海)。二甲基亚砜(DMSO)、葡萄糖和异丙基-β-D-1-硫代吡喃半乳糖苷(IPTG)购自生工生物(中国上海)。其余试剂均为分析纯,直接使用。
【数据】培养基:LB(10 g/L胰蛋白胨、5 g/L酵母提取物、10 g/L NaCl);固体培养基琼脂:20 g/L;抗生素终浓度:氨苄青霉素100 μg/mL、卡那霉素50 μg/mL、氯霉素34 μg/mL;标准品纯度:p-CA ≥98%、白藜芦醇 ≥98%;滤膜孔径:0.22 μm;其余原文未详述
2.2 质粒构建
引物序列及Spy模块/连接肽序列见表S4,质粒图谱见图S1。拟南芥At4CL、Clostridium thermodepolymerans CtFCS和葡萄VvSTS的编码序列经高保真聚合酶链式反应(PCR)扩增后,克隆至相应表达载体。针对每一对上游酶/VvSTS组合,构建了三套双质粒系统,以便在匹配的载体背景下比较Spy介导的组装。U构型中,上游酶与VvSTS共表达,不带SpyTag或SpyCatcher。N构型中,At4CL–SpyTag或CtFCS–SpyTag与VvSTS–SpyCatcher(E77Q)配对。S构型则使用相应的反应性SpyTag/SpyCatcher对。E77Q替换通过全质粒定点突变引入含SpyCatcher的质粒;该替换已被用作SpyTag/SpyCatcher异肽键形成的非反应性对照(Zakeri et al., 2012)。
【数据】构型:U(无Spy标签)、N(SpyCatcher E77Q非反应性对照)、S(反应性SpyTag/SpyCatcher);突变方式:全质粒定点突变;突变位点:SpyCatcher E77Q;酶来源:拟南芥At4CL、C. thermodepolymerans CtFCS、葡萄VvSTS;其余原文未详述
2.3 从玉米芯中回收木质素源p-CA
#### 2.3.1 UK预处理与固液分离
玉米芯、高粱秸秆和花生壳均采购自中国江苏省苏州市张家港。原料经粉碎、60 °C干燥至含水率低于8%,过40目筛。每次预处理取2.50 g干生物质,与75.0 mL处理液在250 mL挡板瓶中混合,对应每30 mL预处理液1 g干生物质。所选UK处理液含1.0 M KOH,尿素按KOH:尿素质量比1:1加入(Zahoor et al., 2023),预处理在50 °C、160 rpm下进行4 h。另以1.0 M NaOH在相同温度、振荡、反应时间和固液比条件下作平行处理,作为常规碱预处理基准。预处理后,浆液经150目筛网过滤,分离出用于p-CA回收的碱性液相与用于酶法糖化的富纤维素固相。工艺优化所用范围、重复定义及组分回收率计算见补充方法1.1;配方名义输入与所选分级结果汇总于表S5。
【数据】生物质:玉米芯、高粱秸秆、花生壳;干燥温度:60 °C;含水率:<8%;筛目:40目;生物质用量:2.50 g;处理液体积:75.0 mL;固液比:1 g/30 mL;KOH浓度:1.0 M;KOH:尿素质量比:1:1;温度:50 °C;转速:160 rpm;时间:4 h;过滤筛目:150目;NaOH对照浓度:1.0 M
#### 2.3.2 p-CA的分离与纯化
p-CA回收时,碱性液相用H2SO4酸化至pH 3.0,随后经热-冷结晶获得粗p-CA。粗品重结晶两次,经高效液相色谱(HPLC)测定纯度≥97%。p-CA得率以未处理生物质的Klason木质素含量归一化,Klason木质素按NREL实验室分析规程测定。得率计算与分析流程见补充方法1.2.1。
【数据】酸化试剂:H2SO4;酸化终点:pH 3.0;结晶方式:热-冷结晶;重结晶次数:2次;纯度:≥97%;归一化基准:Klason木质素;测定方法:NREL实验室分析规程、HPLC
#### 2.3.3 纤维素源糖化液的制备
UK固液分离所得富纤维素固相用去离子水洗涤两次至中性,随后悬浮于50 mM柠檬酸缓冲液中,固含量15%(w/v)。里氏木霉纤维素酶(Celluclast 1.5 L;Sigma-Aldrich,美国)与绿色木霉内切-1,4-β-木聚糖酶M1(Megazyme,爱尔兰)按每克葡聚糖合计15 mg蛋白的装载量加入。酶解在50 °C、150 rpm下进行72 h,之后以8,000 × g离心10 min去除残余固相。回收的含糖流被称为纤维素源糖化液,以区别于用于p-CA回收的UK碱性液相。其葡萄糖与木糖浓度经带示差折光检测的HPLC定量。脱毒时,糖化液与0.5%(w/v)粉末活性炭(分析纯;国药集团化学试剂有限公司)在室温下孵育30 min,经0.22 µm膜过滤,再于0.08 MPa、50 °C下真空脱气30 min。这些步骤用于降低糠醛、5-羟甲基糠醛和木质素源酚类。脱毒糖化液随后被浓缩,作为配制初始生产培养基和补料液的通用碳水化合物流。
【数据】缓冲液:50 mM柠檬酸;固含量:15%(w/v);酶装载量:15 mg蛋白/g葡聚糖;酶解温度:50 °C;转速:150 rpm;时间:72 h;离心:8,000 × g、10 min;活性炭:0.5%(w/v);脱毒时间:30 min;脱毒温度:室温;过滤孔径:0.22 µm;真空脱气:0.08 MPa、50 °C、30 min
2.4 匹配U、N、S系统的验证与定量
匹配的U、N、S菌株通过将相应pACYCDuet-1与pETDuet-1衍生质粒共转化大肠杆菌BL21(DE3)获得。Spy依赖的复合物形成在诱导后48 h检查,所用培养物分别表达单个含Spy蛋白或匹配的N、S蛋白对。细胞裂解后未将蛋白伴侣共孵育,以确保检测到的复合物是在细胞表达过程中形成的。SpyCatcher(E77Q) N菌株作为相应反应性S菌株的非反应性对照。可溶性蛋白定量时,按生物量归一化的细胞沉淀在等体积裂解缓冲液中破碎,离心回收可溶组分。上游酶、VvSTS及复合物尺寸物种在非饱和曝光条件下经免疫印迹测定。免疫印迹使用抗At4CL、抗CtFCS和抗VvSTS抗体,纯化蛋白作为校准标准。支持性免疫印迹、校准方程及各培养物条带强度见图S10和表S16。详细验证、体外组装、pH稳定性及定量流程见补充方法1.5。
【数据】宿主:E. coli BL21(DE3);载体:pACYCDuet-1、pETDuet-1;检测时间点:诱导后48 h;复合物检测:免疫印迹(非饱和曝光);抗体:抗At4CL、抗CtFCS、抗VvSTS;校准:纯化蛋白标准品;其余原文未详述
2.5 上游酶活性与动力学测定
活化-缩合酶对最初在500-μL反应体系中比较,体系含50 mM Tris-HCl(pH 8.0)、0.5 mM p-CA、5 mM ATP、2 mM CoA、5 mM MgCl2、1 mM丙二酰辅酶A,以及各10 μM的上游酶与VvSTS。30 °C孵育60 min后,用等体积冰甲醇终止反应,HPLC定量白藜芦醇。At4CL与CtFCS的稳态动力学测定在30 °C下进行,酶浓度0.5 μM,p-CA浓度范围10至500 μM。p-CCoA的初始生成在333 nm监测。表观Km与kcat值通过非线性拟合Michaelis-Menten方程获得。SpyTag/SpyCatcher及共价组装对上游酶活性的影响另做检验(原文此处节选结束)。
【数据】反应体积:500 μL;缓冲液:50 mM Tris-HCl(pH 8.0);p-CA:0.5 mM;ATP:5 mM;CoA:2 mM;MgCl2:5 mM;丙二酰辅酶A:1 mM;酶浓度:各10 μM;温度:30 °C;时间:60 min;动力学酶浓度:0.5 μM;p-CA范围:10–500 μM;检测波长:333 nm;终止方式:等体积冰甲醇
研究结果
3.1 p-CA的回收与富纤维素残渣的增值
#### 3.1.1 玉米芯木质素中p-CA的释放与纯化
低温UK分级从三种受试富木质素农业残渣——玉米芯、高粱秸秆和花生壳——中均释放出p-CA。玉米芯得率最高,1.0 M NaOH作常规碱法基准。分级流程见图1A。
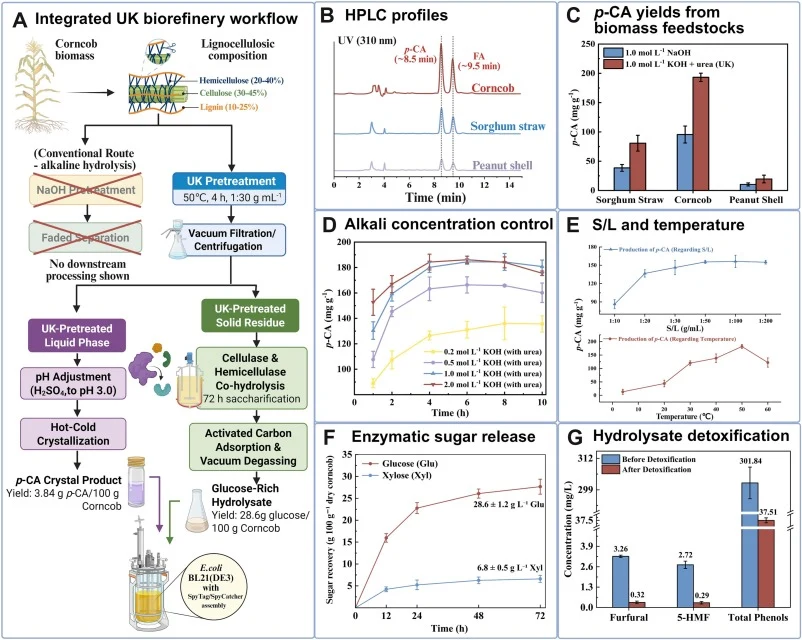
三种原料中均检测到保留时间分别与p-CA和和阿魏酸标准品一致的HPLC峰,分别为8.5和9.5 min(UV 310 nm;图1B)。在选定UK条件下,对玉米芯p-CA得率做了详细定量。1.0 M KOH、KOH:尿素质量比1:1、50 °C、4 h、固液比1:30 g/mL时,得率达每克Klason木质素191.97 ± 7.42 mg p-CA,约为相应1.0 M NaOH处理的兩倍(P < 0.01;图1C)。工艺筛选中,KOH浓度从0.2升至1.0 mol/L可提高p-CA得率,但继续升至2.0 mol/L无额外效果。1.0 mol/L KOH下,得率在4至6 h达到峰值,延长处理则略有下降(图1D)。后续实验因此在50 °C、固液比1:30(g:mL)下进行(图1E)。H2SO4酸化后经热-冷结晶回收p-CA,总回收率82.4 ± 3.6%,纯度至少97%。UK处理还保留了初始纤维素的91.3 ± 1.8%,而NaOH基准仅保留72.5 ± 2.4%(表S5)。
【数据】p-CA得率:191.97 ± 7.42 mg/g Klason木质素;NaOH对照得率:约半数(P < 0.01);KOH浓度:0.2–2.0 mol/L;温度:50 °C;时间:4 h(峰值4–6 h);固液比:1:30 g/mL;回收率:82.4 ± 3.6%;纯度:≥97%;纤维素保留率:UK 91.3 ± 1.8% vs NaOH 72.5 ± 2.4%;HPLC保留时间:p-CA 8.5 min、阿魏酸 9.5 min;检测波长:310 nm
#### 3.1.2 纤维素源糖化液的生产
UK预处理后回收的富纤维素固相经糖化,每100 g干玉米芯产出28.6 ± 1.2 g葡萄糖和6.8 ± 0.5 g木糖(图1F)。活性炭处理与真空脱气去除了87.6 ± 3.2%的总酚类,并将糠醛和5-羟甲基糠醛均降至0.5 mg/L以下(图1G)。因此,UK分级从玉米芯得到两股可用物流。碱性液相提供木质素源p-CA作为芳香前体,富纤维素固相糖化则提供富葡萄糖碳源用于发酵。高纤维素保留率加之酚类与呋喃类抑制物的去除,产出了适合后续白藜芦醇生产的糖化液。不过,该流程用水量大,且需要固相洗涤、酸化、结晶和糖化液调理。放大工艺将要求更低的水与试剂消耗,以及过程化学品的有效回收与再利用。
【数据】葡萄糖:28.6 ± 1.2 g/100 g干玉米芯;木糖:6.8 ± 0.5 g/100 g干玉米芯;总酚去除率:87.6 ± 3.2%;糠醛与5-HMF:均<0.5 mg/L;其余原文未详述
3.2 CtFCS–VvSTS在体外优于经典At4CL–VvSTS模块
纯化的双酶模块清楚显示,作为白藜芦醇生物合成的途径入口酶,CtFCS较At4CL具明显优势。每个模块将VvSTS与At4CL或CtFCS配对(图2A)。
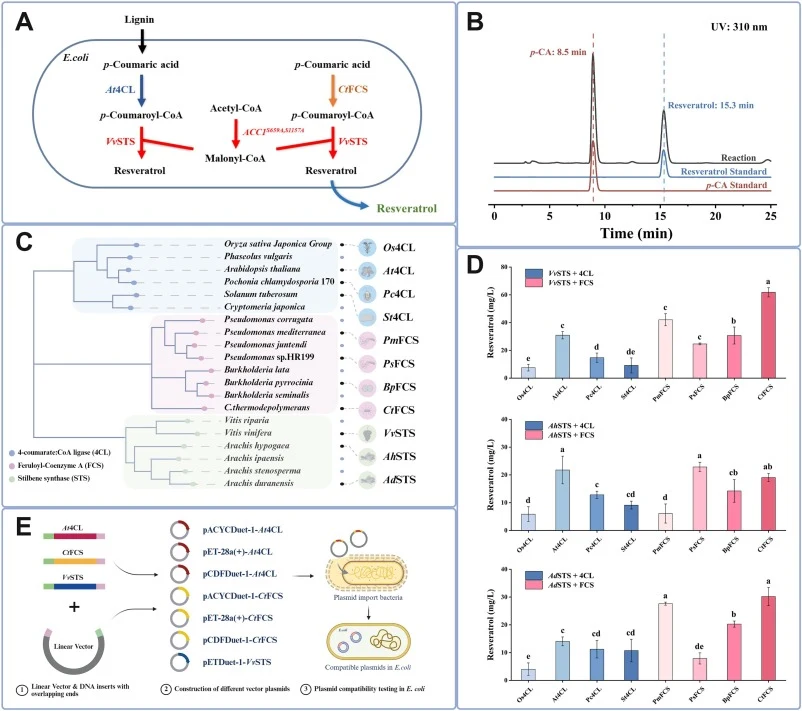
所有酶组合均在相同反应条件下测试。310 nm UV检测的HPLC分析将p-CA与白藜芦醇分别于8.5和15.3 min保留时间分离,确认重构反应中白藜芦醇的生成(图2B)。系统发育分析为酶筛选所用的4CL、FCS和STS候选提供了序列背景(图2C)。终点白藜芦醇产量在受试4CL–STS与FCS–STS组合间存在差异(图2D)。CtFCS–VvSTS滴度最高,达61.83 ± 3.33 mg/L,而相同条件下At4CL–VvSTS为34.8 ± 3.1 mg/L(n = 3个独立蛋白制备批次)。动力学测定呈现相同趋势。CtFCS对p-CA的表观Km为42.3 μM,At4CL为78.5 μM。其表观催化效率也高2.1倍,kcat/Km分别为1.28 × 10⁴和0.61 × 10⁴ M⁻¹ s⁻¹(表S8)。基于这些结果,含pACYCDuet-1-CtFCS与pETDuet-1-VvSTS的双质粒底盘被推进至组装实验(图2E)。初筛与后续U/N/S实验在不同酶浓度下进行。无标签酶对按每酶10 μM筛选,而匹配的U、N、S系统按每酶1 μM测试。因此终点筛选用于选出先导模块,而非为组装实验提供定量基线。在此范围内,终点白藜芦醇生成与动力学测定的一致,将CtFCS-VvSTS的表现与更高效的p-CA活化联系起来。FCS酶天然参与细菌羟基肉桂酸分解代谢,因而与木质素源芳香酸流相容(Frank et al., 2018; Sodré et al., 2019)。高效活化之所以重要,是因为VvSTS需要p-CCoA作为起始底物(Abe & Morita, 2010; Obel & Scheller, 2000)。我们因此以CtFCS-VvSTS为先导模块,保留At4CL-VvSTS作经典对照。这些结果将CtFCS鉴定为与原料相容的途径入口酶,但并未表明p-CA活化是完整途径中唯一的限速步骤。
【数据】白藜芦醇滴度:CtFCS–VvSTS 61.83 ± 3.33 mg/L vs At4CL–VvSTS 34.8 ± 3.1 mg/L(n = 3);CtFCS Km:42.3 μM;At4CL Km:78.5 μM;kcat/Km:CtFCS 1.28 × 10⁴ M⁻¹ s⁻¹、At4CL 0.61 × 10⁴ M⁻¹ s⁻¹(高2.1倍);HPLC保留时间:p-CA 8.5 min、白藜芦醇 15.3 min;检测波长:310 nm;初筛酶浓度:10 μM/酶;U/N/S实验酶浓度:1 μM/酶
3.3 SpyTag/SpyCatcher介导的共价酶组装验证
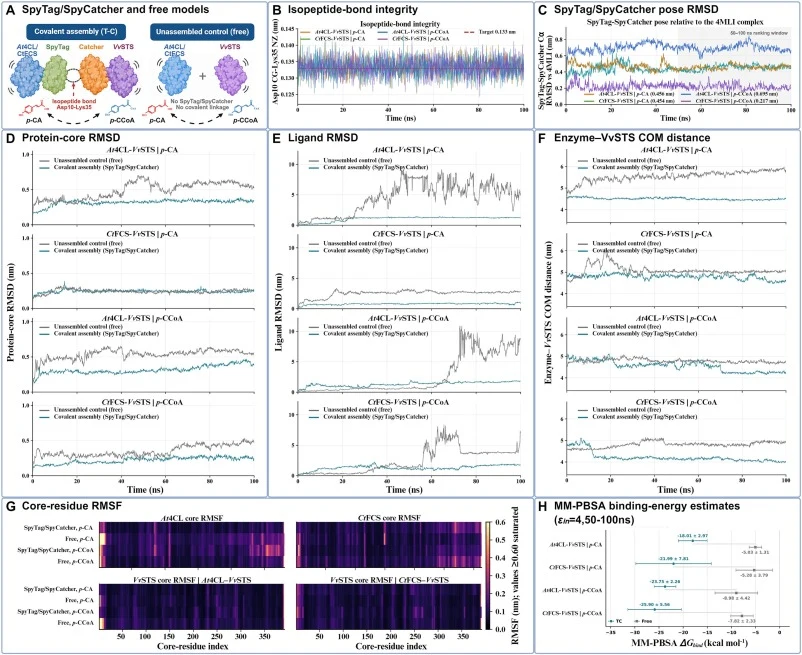
针对At4CL-VvSTS与CtFCS-VvSTS分别构建了载体背景匹配的U、N、S系统(图3A)。
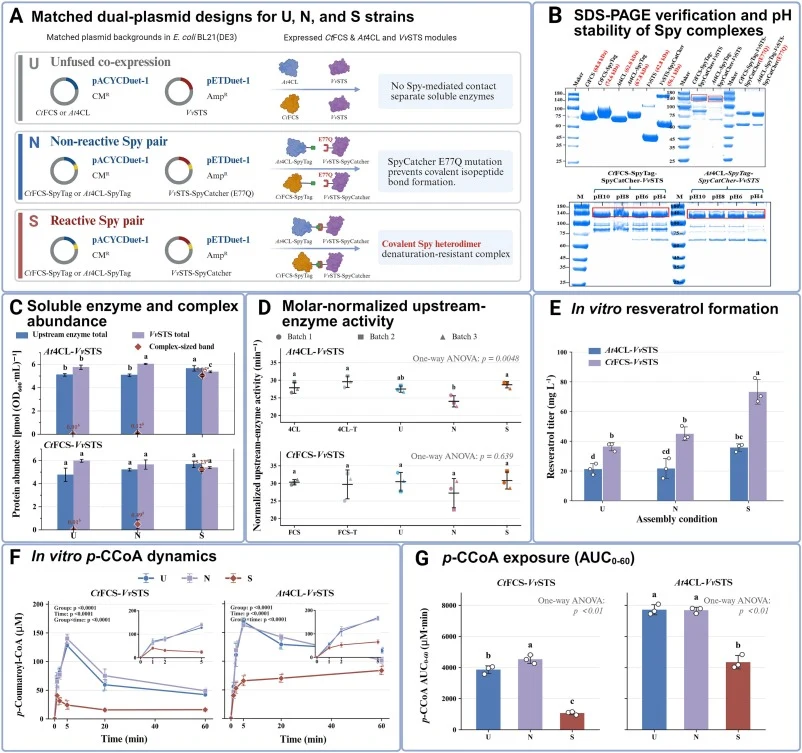
在立即变性的全细胞样品中,反应性At4CL–VvSTS与CtFCS–VvSTS S菌株在组装酶对计算分子量附近显示明显条带(图S8)。在相同取样与变性流程下,匹配的N菌株主要显示对应单个融合蛋白的条带,缺乏同等显著的复合物尺寸物种(图S9)。纯化蛋白经SDS-PAGE显示预期单条带,反应性酶对则形成涉及上游酶与VvSTS的额外复合物尺寸物种(图3B)。组装蛋白在30 °C、pH 4、6、8或10下孵育2 h后,复合物尺寸条带仍可检出。可溶性蛋白丰度并不能解释复合物形成。诱导后48 h采集的生物量归一化提取物中,对可溶性上游酶、VvSTS及复合物尺寸物种的丰度做了定量(图3C、图S10和表S16)。CtFCS-VvSTS的U、N、S菌株间,CtFCS与VvSTS总丰度相近。At4CL-VvSTS系列三组间显示轻微差异。两个系统中,复合物尺寸物种主要在反应性S菌株中检出,而相应信号在U和N对照中明显更低。匹配对照表明这些物种主要经反应性SpyTag/SpyCatcher化学形成。SpyCatcher(E77Q)保留了标签结构但阻止共价键形成,说明仅共表达带标签蛋白并不产生S菌株中的显著条带。CtFCS-VvSTS系列中,复合物形成未伴随任一酶可溶性总丰度的增加。因此结果不能简单用更大的可溶性酶池解释。总体而言,细胞样品支持存在与共价酶组装一致的抗变性物种。该证据验证了复合物形成,但其本身既未表明组装改善途径功能,也未解释改进如何发生。组装的功能效应因此分别从上酶活性、终产物生成和时间分辨的p-CCoA动态三方面评估,以判定共价组织是否改善了双酶级联内的偶联。
【数据】检测时间点:诱导后48 h;孵育稳定性:30 °C、2 h、pH 4/6/8/10;复合物检测:SDS-PAGE与免疫印迹;定量对象:可溶性上游酶、VvSTS、复合物尺寸物种;对照:SpyCatcher(E77Q)非反应性N菌株;其余原文未详述
3.4 SpyTag/SpyCatcher组装改善CtFCS–VvSTS级联性能并减少p-CCoA积累
SpyTag/SpyCatcher融合与共价组装均未提高上游酶的(原文此处节选结束)。
讨论与解读
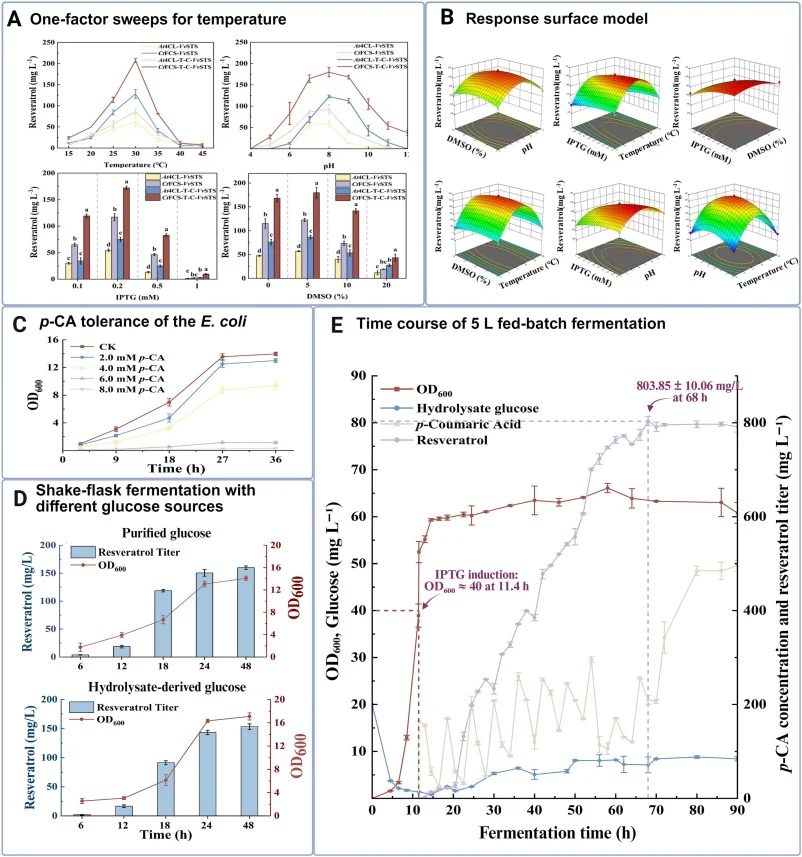
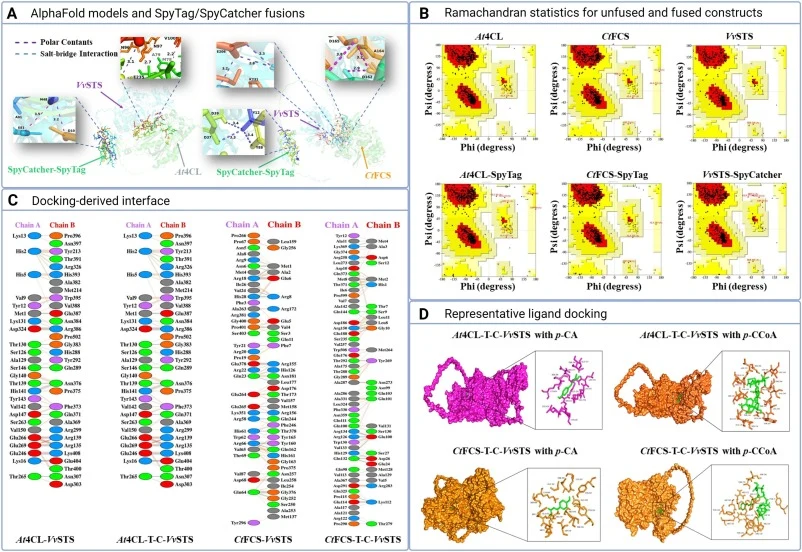
本研究证明,玉米芯分级与途径工程可以协同,把互补的生物质组分转化为白藜芦醇。低温UK分级释放木质素源p-CA,同时保留富纤维素固相以生产富葡萄糖糖化液。以CtFCS替换植物4CL,通过提高p-CA活化效率改善了途径入口。在载体背景匹配的重构级联中,反应性SpyTag/SpyCatcher组装提高了白藜芦醇生成、降低了p-CCoA暴露,而可溶性酶丰度与上游酶活性并未增加——这与连续反应间偶联改善相一致。探索性结构建模与分子动力学提示,酶对组织方式与配体行为的改变可能贡献于级联偶联的改善。以纯化的木质素源p-CA和脱毒纤维素糖化液为底物,工程菌株在5 L补料分批发酵中产出803.85 ± 10.06 mg/L白藜芦醇。分级与酶筛选结果共同识别了影响前体供给与活化的因素;重构级联进一步提示反应性酶组装可改善连续反应间的协调。后续开发应优先考虑无共溶剂p-CA递送、葡萄糖-木糖共利用、碳分配优化、低溶剂产品回收及定量(原文节选至此)。
编译者解读:该工作的亮点不在单点突破,而在"分级—入口酶—空间组装"三层匹配:UK分级同时产出芳香前体与可发酵糖,CtFCS把木质素降解菌的底物习惯移植进异源途径,SpyTag/SpyCatcher则用共价键把连续反应拉近,绕开了代谢工程中常见的"酶量堆叠"思路。局限也明显:p-CA仍需有机溶剂辅助递送、木糖未充分利用、5 L规模到工业放大之间隔着水耗与试剂回收的坎。作为概念验证,它给出了"生物质分级决定途径设计"的范式。
参考来源
期刊:Bioresource Technology, 2026
DOI: 10.1016/j.biortech.2026.136220
DOI: 10.1016/j.biortech.2026.136220