来源:Iterative precursor rebalancing improves phenazine-1-carboxylic acid production in engineered Pseudomonas chlororaphis(Bioresource Technology)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
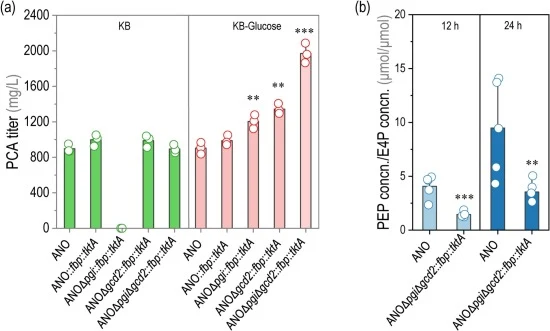
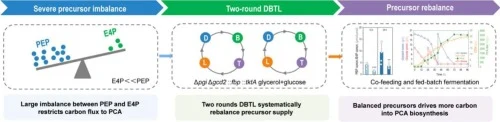
非线性代谢途径中前体供给失衡会限制目标产物通量。莽草酸途径中,胞内磷酸烯醇式丙酮酸(PEP)与赤藓糖-4-磷酸(E4P)浓度通常相差约十倍,成为制约莽草酸衍生物合成的瓶颈。本研究以非致病土壤细菌绿针假单胞菌GP72ANO生产吩嗪-1-羧酸(PCA)为模型,通过两轮设计-构建-测试-学习(DBTL)循环重新平衡多前体供给:第一轮锁定E4P主要来自非氧化磷酸戊糖途径并发现甘油分解代谢中的EDEMP循环,第二轮发现甘油与葡萄糖可共利用并据此建立协同补料策略,使PCA产量翻倍、胞内PEP/E4P比值降低约三倍,最终补料分批发酵PCA滴度达3.6 g/L,较亲本菌株提高4.2倍。
研究背景
代谢工程是构建可持续生物制造工艺的关键技术。最大化目标分子通量是核心难题之一,而涉及多前体的非线性途径设计约束尤为复杂。前体供给是否充足且平衡,直接影响整体代谢状态与碳平衡,进而限制产物得率。莽草酸途径是典型的非线性生化路线,除莽草酸本身外,还支撑色氨酸、5-羟基色氨酸、吩嗪类、褪黑素和肉桂酸等多种有价值化合物的生产。该途径的关键前体为来自糖酵解的PEP和来自非氧化磷酸戊糖途径的E4P,二者经3-脱氧-D-阿拉伯糖-庚酮糖-7-磷酸(DAHP)合酶缩合进入途径。因此,PEP与E4P的平衡供给是高效合成莽草酸衍生物的前提。已有文献中的假单胞菌代谢通量数据显示,流向PEP与E4P的通量相差近一个数量级,E4P可用性有限很可能制约莽草酸途径及由此衍生的PCA合成。
研究方法
2.1 菌株与生长条件
本研究所用全部菌株、质粒、引物及培养基配方见补充材料。大肠杆菌常规培养于溶菌肉汤(LB)中,37 °C。绿针假单胞菌GP72ANO及其衍生菌株培养于KB培养基,或补充20 g/L甘油(MM-Glycerol)、葡萄糖(MM-Glucose)或柠檬酸(MM-Citrate)的基本培养基中,28 °C。需要时,培养基中添加卡那霉素、庆大霉素或氨苄青霉素,浓度分别为50、50和100 μg/mL。异丙基-β-D-1-硫代吡喃半乳糖苷(IPTG)添加浓度为0.1 mM。
【数据】培养基:LB、KB、MM-Glycerol、MM-Glucose、MM-Citrate;温度:大肠杆菌37 °C、假单胞菌28 °C;甘油:20 g/L;抗生素:卡那霉素50 μg/mL、庆大霉素50 μg/mL、氨苄青霉素100 μg/mL;IPTG:0.1 mM
2.2 质粒与工程菌株构建
基因tktA、talA、fbp和fda从菌株GP72ANO基因组DNA中PCR扩增,克隆至载体pBBR1-MCS2的Plac启动子转录控制下,所得质粒通过电穿孔(Gene Pulser系统,Bio-Rad,美国加州赫拉克勒斯)转化进菌株GP72ANO。基因gnd、tal、pgi、zwf、pgl、edd、pgm和hexR采用Liu等(2016)描述的无痕基因组编辑流程敲除。为此,待敲除开放阅读框两侧各约500 bp的上游和下游区域分别经PCR扩增,这些片段随后与经XbaI和HindIII预先酶切的质粒pK18mobsacB通过一步克隆法(InFusion试剂盒,Takara)连接。所得质粒通过与大肠杆菌S17-1 λpir的双亲接合转移进菌株GP72ANO。发生双交换事件的克隆在含15%(w/v)蔗糖的LB平板上筛选。最终,所得突变体经PCR分析和测序验证。
【数据】侧翼同源臂长度:各约500 bp;限制酶:XbaI、HindIII;蔗糖筛选浓度:15%(w/v);克隆试剂盒:InFusion(Takara);接合供体:E. coli S17-1 λpir;验证方法:PCR分析、测序
2.3 摇瓶培养与补料分批发酵
摇瓶培养实验中,菌株GP72ANO及其衍生菌株在28 °C的KB琼脂平板上过夜培养两次。从KB平板挑取单菌落,悬于5 mL新鲜KB液体培养基中,28 °C、180 rpm过夜培养。随后,按1%(v/v)接种量将菌悬液接入含60 mL KB液体培养基的250 mL挡板锥形瓶中。补料分批发酵中,过夜摇瓶培养物按2%(v/v)接种至含6 L KB培养基(补充10 g/L葡萄糖)的10 L生物反应器中。当底物几乎完全耗尽时,向反应器一次性补加葡萄糖和甘油至终浓度分别为10 g/L和20 g/L。消泡剂(Sangon,中国上海)按需自动添加。收集发酵液样品测定细胞密度、PCA产量和NADPH含量。
【数据】接种量:摇瓶1%(v/v)、反应器2%(v/v);摇瓶体积:60 mL/250 mL;反应器:10 L装6 L;KB初始葡萄糖:10 g/L;补料终浓度:葡萄糖10 g/L、甘油20 g/L;摇瓶转速:180 rpm;温度:28 °C
2.4 细胞密度、PCA、糖原、甘油、葡萄糖浓度及NADPH含量定量
细胞培养物经12,000 × g离心2 min收集,用蒸馏水洗涤两次并稀释至适当浓度,随后用紫外-可见分光光度计测定悬液600 nm吸光度(OD600)。取400 μL培养液用HCl酸化至pH = 2.0,与3,600 μL乙酸乙酯混合并剧烈振荡。取约400 μL上层有机相转移至1.5 mL Eppendorf管中蒸干,残留物用乙腈重悬并经0.22 μm滤膜过滤,用于高效液相色谱分析(Agilent 1260,美国加州)测定PCA浓度。检测使用XDB-C18反相柱(4.6 mm × 250 mm,Agilent,美国加州),流动相为乙腈与甲酸水溶液,流速1 mL/min,检测波长254 nm。糖原含量按蒽酮法、依照商品化试剂盒(Solarbio,中国北京)说明测定。甘油和葡萄糖浓度用HPLC分析,采用阳离子交换柱(Bio-Rad HPX-87H,美国加州)和示差折光检测器(RID),以5 mM H2SO4为流动相,流速0.5 mL/min洗脱。细胞于指数期经2,500 × g、4 °C离心10 min收集,悬液稀释至OD600 = 0.6,每样品取300 μL以保证细胞数相当,用pH = 7.4的冰冷磷酸盐缓冲液(PBS)洗涤两次。NADPH含量用Amplite比色NADPH检测试剂盒(Amyjet Scientific,中国武汉)按厂家说明测定。
【数据】离心条件:12,000 × g、2 min(培养物);2,500 × g、4 °C、10 min(细胞收集);酸化pH:2.0;乙酸乙酯:3,600 μL;取样量:400 μL;滤膜:0.22 μm;色谱柱:XDB-C18(4.6 mm × 250 mm);流速:PCA检测1 mL/min、糖检测0.5 mL/min;检测波长:254 nm;H2SO4:5 mM;NADPH测定OD600:0.6;取样体积:300 μL;PBS pH:7.4
2.5 定量实时PCR(qRT-PCR)分析与Zwf酶活测定
于对数生长中期收集细胞样品用于RNA提取。RNA提取和qRT-PCR分析由上海派森诺生物科技股份有限公司完成。Zwf酶活通过测定NADPH生成量确定,葡萄糖-6-磷酸脱氢酶活性按厂家说明用商品化试剂盒(Solarbio,中国北京)测定。
【数据】取样时期:对数生长中期;RNA提取与qRT-PCR:上海派森诺生物科技股份有限公司;Zwf酶活:以NADPH生成量计;试剂盒:Solarbio(中国北京);原文未详述qRT-PCR具体参数
2.6 胞内代谢物取样、淬灭、提取与分析
代谢物按先前报道的流程(Yao et al., 2018)提取。简言之,于对数生长中期取生物学重复样品,用液氮淬灭,胞内代谢物经超声破碎提取。胞内代谢物用Waters I-Class Acquity UPLC(Waters,英国)配Vion IMS QToF(Waters,英国)、SeQuant ZIC-HILIC柱(100 mm × 2.1 mm;Merck,德国)进行高分辨质谱检测。
【数据】取样时期:对数生长中期;淬灭:液氮;提取:超声破碎;色谱柱:SeQuant ZIC-HILIC(100 mm × 2.1 mm);质谱:Vion IMS QToF;原文未详述流动相与梯度参数
2.7 统计分析
全部实验独立进行至少三次;代谢组分析使用五个生物学重复。数据用MS Excel分析,除另有说明外以平均值±标准差(M ± SD)表示。统计显著性用双尾Student t检验评估(p < 0.05,p < 0.01,p < 0.001),如图注所示。
【数据】实验重复:至少三次;代谢组生物学重复:5个;统计方法:双尾Student t检验;显著性阈值:p < 0.05、p < 0.01、p < 0.001;数据表示:M ± SD
研究结果
3.1 在绿针假单胞菌中检验两种增强E4P供给的策略
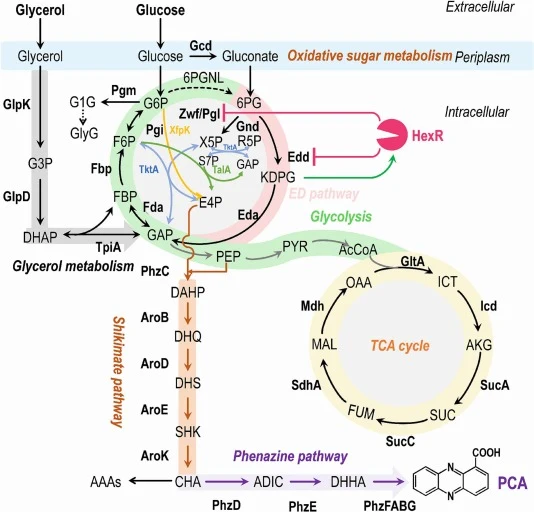
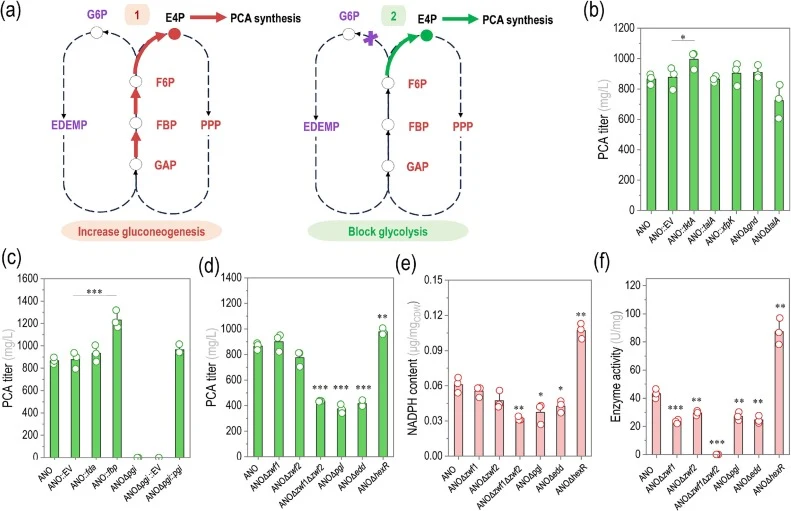
对文献中假单胞菌代谢通量数据的挖掘表明,流向莽草酸途径前体PEP和E4P的通量相差近一个数量级。假单胞菌中E4P可用性有限,很可能制约莽草酸途径,并因此限制由此路线衍生的PCA合成(图1)。转酮醇酶(TktA)和转醛醇酶(TalA)催化非氧化磷酸戊糖途径中的可逆碳重排反应(图1)。尽管这些反应可逆,tktA和talA过表达已在大肠杆菌中用于提高胞内E4P供给、增强莽草酸衍生芳香族化合物的生产。此外,Xfpk磷酸酮醇酶可将果糖-6-磷酸(F6P)转化为乙酰磷酸和E4P。先前研究提示,Xfpk依赖途径可提高碳利用效率、增加芳香族生物合成的前体可用性。因此,推测xfpk过表达可提供一条辅助路线,改善PCA生物合成中的胞内E4P供给与前体平衡。策略1(图2a)基于绿针假单胞菌GP72ANO中E4P生成途径的架构(图1及补充材料)设计,通过过表达tktA、talA和xfpk增强胞内E4P供给,以改善莽草酸途径的前体平衡。在菌株GP72ANO中基于质粒过表达tktA使PCA合成提高15%(p < 0.05;图2b),而过表达talA或xfpk对产物形成基本无影响。随后敲除编码氧化PPP第一个酶的gnd和talA,以评估氧化PPP对E4P供给的贡献。删除gnd或talA对PCA合成(图2b)或细胞生长(补充材料)均无显著影响。这些结果提示E4P主要来源于非氧化PPP。先前研究显示,在铜绿假单胞菌PAO1中经Gnd介导的氧化PPP通量可忽略,在恶臭假单胞菌KT2440中仅占2%。此外,KT2440中gnd失活不影响细胞生长。这种行为可能反映如下事实:氧化PPP中Gnd介导的步骤释放一分子二氧化碳,造成碳损失,可能不利于假单胞菌在严苛环境条件下的长期存活。因此,提高从F6P到E4P的通量似乎是增强E4P供给的有前景策略。设计了两个初步方案以提高从F6P到E4P的途径通量:增加糖异生通量甘油醛-3-磷酸(GAP)→果糖-1,6-二磷酸(FBP)→F6P,以及阻断从F6P到葡萄糖-6-磷酸(G6P)的通量(图2a)。
【数据】tktA过表达:PCA提高15%(p < 0.05);talA、xfpk过表达:对PCA基本无影响;gnd、talA单敲除:对PCA与生长无显著影响;氧化PPP通量占比:铜绿假单胞菌PAO1可忽略、恶臭假单胞菌KT2440为2%;PEP与E4P通量差:近一个数量级
3.2 工程化绿针假单胞菌以实现高E4P供给并检验代谢性能
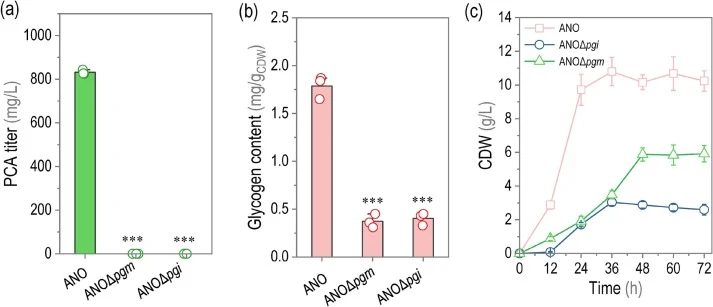
实施策略1涉及过表达fda和fbp(图2a)。fda过表达对细菌生长(补充材料)和PCA合成均无实质性影响,而菌株GP72ANO::fbp的PCA滴度达到1.2 g/L(比携带空载体的菌株GP72ANO高1.4倍,p < 0.05;图2b)。随后在菌株GP72ANO中删除pgi以实施策略2,获得菌株GP72ANOΔpgi。然而,GP72ANOΔpgi培养物的最终生物量浓度为2.7 g/L(比菌株GP72ANO低73%,p < 0.001;补充材料),且该菌株培养物中未检测到PCA(图2c)。一方面,在GP72ANOΔpgi中回补pgi(基于质粒表达)使生物量形成(补充材料)和PCA产量恢复至与GP72ANO培养物相同的水平(图2c)。另一方面,在含2 g/L葡萄糖或葡萄糖酸盐条件下培养GP72ANOΔpgi,以评估消除Pgi可能造成的瓶颈。添加葡萄糖恢复了GP72ANOΔpgi的生长与生产表型,而补充葡萄糖酸盐则不能(补充材料)。结果提示,G6P–6-磷酸葡萄糖酸内酯(6PGNL)–6-磷酸葡萄糖酸(6PG)节点与G6P–葡萄糖-1-磷酸(G1P)节点周围的通量失衡可能是pgi突变体表型的原因。这一结果促使我们分别分析潜在缺陷,如下所述。
【数据】GP72ANO::fbp:PCA滴度1.2 g/L,较空载体对照高1.4倍(p < 0.05);GP72ANOΔpgi:最终生物量2.7 g/L,较GP72ANO低73%(p < 0.001),PCA未检出;回补葡萄糖/葡萄糖酸盐:2 g/L;fda过表达:对生长与PCA无实质性影响
3.3 学习阶段:pgi在细胞代谢、代谢调控与碳通量限制中的作用
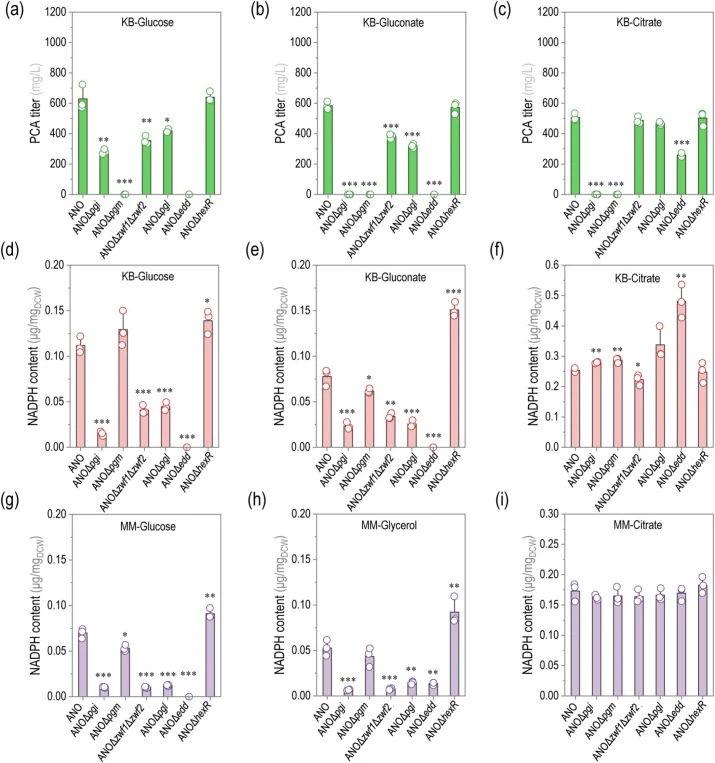
(1)G6P-6PGNL-6PG节点周围的代谢失衡及糖异生条件下的代谢循环运行。NADP+依赖的G6P脱氢酶由zwf编码,催化G6P转化为6PGNL并伴随NADPH生成。敲除zwf基因以探究G6P向6PG转化缺陷带来的表型差异。恶臭假单胞菌和施氏假单胞菌中存在三种Zwf同工酶,而其他假单胞菌(如绿针假单胞菌)显示两种此类同工酶(补充材料)。我们构建了菌株GP72ANOΔzwf1、GP72ANOΔzwf2和GP72ANOΔzwf1Δzwf2(图1b)。单独消除每种Zwf同工酶对表型无影响,而双突变体Δzwf1Δzwf2的细胞密度、PCA滴度和NADPH含量分别降至菌株GP72ANO观察值的66%、50%和53%(补充材料)。这些结果表明Zwf1和Zwf2在缺少其一时可相互补充,且NADPH周转在PCA合成中起重要作用。消除Zwf活性不仅导致NADPH可用性急剧下降,还阻断了后续途径——以6PG起始的Entner-Doudoroff(ED)路线。为研究ED途径在观察到的表型差异中的作用,敲除pgl和edd以分别阻断6PG形成和该路线的第一个分解步骤。菌株GP72ANOΔpgl和GP72ANOΔedd表现出与GP72ANOΔzwf1Δzwf2相似的表型(图2d、e和f)。相同特征促使我们检查该途径中基因的转录调控。发现调控葡萄糖代谢的转录因子HexR在假单胞菌中抑制zwf2、pgl和edd的表达,并被KDPG解除抑制。GP72ANOΔhexR培养物的生长和PCA滴度略有提高(补充材料及图2d),而NADPH含量和体外Zwf酶活分别比GP72ANO提高75%和102%(图2e和2f)。此外,删除hexR使zwf、edd和eda的mRNA水平分别提高至GP72ANO的3倍、2倍和1.4倍(补充材料)。删除pgl或edd阻断KDPG合成——因此HexR对zwf的抑制无法解除,最终导致NADPH周转下降,限制了PCA合成。这些结果提示,甘油培养的绿针假单胞菌运行一个EDEMP循环,由糖异生(涉及Embden-Meyerhof-Parnas途径元件)与氧化PP和ED途径组合形成(图1)。当KDPG合成时,HexR依赖的对zwf、pgl和edd的抑制被解除,EDEMP循环在将磷酸丙糖回收为磷酸己糖的同时生成NADPH。该循环最初在恶臭假单胞菌葡萄糖分解代谢中被正式描述。恶臭假单胞菌缺乏糖酵解酶6-磷酸果糖-1-激酶(Pfk),无法处理葡萄糖……
【数据】Δzwf1Δzwf2:细胞密度66%、PCA滴度50%、NADPH含量53%(相对GP72ANO);ΔhexR:NADPH含量+75%、体外Zwf酶活+102%;hexR删除后mRNA水平:zwf 3倍、edd 2倍、eda 1.4倍;Zwf同工酶数:恶臭假单胞菌/施氏假单胞菌3种、绿针假单胞菌2种;pgl/edd敲除:表型与Δzwf1Δzwf2相似
3.4 第二轮DBTL:甘油-葡萄糖共利用与协同补料
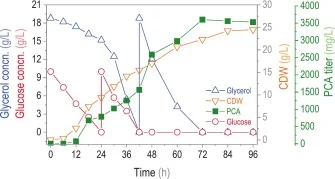
(基于摘要与图6信息)第二轮DBTL循环表明,绿针假单胞菌可共利用甘油和葡萄糖,从而建立协同补料策略。该策略使PCA产量翻倍,并使胞内PEP/E4P比值降低约三倍,证实前体平衡得到改善。在甘油与葡萄糖共补料策略下,菌株ANOΔpgiΔgcd2::fbp::tktA的葡萄糖在24 h耗尽,随即向培养基补加等量葡萄糖;同样,甘油在40 h耗尽并补加。
【数据】共补料策略:PCA产量翻倍、胞内PEP/E4P比值降低约三倍;葡萄糖耗尽时间:24 h;甘油耗尽时间:40 h;补料方式:耗尽后补加等量底物;菌株:ANOΔpgiΔgcd2::fbp::tktA
3.5 补料分批发酵
单一补料分批发酵策略使PCA滴度进一步提高至3.6 g/L,较亲本菌株提高4.2倍。
【数据】PCA滴度:3.6 g/L;较亲本菌株提高:4.2倍;发酵方式:补料分批
讨论与解读
本研究实施两轮DBTL框架,在保持NADPH生成的同时重新平衡PEP与E4P通量,以增强绿针假单胞菌的PCA生产。第一轮DBTL显示E4P供给主要来自非氧化磷酸戊糖途径,并鉴定出与甘油代谢相关的EDEMP循环。第二轮DBTL证明葡萄糖与甘油可同时利用,据此建立的协同补料策略使PCA产量翻倍。代谢组分析进一步证实工程菌株前体平衡得到改善。该策略虽在PCA生物合成中得以验证,但可为其他非线性生物合成途径的前体平衡与芳香族化合物生产提供有用框架。
编译者解读:该研究的亮点在于把"前体比例"当作可迭代优化的工程变量,而非一次性敲基因。两轮DBTL先诊断E4P来源与EDEMP循环,再用甘油-葡萄糖共补料绕开单底物代谢的刚性约束,最终4.2倍提升靠的是底物供给节奏而非酶过表达堆叠。局限在于模型仍限于PCA,PEP/E4P比值三倍改善与产量翻倍之间的定量因果关系尚未完全解耦,且补料策略在放大到工业规模时的混合与底物梯度问题原文未涉及。
参考来源
期刊:Bioresource Technology, 2026
DOI: 10.1016/j.biortech.2026.135202
DOI: 10.1016/j.biortech.2026.135202