来源:Nisin Against Bacillus cereus Spores: Activity, Characterization, and Beef Application(Journal of Food Protection)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
耐热芽孢菌是即食食品腐败的主要元凶。本研究从胀袋熟牛肉中分离鉴定腐败菌,锁定蜡样芽孢杆菌为对象,系统评估乳酸链球菌素(nisin)对芽孢萌发与出芽的阶段特异性作用。研究发现 nisin 对蜡样芽孢杆菌芽孢的 MIC 为 400 µg/mL,低浓度反而促进萌发、却显著阻断后续出芽,并伴随膜完整性破坏、氧化应激与能量代谢紊乱;转录组揭示 3049 个差异基因,熟牛肉实验证实其可延长货架期。
研究背景
耐热芽孢杆菌是即食(RTE)食品腐败的主要来源,其芽孢能耐受高温、低 pH、高压等加工条件,一旦环境适宜便萌发为代谢活跃的营养细胞,造成食品变质。蜡样芽孢杆菌既是常见的食源性病原菌,也会产生肠毒素或呕吐毒素 cereulide,引发食物中毒。中国一项调查显示,牛肉中蜡样芽孢杆菌的检出率为 22.58%,加工肉制品污染率(41.94%)明显高于生肉(24.58%)。因此,阻断芽孢向营养细胞转变是控制此类污染的关键。
Nisin 是 GRAS 级抗菌肽,对芽孢菌有较强活性,但它在芽孢萌发与出芽各阶段的具体作用尚不清楚。本研究从胀袋熟牛肉中分离耐热腐败菌,以蜡样芽孢杆菌为模型,结合表型与转录组手段解析 nisin 的抑芽孢机制,并在熟牛肉中验证其保鲜效果。
研究方法
试剂与菌株。 Nisin(≥1000 IU/mg)购自上海阿拉丁生化科技股份有限公司。其余化学试剂均为分析纯。蜡样芽孢杆菌 ATCC14579 购自美国典型培养物保藏中心(ATCC)。
【数据】试剂:nisin(≥1000 IU/mg,阿拉丁);菌株:B. cereus ATCC14579;其余试剂:分析纯;原文未详述其他参数
从腐败熟牛肉中分离细菌。 从西安某超市采集两包已腐败胀袋的牛肉。取 25 g 腐败牛肉样品,加入 225 mL 无菌 0.85%(w/v)生理盐水,用振荡均质器均质 15 min。均质悬液进行梯度稀释,取适当体积涂布于平板计数琼脂(PCA)。37 ℃ 培养 24 h 后记录菌落数。挑选形态不同的菌落,在 PCA 平板上反复划线纯化,直至菌落特征与细菌染色形态一致。分离菌株于 −80 ℃、50% 甘油中保存。
【数据】样品:腐败胀袋熟牛肉 25 g;稀释液:225 mL 无菌 0.85% 生理盐水;均质时间:15 min;培养基:PCA;温度:37 ℃;时间:24 h;保存:50% 甘油、−80 ℃
分离菌的分子鉴定。 用商品化细菌基因组 DNA 提取试剂盒(湖南艾科瑞生物,长沙)提取分离菌株基因组 DNA。以通用引物 27F(5′-AGAGAGTTTGATCMTGGCTCAG-3′)和 1492R(5′-GGTTACCTTGTTACGACTT-3′)通过 PCR 扩增全长 16S rDNA 基因,方法参照前人报道(Deng et al., 2021)。纯化后的 PCR 扩增片段送杨凌奥科进行 16S rRNA 基因 Sanger 测序。所得序列用 NCBI 数据库比对,并用 MEGA 11 基于邻接法构建系统发育树(Tan et al., 2025)。
【数据】引物:27F/1492R;扩增目标:全长 16S rDNA;测序:Sanger;比对:NCBI;建树软件:MEGA 11;算法:邻接法;原文未详述 PCR 体系与程序
致病性分析。 小鼠感染实验经西北农林科技大学动物伦理委员会批准(项目号 IAcuc 2024-1004),按相关动物福利指南执行。六周龄 Balb/c 小鼠随机分组,每组 6 只。分离菌株活化后,用无菌 PBS 调整浓度至 10⁸ CFU/mL。每只小鼠按每 10 g 体重腹腔注射 100 µL 菌悬液,24 h 内每 2 h 连续观察临床状况。
【数据】小鼠:六周龄 Balb/c,每组 6 只;菌浓度:10⁸ CFU/mL;接种:腹腔注射 100 µL/10 g 体重;观察:每 2 h、持续 24 h;伦理批号:IAcuc 2024-1004
腐败酶产生与溶血活性评价。 分离菌的腐败酶产生能力参照 Wang et al.(2021)方案并稍作修改。蛋白、脂质和淀粉酶水解分别用添加 10% 脱脂乳的 PCA 平板、三丁酸甘油酯琼脂平板和淀粉水解培养基平板(含胰蛋白胨 10 g/L、酵母提取物 10 g/L、可溶性淀粉 20 g/L、琼脂 15 g/L)测定。37 ℃ 培养 24 h 后,以淀粉水解透明圈直径与菌落直径之比(HC 值)作为腐败酶活性指标。溶血活性用添加 6% 脱脂绵羊血的 TSA 平板评价。
【数据】蛋白水解:PCA + 10% 脱脂乳;脂解:三丁酸甘油酯琼脂;淀粉水解培养基:胰蛋白胨 10 g/L、酵母提取物 10 g/L、可溶性淀粉 20 g/L、琼脂 15 g/L;温度:37 ℃;时间:24 h;溶血:TSA + 6% 脱脂绵羊血;指标:HC 值
分离菌营养细胞与芽孢的耐热性比较。 由"从腐败熟牛肉中分离细菌"一节结果可知,6 株分离菌均鉴定为芽孢杆菌属。熟牛肉加工通常涉及热处理,故比较分离菌营养细胞与芽孢的耐热性,以确定此类食品微生物控制的关键靶标。用无菌 PBS 将菌悬液调整至 10⁷ CFU/mL,随后于 100 ℃ 分别热处理 10、20、30 和 60 min。热处理后立即转入冰水浴快速冷却至室温,再梯度稀释涂布 PCA 计数。
【数据】菌浓度:10⁷ CFU/mL;温度:100 ℃;时间:10、20、30、60 min;冷却:冰水浴;计数:PCA 涂布
MIC 与 SIC 测定。 采用肉汤微量稀释法并稍作修改,测定 nisin 对蜡样芽孢杆菌 ATCC 14579 及分离菌株(1-1、1-2、1-3、2-1、2-2、2-3)芽孢与营养细胞的最低抑菌浓度(MIC)(Wan et al., 2025)。同时每小时测定不同浓度 nisin(1/64 MIC–2 MIC)处理菌悬液的 OD600,最终绘制生长曲线。
【数据】方法:肉汤微量稀释法;nisin 浓度范围:1/64 MIC–2 MIC;检测:OD600 每小时测定;菌株:ATCC 14579 及 1-1、1-2、1-3、2-1、2-2、2-3
Nisin 处理芽孢的生长。 参照 Cai et al.(2019)方案稍作调整评估 nisin 暴露后芽孢的生长。简言之,将蜡样芽孢杆菌 ATCC 14579 芽孢浓度调整至 LB 肉汤中 10⁶ CFU/mL,分别添加 0、1/2 MIC、1 MIC 和 2 MIC 的 nisin,37 ℃ 培养 24 h。于 0、2、4、6、12 和 24 h 取样。为区分营养细胞与芽孢,一半样品梯度稀释涂布进行总菌落计数;另一半于 80 ℃ 水浴 10 min 以杀灭营养细胞,随后梯度稀释涂布计数芽孢。
【数据】芽孢浓度:10⁶ CFU/mL;培养基:LB 肉汤;nisin:0、1/2 MIC、1 MIC、2 MIC;温度:37 ℃;时间:24 h;取样点:0、2、4、6、12、24 h;芽孢计数热处理:80 ℃、10 min
吸光度变化对蜡样芽孢杆菌芽孢萌发与出芽的影响。 参照 Fan et al.(2019)稍作修改评估芽孢萌发与出芽。将芽孢悬液调整至 LB 肉汤中终浓度 10⁶ CFU/mL,分别添加 1/4、1/2、1、2 MIC 的 nisin。37 ℃ 培养,每 10 min 用多功能酶标仪(Spark,奥地利)测定各培养物吸光度。对每份样品,以各时间点吸光度除以 t = 0 min 的初始 OD600 计算萌发率。
【数据】芽孢终浓度:10⁶ CFU/mL;培养基:LB 肉汤;nisin:1/4、1/2、1、2 MIC;温度:37 ℃;检测间隔:每 10 min;仪器:Spark 多功能酶标仪;萌发率:各时间点吸光度/初始 OD600
芽孢染色。 不同浓度 nisin 处理 2 h 后,收集菌体,13,800 g 离心 5 min,PBS 洗涤 3 次。随后用芽孢染色试剂盒(环凯,广州,029020)按说明书进行孔雀绿加热染色与番红复染。染色样品于光学显微镜(Leica Microsystems,韦茨拉尔,德国)下观察。
【数据】处理时间:2 h;离心:13,800 g、5 min;洗涤:PBS 3 次;试剂盒:环凯 029020;染色:孔雀绿加热染色 + 番红复染;显微镜:Leica 光学显微镜
扫描电镜(SEM)观察细胞形态。 参照前人方法适当修改考察蜡样芽孢杆菌形态特征(Bai et al., 2022)。接"芽孢染色"一节后,菌体用 PBS 洗涤 3 次,2.5% 戊二醛 4 ℃ 固定过夜。固定后经梯度乙醇(10%、30%、50%、70%、80%、95%、100%,v/v)脱水,每级 15 min。干燥后喷金,于 5 kV 加速电压下 SEM 采集图像。
【数据】固定:2.5% 戊二醛、4 ℃、过夜;脱水:10%–100% 乙醇梯度、每级 15 min;喷金;SEM 加速电压:5 kV
Nisin 处理后蜡样芽孢杆菌芽孢核酸与蛋白释放。 参照 Zhu et al.(2024)方案适当修改测定芽孢核酸与蛋白释放。蜡样芽孢杆菌芽孢于 LB 肉汤中用不同剂量 nisin(0(对照)、1/2 MIC、1 MIC、2 MIC)处理 1 h。4 ℃、13,800 g 离心 5 min 收集上清,用微量分光光度计(K5800C,凯奥,北京)测定各组上清核酸与蛋白含量。
【数据】培养基:LB 肉汤;nisin:0、1/2 MIC、1 MIC、2 MIC;处理时间:1 h;离心:4 ℃、13,800 g、5 min;仪器:K5800C 微量分光光度计
NPN 摄取。 参照前人方法稍作修改测定 NPN 摄取(Xu et al., 2017)。简言之,按 2.5.1 处理蜡样芽孢杆菌芽孢后,4 ℃、13,800 g 离心 5 min 收集菌体,洗涤 2 次,重悬于 PBS。取 200(原文此处截断)
【数据】离心:4 ℃、13,800 g、5 min;洗涤:PBS 2 次;重悬:PBS;原文在此处截断,后续参数未详述
研究结果
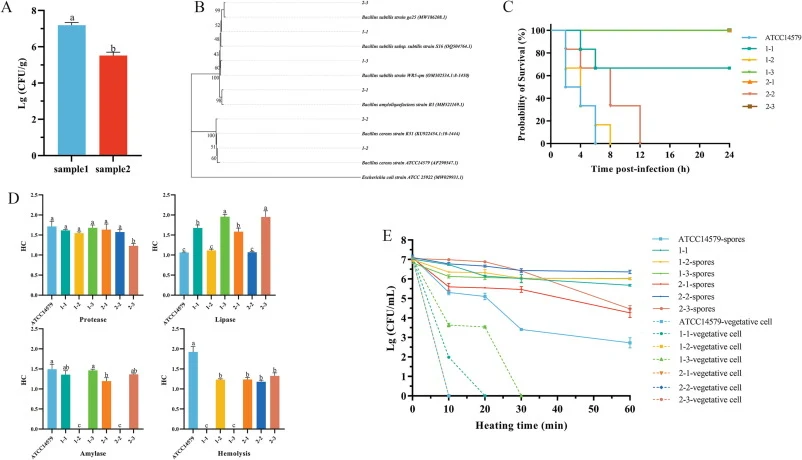
菌株分离与鉴定。 对腐败即食牛肉样品进行菌落计数与细菌分离。如图 1A 所示,两份样品的总活菌数(TVBCs)分别为 7.19 和 5.52 log CFU/g。从每个样品平板上随机挑选 3 个形态特征不同的菌落进行纯培养。分离菌株的 16S rDNA 测序结果见图 1B。1-1、1-3 和 2-3 与枯草芽孢杆菌聚为一支;2-1 与解淀粉芽孢杆菌聚为一支;1-2 和 2-2 与蜡样芽孢杆菌聚为一支。
【数据】样品总活菌数:7.19 和 5.52 log CFU/g;每板挑取菌落:3 个;鉴定:1-1、1-3、2-3 为 B. subtilis,2-1 为 B. amyloliquefaciens,1-2、2-2 为 B. cereus
分离菌致病性、产腐败酶能力与耐热性评价。 图 1C 显示分离菌的致病性特征。与蜡样芽孢杆菌聚为一支的菌株 1-1 和 1-2 在小鼠中的致病性显著强于本研究中其他芽孢杆菌。结果显示,所有受试芽孢杆菌初期均产生明显的透明圈,表明具有蛋白水解与脂解活性。1-2 和 2-2 菌株未形成淀粉水解透明圈,但在血琼脂平板上表现出溶血活性(图 1D 和图 S1)。图 1E 显示分离菌营养细胞与芽孢的耐热性比较。在 100 ℃ 加热环境下,分离菌 1-1 和 1-3 的营养细胞分别在 20 min 和 30 min 降至检测限以下。相比之下,芽孢即使加热 60 min 仍显示大量存活菌。
【数据】温度:100 ℃;营养细胞降至检测限时间:1-1 为 20 min、1-3 为 30 min;芽孢:60 min 后仍大量存活;溶血:1-2、2-2 阳性;淀粉水解:1-2、2-2 阴性
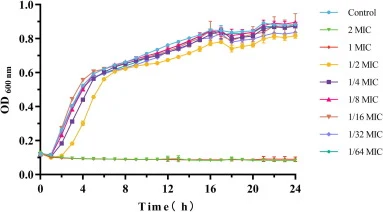
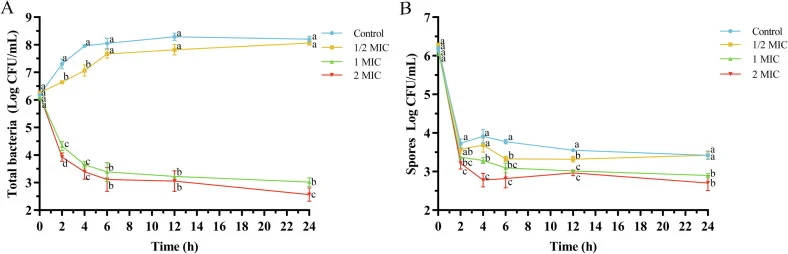
Nisin 对芽孢杆菌芽孢的抑制作用。 Nisin 对蜡样芽孢杆菌 ATCC 14579 及另外 6 株分离菌营养细胞和芽孢的 MIC 为 200 µg/mL 至 400 µg/mL(表 S1)。选取蜡样芽孢杆菌 ATCC 14579 芽孢作为后续机制研究的模型。用一系列 nisin 浓度绘制生长曲线以评价对芽孢生长的影响。如图 2 所示,1 MIC 和 2 MIC 的 nisin 完全抑制 LB 肉汤中芽孢生长,而低于 1/8 MIC 的浓度与对照组相比无明显抑制作用。据此,低于 1/8 MIC 的浓度定义为亚抑菌浓度(SICs)。进一步用时间-杀菌曲线评价抑制作用。如图 3A 所示,1/2 MIC 的 nisin 降低总活菌数的生长速率,但 6 h 后与未处理组相比无显著差异。然而,1 MIC 和 2 MIC 的总菌落数分别仅为 3.09 log CFU/mL 和 2.82 log CFU/mL,显著低于对照组的 8.05 log CFU/mL(P < 0.05)。芽孢计数数据(图 3B)表明,1 MIC 和 2 MIC 的 nisin 处理 2 h 后较对照组显著降低(P < 0.05)。
【数据】MIC 范围:200–400 µg/mL;完全抑制浓度:1 MIC、2 MIC;无显著抑制:<1/8 MIC(定义为 SIC);6 h 总菌数:1 MIC 为 3.09 log CFU/mL、2 MIC 为 2.82 log CFU/mL、对照 8.05 log CFU/mL(P < 0.05);芽孢计数:1 MIC、2 MIC 处理 2 h 后显著低于对照(P < 0.05)
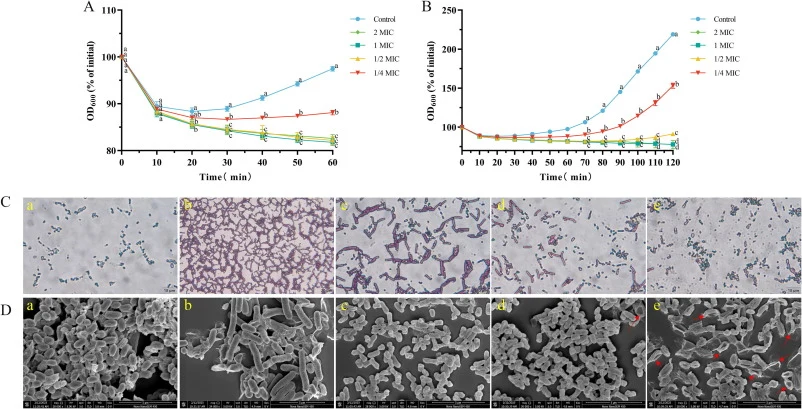
Nisin 促进芽孢萌发但抑制后续出芽。 为确定 nisin 是否影响芽孢萌发与出芽,测定了芽孢悬液吸光度变化并进行显微观察。通过监测 OD600 相对于菌悬液初始光密度的下降,评价不同浓度 nisin(0、1/4、1/2、1、2 MIC)对芽孢萌发与出芽的影响。如图 4A 所示,nisin 处理以剂量依赖方式增强初始 20 min 内 OD600 的下降,1 MIC 和 2 MIC 组的吸光度下降显著大于对照组(P < 0.05),表明 nisin 促进芽孢萌发。20 min 后,对照组吸光度开始上升,反映出芽开始。60 min 后,1/2 MIC 组吸光度开始上升,而 1 MIC 和 2 MIC 组无上升趋势(图 4B),表明高浓度 nisin 阻断了后续出芽。除吸光度测定外,还用光学显微镜和 SEM 直观评估蜡样芽孢杆菌芽孢的萌发状态。对照组中,芽孢染成红色,培养 2 h 后萌发为表面光滑的规则杆状细胞(图 4C、D)。随着 nisin 浓度升高,红色杆状细胞比例逐渐下降,SEM 显示芽孢结构皱缩、破裂,2 MIC 组最为明显。综合来看,萌发初期 OD600 下降加快、出芽期 OD600 上升减弱,以及显微镜下杆状细胞比例降低,共同表明 nisin 促进芽孢萌发但以剂量依赖方式显著抑制后续出芽,在 1 MIC 浓度下实现完全出芽抑制。
【数据】nisin 浓度:0、1/4、1/2、1、2 MIC;萌发期:初始 20 min 内 OD600 下降呈剂量依赖,1 MIC、2 MIC 显著大于对照(P < 0.05);对照吸光度上升起点:20 min 后;1/2 MIC 上升起点:60 min 后;1 MIC、2 MIC:无上升趋势;显微观察:2 h;完全出芽抑制浓度:1 MIC
Nisin 破坏芽孢萌发与出芽过程中的内膜完整性。 为确定 nisin 是否通过膜破坏发挥抗菌活性,评估了多项膜完整性指标,包括胞内核酸与蛋白泄漏、NPN 摄取、膜电位和 PI 染色。首先通过定量胞内核酸与蛋白泄漏评价 nisin 对内膜通透性的影响。如图 5A 所示,胞外核酸浓度随 nisin 浓度升高逐渐增加。类似地,胞外蛋白浓度呈剂量依赖增加(图 5B)。NPN 摄取进一步反映内膜通透性变化。图 5C 显示 nisin 处理后细胞的 NPN 摄取。NPN 摄取随 nisin 浓度升高逐渐增加,但 1 MIC 与 2 MIC 处理组间无显著差异(P > 0.05)。除通透性变化外,还测定了细胞膜电位。如图 5D 所示,与对照组相比,nisin 处理后胞内荧光强度显著增加(P < 0.05),表明细胞膜发生去极化。此外,2 MIC 的荧光强度显著高于 1 MIC(P < 0.05)。进一步用 PI 染色在单细胞水平验证膜损伤。与对照组相比,1 MIC 和 2 MIC 的 nisin 处理组红色荧光显著增强(图 5E)。胞内核酸与蛋白泄漏增加、NPN 摄取增强、膜去极化及 PI 染色阳性共同表明,nisin 处理破坏芽孢萌发与出芽过程中细胞内膜的完整性与通透性,导致膜功能丧失。
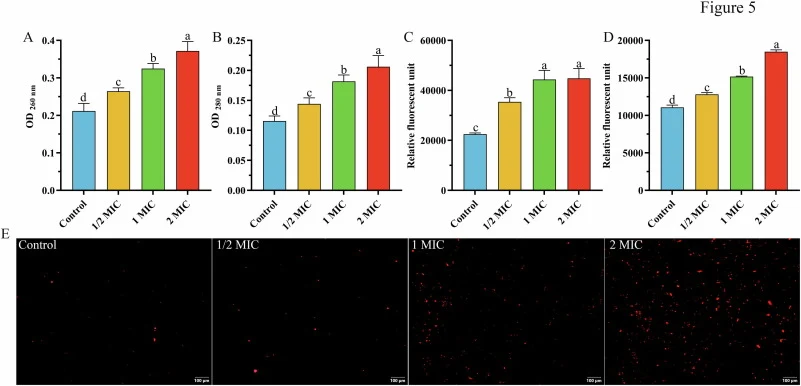
【数据】胞外核酸:随 nisin 浓度升高而增加;胞外蛋白:剂量依赖增加;NPN 摄取:随浓度升高增加,1 MIC 与 2 MIC 间无显著差异(P > 0.05);膜电位:nisin 处理后胞内荧光显著增强(P < 0.05),2 MIC 显著高于 1 MIC(P < 0.05);PI 染色:1 MIC、2 MIC 红色荧光显著增强
Nisin 在芽孢萌发与出芽过程中诱导氧化应激与能量耗竭。 为进一步探究 nisin 诱导膜损伤的下游生理后果,测定了芽孢萌发与出芽过程中的胞内 ROS 水平与 ATP 浓度。图 6A 显示 nisin 处理后蜡样芽孢杆菌的胞内 ROS 水平。对照组 ROS 水平持续较低。Nisin 处理后,胞内 ROS 水平以剂量依赖方式显著升高(P < 0.05),表明 nisin 诱导细胞氧化应激。除氧化应激外,nisin 处理显著影响胞内能量状态。如图 6B 所示,对照组胞内 ATP 浓度为 1.54 ± 0.09 μM。1/2 MIC nisin 处理使胞内 ATP 浓度显著降低(P < 0.05)至 0.41 ± 0.08 μM。此外,ATP 泄(原文此处截断)
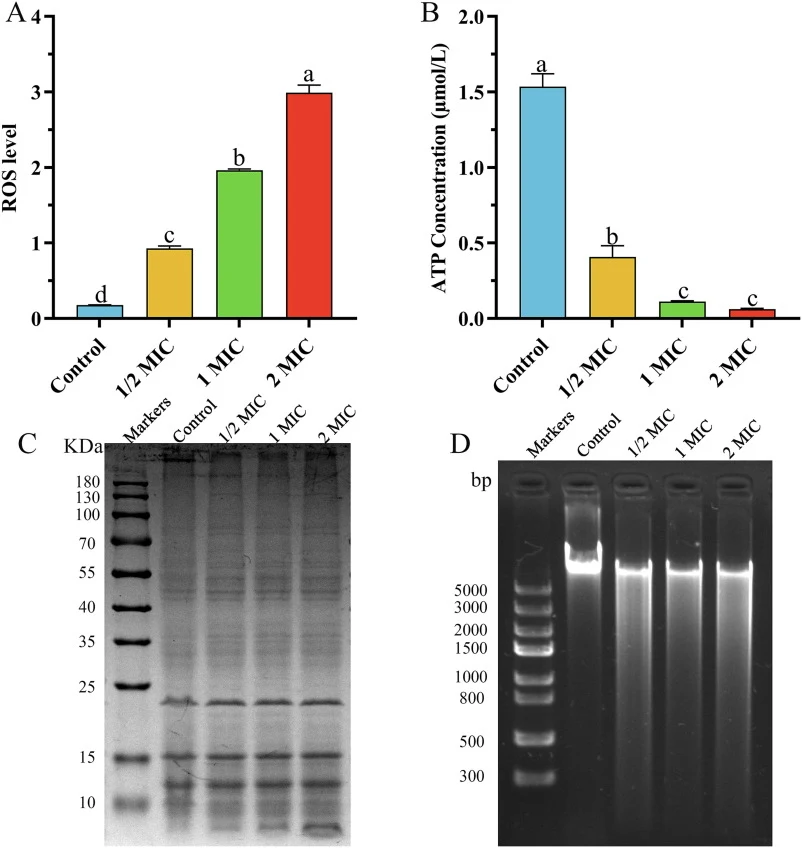
【数据】ROS:随 nisin 浓度升高显著增加(P < 0.05);对照胞内 ATP:1.54 ± 0.09 μM;1/2 MIC 处理胞内 ATP:0.41 ± 0.08 μM(P < 0.05);原文在此处截断,后续数据未详述
讨论与解读
芽孢杆菌属可形成高度耐热的内生芽孢,能存活于食品加工过程,对熟制食品构成潜在威胁。蜡样芽孢杆菌作为常见食源性病原菌,既引起食品腐败,又产生肠毒素或呕吐毒素 cereulide 导致食物中毒。中国调查显示牛肉中蜡样芽孢杆菌流行率 22.58%,加工肉制品污染率(41.94%)明显高于生肉(24.58%)。本研究从熟牛肉中分离的菌株全部属于芽孢杆菌属,均产蛋白酶,其中蜡样芽孢杆菌致病性更强。芽孢杆菌是巴氏杀菌乳和熟肉制品中的主要腐败菌之一,其芽孢能耐受高温、低 pH、高压等不利条件,一旦条件适宜便萌发为代谢活跃的营养细胞。因此,抑制芽孢向营养细胞转变的策略至关重要。近年来消费者愈发青睐天然抗菌剂,本研究据此评估了 nisin 的作用。
本研究的一个关键发现是 nisin 的阶段特异性:低浓度促进萌发、高浓度阻断出芽。这一"先促后阻"的模式提示 nisin 的抑菌窗口恰好落在萌发启动之后、出芽完成之前,膜损伤、ROS 升高与 ATP 耗竭构成一条连贯的损伤链条。转录组层面 3049 个差异基因及能量代谢、氨基酸生物合成通路的扰动,与表型数据相互印证。熟牛肉实验进一步表明 nisin 能抑制出芽、延缓腐败,具备实际应用潜力。
编译者解读。 从合成生物学视角看,该研究的价值在于把 nisin 的作用节点精确定位到"萌发—出芽"转换期,这为设计芽孢特异的杀灭模块提供了时间窗依据。局限也很明显:MIC 高达 400 µg/mL,远高于食品中常规添加水平,直接套用成本与感官风险都需评估;机制数据多来自群体水平,单细胞异质性未展开。未来或可将 nisin 与萌发诱导剂联用,走"先催后杀"的合成逻辑,以降低有效剂量。
参考来源
期刊:Journal of Food Protection, 2026
DOI: 10.1016/j.jfp.2026.100927
DOI: 10.1016/j.jfp.2026.100927