来源:Mechanism-guided engineering of production-level-tailored biosensors for high-throughput screening of L-serine producers(Bioresource Technology)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
转录因子类生物传感器的传感性能不足,常限制其在微生物菌株工程中的应用。本研究以LysR型调控因子SerR为模型,建立了一套机制导向的策略,将生物传感器性能定制到不同的L-丝氨酸生产水平。野生型传感器检测限为71.61 mM、动态范围仅2.4倍;经机制解析与理性改造获得两个变体:低滴度筛选版E223V将检测限降至29.82 mM,高滴度分选版N4N0将动态范围扩大至146.2倍。两类传感器分别用于大肠杆菌与谷氨酸棒杆菌的FACS分选,单轮ARTP诱变即获得滴度提高1.7倍至4.15 g/L的菌株,适应性进化后单轮分选使滴度从40.10 g/L提高22%。
研究背景
在合成生物学领域,转录因子类生物传感器(TFBs)已成为高通量筛选(HTS)与微生物细胞工厂适应性进化不可或缺的工具,可高效优化代谢物产量。在各类传感器架构中,采用LysR型转录调控因子(LTTRs)的传感器因天然模块化特性和该蛋白家族的广泛多样性而颇具前景。LTTRs是细菌转录调控因子中最大的家族之一,为合成线路设计提供了丰富资源,已在适应性进化、代谢物动态监测和HTS中得到应用。
然而,天然LTTR类生物传感器——包括源自谷氨酸棒杆菌(C. glutamicum)SerR的L-丝氨酸传感器——常表现出检测范围窄、灵敏度欠佳、响应动力学慢等限制,阻碍实际应用。已有多种工程策略被开发以突破这些约束,其中一类策略聚焦于改造转录因子(TF)本身的特性,尤其是配体结合结构域。本研究以SerR为模型,先解析其调控机制,再据此定制传感器性能,使之匹配不同生产水平的筛选需求。
研究方法
2.1 通用材料
酶、试剂盒和引物分别购自Vazyme、BSGZ、ThermoFisher和Exsyn Bio。DNA/质粒试剂盒及化学品购自YEASEN、Merck和Sangon。质粒由Talen Bio完成测序。
【数据】试剂供应商:Vazyme、BSGZ、ThermoFisher、Exsyn Bio、YEASEN、Merck、Sangon;测序服务商:Talen Bio;原文未详述具体用量与反应条件
2.2 质粒构建
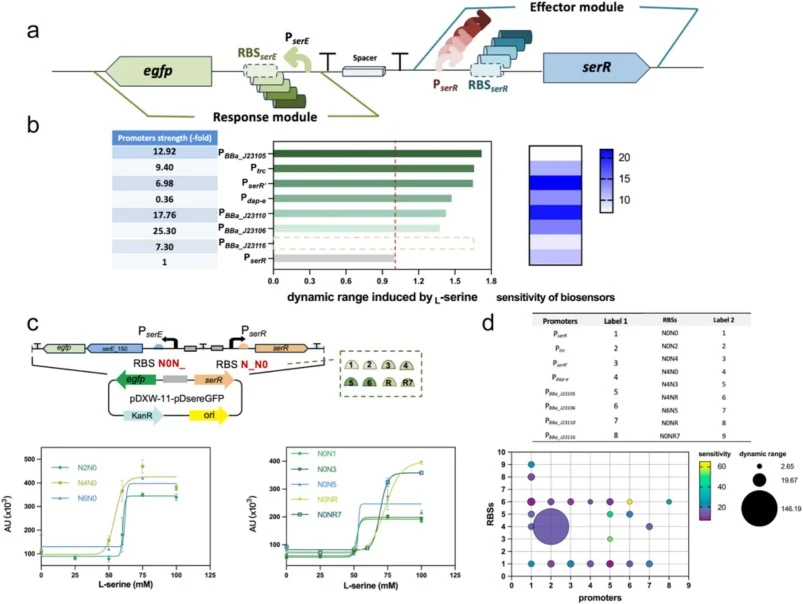
表S1列出了本研究使用的全部引物和质粒。下文所述关键质粒的构建方式如下:1)pDsereGFP:生物传感器以合成DNA片段为骨架搭建。2)pDsereGFP-promoters-serR:通过Golden Gate组装(Engler et al., 2008)用七个启动子替换P serR。3)pDsereGFP-RBS serE -serR-RBS serR :通过定点突变将天然RBS替换为合成RBS(如RBS1、RBS4)。命名遵循"N_N_"格式,其中"0"表示初始RBS,第一项对应serE的RBS,第二项对应serR的RBS。详见方法S1。所有构建体均经测序验证。
【数据】启动子数量:7个;RBS变体:RBS1、RBS4等;组装方法:Golden Gate;突变方法:定点突变;原文未详述DNA片段用量与反应体积
2.3 菌株构建
产L-丝氨酸的大肠杆菌菌株4WG(W3110ΔtdcGΔsdaAΔsdaBΔglyA serA dr)与谷氨酸棒杆菌菌株A均由本实验室构建。谷氨酸棒杆菌菌株A由菌株A36衍生而来,方法是将天然serA启动子替换为更强的启动子。用于FACS筛选时,菌株4WG与菌株A分别转入生物传感器质粒pDsereGFPP trc -E223V和pDsereGFPP trc -N4N0,得到菌株4WGB与AB。亲本菌株的详细基因型见表S1。大肠杆菌在LB培养基中37℃培养,谷氨酸棒杆菌在BHI培养基中30℃培养,所用抗生素为卡那霉素(50 μg/mL)或氯霉素(40 μg/mL)。
【数据】菌株:E. coli 4WG(W3110ΔtdcGΔsdaAΔsdaBΔglyA serA dr)、C. glutamicum A(A36衍生)、4WGB、AB;培养基:LB(大肠杆菌)、BHI(谷氨酸棒杆菌);温度:37℃(大肠杆菌)、30℃(谷氨酸棒杆菌);抗生素:卡那霉素50 μg/mL、氯霉素40 μg/mL
2.4 生物传感器测定
携带生物传感器质粒的大肠杆菌JM109在含卡那霉素的LB培养基中培养。细胞在96孔板中以1–100 mM L-丝氨酸诱导,37℃培养5 h。谷氨酸棒杆菌在BHI培养基中培养,同样条件下于30℃诱导5 h。OD(大肠杆菌OD600、谷氨酸棒杆菌OD562)与荧光(Ex/Em:488/509 nm)用BioTek Synergy H4酶标仪测定,增益保持170。荧光读数先扣除PBS空白的荧光与OD值,再对OD归一化。尽管各变体分批测定,所有批次均采用相同的诱导与测定条件。每个实验做三个生物学重复。
【数据】诱导剂浓度:1–100 mM L-丝氨酸;温度:37℃(大肠杆菌)、30℃(谷氨酸棒杆菌);时间:5 h;检测波长:Ex/Em 488/509 nm;增益:170;重复数:3个生物学重复;孔板:96孔板
2.5 数据分析
剂量–响应曲线在GraphPad Prism 10中按下式拟合:a.u. = Bottom + (Top − Bottom)/(1 + (L-serine/EC50)^p)。由拟合曲线导出半数有效浓度(EC50)、Hill斜率(p)、检测限(LOD)和动态范围。动态范围(倍数变化)按下式计算:Dynamic range = Top/Bottom。LOD定义为荧光阈值为Bottom + 3σ时所对应的L-丝氨酸浓度,其中σ为十个空白重复的标准差,由拟合的剂量–响应曲线导出。详见注释S1。
【数据】拟合软件:GraphPad Prism 10;LOD阈值:Bottom + 3σ;空白重复数:10;统计参数:EC50、Hill斜率p、动态范围Top/Bottom
2.6 SerR饱和突变文库构建
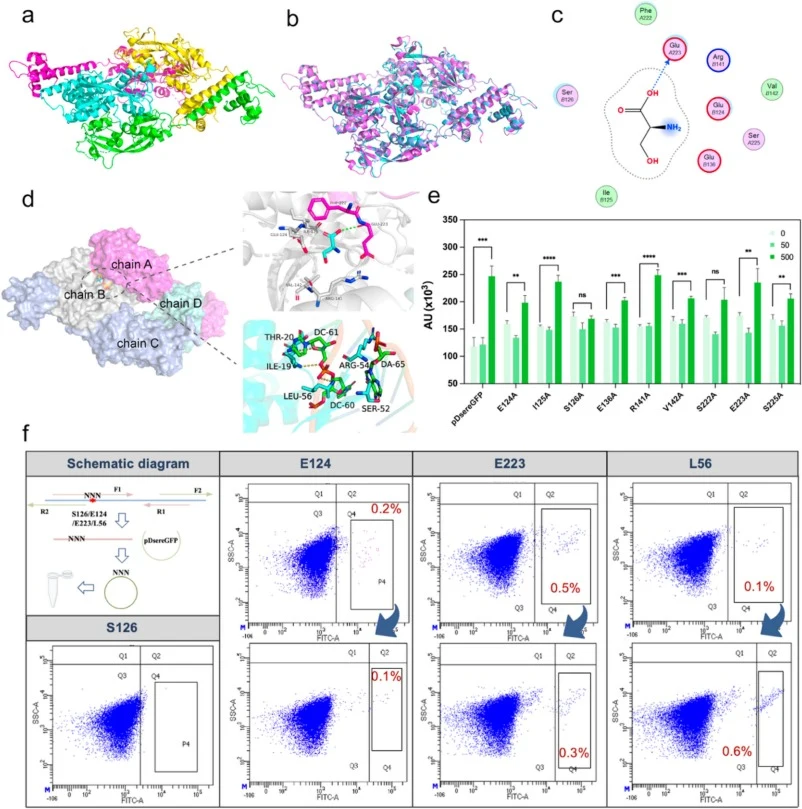
针对SerR残基L56、E124、S126和E223的突变文库通过In-Fusion克隆(Clonexpress Kit)构建,引物编码简并密码子(表S1)。文库转化入大肠杆菌JM109,每个文库测序30个随机菌落以确认可行性。
【数据】突变位点:L56、E124、S126、E223;克隆方法:In-Fusion(Clonexpress Kit);验证:每文库测序30个菌落
2.7 ARTP诱变
取OD600 = 0.6–0.8的4WG菌株,用ARTP处理(100 W,10 SLM,0–150 s)。
【数据】菌体浓度:OD600 0.6–0.8;ARTP功率:100 W;气流量:10 SLM;处理时间:0–150 s
2.8 分析与统计
L-丝氨酸浓度经衍生化后用HPLC测定(Eggeling & Sahm, 2003)。数据用GraphPad Prism 10和OriginPro 2016分析。流式细胞术在BD FACSAriaIII上进行,数据用FlowJo处理。结果以平均值±标准差表示。统计学显著性采用双因素方差分析(P < 0.0332,P < 0.0021,P < 0.0002,****P < 0.0001)。
【数据】HPLC:衍生化法测L-丝氨酸;分析软件:GraphPad Prism 10、OriginPro 2016;流式仪:BD FACSAriaIII;统计方法:双因素方差分析;显著性阈值:P < 0.0332、P < 0.0021、P < 0.0002、****P < 0.0001
研究结果
3.1 SerR介导的L-丝氨酸生物传感器pDser的表征
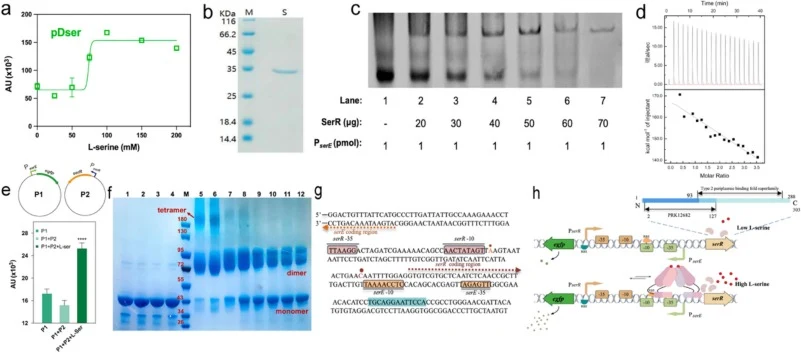
前期工作利用源自谷氨酸棒杆菌的L-丝氨酸响应调控因子SerR构建了L-丝氨酸生物传感器pDser(Zhang et al., 2018)。尽管pDser已在若干研究中应用,但其筛选效率低,降低了其分离突变体的效用。原始传感器性能欠佳限制了其在高通量筛选中的使用。因此,本研究旨在阐明SerR的调控机制并提升SerR类生物传感器的性能。首先在大肠杆菌中表征pDser的L-丝氨酸响应,所得剂量–响应曲线用Hill方程拟合(图1a)。在检测范围内荧光强度随L-丝氨酸浓度升高而增加。相应性能参数汇总于表1。传感器的灵敏度(以LOD表征)较差,pDser为71.61 mM;动态范围限于2.4倍。Hill斜率高达45.21,对应检测范围仅71.61–78.93 mM,提示剂量–响应曲线存在极强的协同性。因此,pDser仅适合定性检测L-丝氨酸的有无,无法在宽浓度范围内定量测定。
【数据】LOD:71.61 mM;动态范围:2.4倍;Hill斜率:45.21;检测范围:71.61–78.93 mM;菌株:E. coli(pDser)
3.2 L-丝氨酸感应转录因子SerR调控机制的解析
要有效优化pDser的灵敏度(LOD)与动态范围,必须研究SerR的调控机制。迄今研究仅报道胞内L-丝氨酸诱导SerR介导其同源基因serE(编码L-丝氨酸外排蛋白SerE)的激活(Binder et al., 2012; Zhang et al., 2020)。但SerR是否直接与L-丝氨酸及其同源启动子相互作用、属于何种转录因子、如何调控serE表达,仍不清楚。于是用NCBI资源分析SerR蛋白序列,结果显示SerR属于LTTR家族。LTTR的经典调控机制以"滑动二聚体"模型描述(Maddocks & Oyston, 2008)。通常LTTR形成二聚体作为DNA结合的功能单元,经配体诱导的构象变化减少DNA弯曲并调控下游基因表达(Alanazi et al., 2013; van Keulen et al., 2003)。但该模型存在例外,如CysB样调控因子Cbl即为典型例子(Pokhrel et al., 2023; Sainsbury et al., 2009; Stec et al., 2006)。可见即使在LTTR家族内部,调控机制也可能偏离经典模型。因此,解析SerR的精确机制对进一步精细调控传感器至关重要。
首先用EMSA研究SerR与P serE基因区域的相互作用。SerR蛋白在大肠杆菌BL21(DE3)中过表达,经镍螯合层析纯化,平均分子量为35 kDa(图1b)。随后进行EMSA分析(方法S3)。如图1c所示,泳道1仅含DNA探针(阴性对照),无条带迁移。随着纯化SerR浓度从0增至70 ng(泳道2–6),DNA–蛋白复合物形成逐步增加。SerR达70 ng时游离探针条带完全消失(泳道7),表明结合完全饱和。这些结果证实SerR与P serE区域之间存在直接、剂量依赖的相互作用。
为检验L-丝氨酸是否调节SerR的DNA结合活性,在有、无L-丝氨酸条件下进行对比EMSA。两种条件下加入SerR均使游离P serE DNA条带消失;apo态与配体结合态SerR在SerR–P serE复合物迁移率或结合亲和力上未见明显差异(图S1)。这表明无论L-丝氨酸存在与否,SerR均保持结合于靶启动子P serE。
接着用等温滴定量热法(ITC)定量SerR与L-丝氨酸的结合(图1d)。结合常数K = 3.30 M⁻¹,表明结合亲和力低。反应为吸热(ΔH = 2.743 × 10⁵ cal/mol),并伴随较大的正熵变(ΔS = 922 cal/mol/deg),提示疏水相互作用是结合的主要驱动力。这些结果证实L-丝氨酸直接结合SerR。弱亲和力与pDser传感器观察到的较差灵敏度(LOD约71.61 mM)一致。
随后通过双质粒系统验证配体L-丝氨酸对调控的影响(图1e)。使用两个质粒:质粒P1携带P serE区域和egfp报告基因,质粒P2仅表达SerR。仅存在P1时荧光报告系统处于"OFF"状态;共转入P1与P2也未能激活系统。只有P1、P2与L-丝氨酸三者共存时系统才被激活,表明SerR对P serE的调控依赖L-丝氨酸的存在。本质上,SerR、P serE与L-丝氨酸同时参与才能调控转录。
最后,为表征SerR的寡聚状态并研究其对L-丝氨酸的响应,进行戊二醛交联(图1f,方法S4)。更换表达载体并引入N端和C端His标签以减少纯化时的包涵体形成,这些改造使SerR表观分子量略增至约40 kDa。未交联时SerR主要以单体迁移(泳道1–4)。无DNA时交联产生单体、二聚体和四聚体条带(泳道5)。存在P serE DNA时四聚体条带更明显,单体与二聚体条带仍可检出(泳道6),提示DNA结合有利于形成或稳定可交联的SerR四聚体。随L-丝氨酸浓度升高(10–100 mM),四聚体信号逐步减弱,单体信号增加,二聚体条带相对稳定(泳道7–12)。这些结果提示L-丝氨酸改变了可交联SerR寡聚体的分布,与配体依赖的SerR亚基组织变化一致。
此外,用网站(https://www.fruitfly.org/seq_tools/promoter.html)分别预测了P serR与P serE启动子的−35和−10区,结果见图1g。基因组结构导致SerR与其靶基因serE呈发散转录。转录因子结合位点横跨P serR与P serE两个启动子,这阻碍了对关键元件的精细调控。
传感器特异性用一组结构相关代谢物评估。构建L-丝氨酸类似物文库,并按对SerR的预测结合亲和力排序,从中选取排名靠前的L-半胱氨酸和β-丙氨酸。二者均未引起相对荧光的显著变化(图S2a)。进一步测定L-苏氨酸、甘氨酸、L-丙氨酸和D-丝氨酸,其中仅D-丝氨酸引起相对荧光的浓度依赖性升高(图S2b)。由于D-丝氨酸在本培养条件下并非普遍存在的代谢中间体,该交叉反应不太可能干扰传感器在筛选优良L-丝氨酸生产菌中的实际应用。
基于上述结果,SerR的调控机制如图1h所示。SerR结合P serE启动子,L-丝氨酸诱导SerR寡聚体分布发生剂量依赖性变化。
【数据】SerR分子量:35 kDa(纯化后)、约40 kDa(双His标签后);EMSA:SerR 0–70 ng,70 ng时结合饱和;ITC:K = 3.30 M⁻¹,ΔH = 2.743 × 10⁵ cal/mol,ΔS = 922 cal/mol/deg;交联:L-丝氨酸10–100 mM;LOD:约71.61 mM;测试类似物:L-半胱氨酸、β-丙氨酸、L-苏氨酸、甘氨酸、L-丙氨酸、D-丝氨酸
讨论与解读
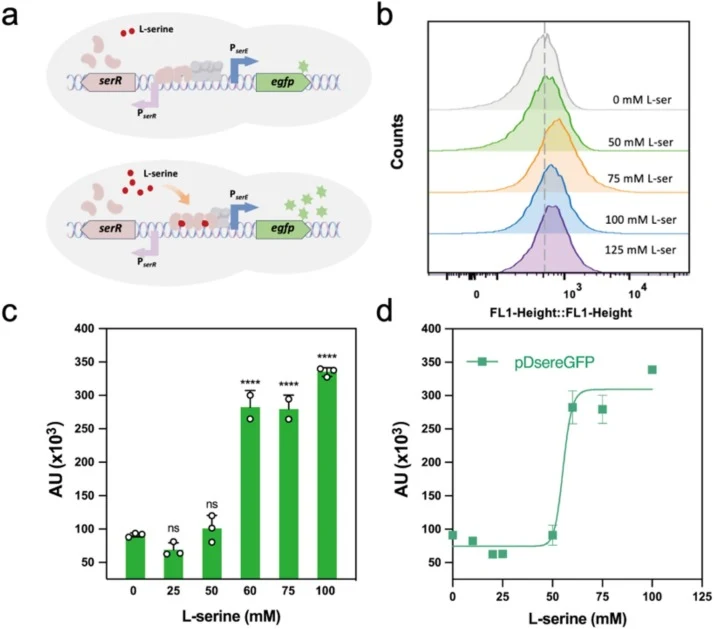
野生型L-丝氨酸生物传感器pDser的传感窗口有限:灵敏度差(LOD 71.61 mM)、动态范围窄(2.4倍)。机制分析表明,SerR–L-丝氨酸–P serE复合物介导的转录激活在L-丝氨酸达到71.61 mM阈值时被触发。基于该机制认识,作者构建了模块化SerR类传感器并理性调节其传感特性:pDsereGFPP trc -E223V变体改善灵敏度,LOD降至29.82 mM;pDsereGFPP trc -N4N0变体将动态范围扩大至146.2倍,较野生型提高60.9倍。通过将传感特性匹配到不同生产窗口,工程化传感器实现了在大肠杆菌和谷氨酸棒杆菌低、高滴度背景下基于FACS的有效富集。该工作确立了"按生产水平定制传感器性能"的机制导向原则,用于传感器工程与微生物菌株开发。
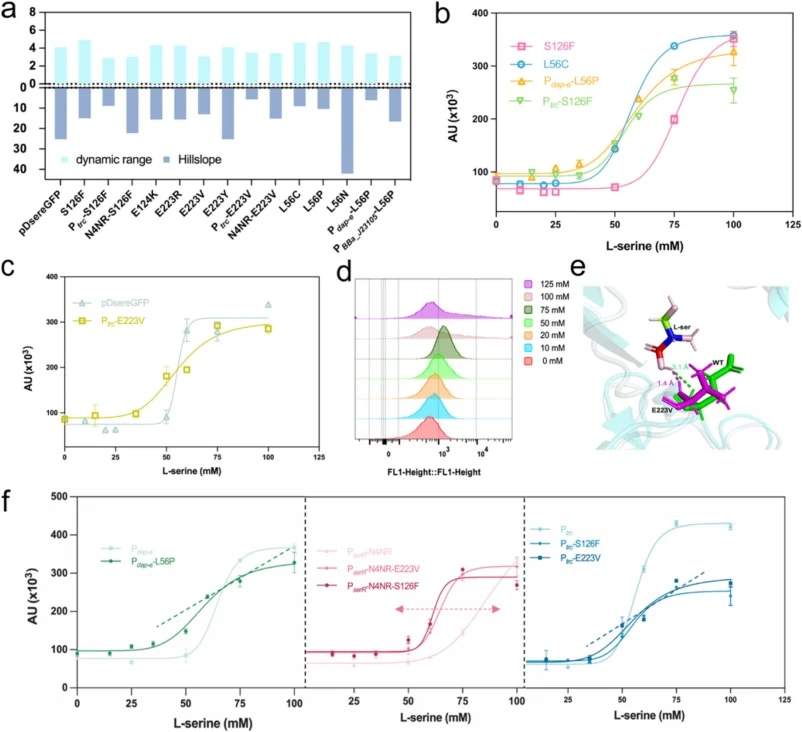
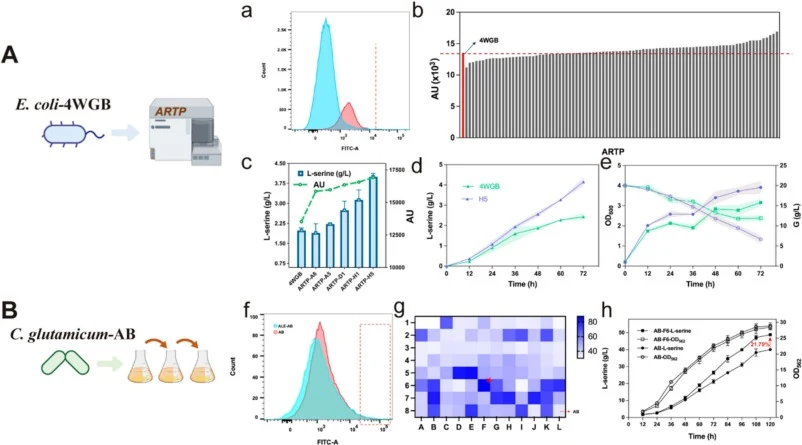
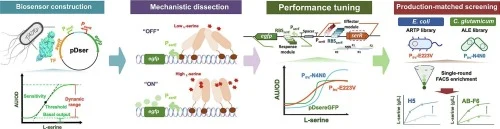
编译者解读:本研究的方法学价值在于"先机制、后改造"的顺序:先用EMSA、ITC与交联实验确认SerR直接结合L-丝氨酸且配体改变其寡聚态,再把LOD与动态范围作为两个可独立调节的参数分头优化——低滴度场景要低LOD,高滴度场景要大动态范围。这种"按生产窗口定制"的思路比追求单一"最优传感器"更贴近工业筛选实际。局限在于两个变体仍分属不同质粒、需分别使用,且D-丝氨酸交叉反应虽被论证为不干扰,却提示配体特异性仍有改造空间。
参考来源
期刊:Bioresource Technology, 2026
DOI: 10.1016/j.biortech.2026.136251
DOI: 10.1016/j.biortech.2026.136251