来源:Mitochondrial dysfunction redirects proton transport and energy homeostasis in Saccharomyces cerevisiae under variable pH and glucose conditions(Biochimica et Biophysica Acta (BBA) - Bioenergetic)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
线粒体不仅是能量工厂,还深度参与质子稳态与应激适应的调控。本研究以酿酒酵母W3031B及其Δhap4、ρ⁰突变体为对象,系统考察胞外pH(3.0、5.0、6.5)与葡萄糖浓度(0.5%、2%)交互作用下生长、质子通量、乙醇脱氢酶及H⁺-ATPase活性的变化。结果显示,线粒体缺陷使细胞在酸性pH与低葡萄糖下生长受损,并将质子稳态调控权"移交"质膜与胞质H⁺-ATPase,ρ⁰细胞依赖程度最高。
研究背景
碳源供应与胞外pH的波动,深刻影响酿酒酵母的生长、代谢流、氧化还原平衡与酶活性。酵母的代谢柔性使其能在氧化呼吸与发酵之间切换,当葡萄糖浓度超过约0.144 g L⁻¹时,即便在有氧条件下也产乙醇,即Crabtree效应。高葡萄糖促进发酵、抑制呼吸,胞外pH则调节胞内氧化还原状态与线粒体性能,但两者联合作用尚未被充分阐明。
线粒体是呼吸/发酵切换的核心调控者。Hap2/3/4/5复合物是呼吸基因的转录激活因子,协调TCA循环、电子传递链与氧化磷酸化相关基因表达;Hap4过表达增强呼吸能力,而Hap4表达下降则促进发酵与Crabtree效应。然而,依赖葡萄糖浓度的Crabtree效应在转录与代谢层面的调控机制仍不清楚。本研究以Δhap4(Hap4缺失)与ρ⁰(线粒体DNA缺失、丧失氧化磷酸化)突变体为工具,解析线粒体功能如何塑造酵母对不同pH与葡萄糖条件的适应。
研究方法
2.1 菌株、培养基与培养条件
酿酒酵母W3031B及其衍生Δhap4和ρ⁰(rho 0)突变株由意大利巴里阿尔多莫罗大学的Nicoletta Guaragnella教授提供。本研究所用全部菌株的基因型汇总于表1。取−80 °C保存的菌种,在YPDA平板上培养,平板含酵母提取物10 g L⁻¹、蛋白胨20 g L⁻¹、d-葡萄糖20 g L⁻¹、琼脂20 g L⁻¹。挑取单菌落中的单克隆细胞转入YPD液体培养基,在有氧条件下过夜培养(种子液)。随后将细胞接种于含0.5%或2%葡萄糖的YP培养基,初始光密度(OD600)为0.2(DEN600,Biosan,拉脱维亚)。培养于锥形瓶中进行,有氧条件,装液量为总体积的1/3,温度30 °C,旋转振荡180 rpm(Infors Multitron Standard,Infors HT,瑞士)。培养基pH用0.1 N HCl或0.1 N NaOH调节至3.0、5.0或6.5,使用HI1131B pH电极配合HI3220 pH/离子计(Hanna Instruments,美国),并以标准校准液(pH 2.01、pH 4.01、pH 7.01,Hanna Instruments,美国)校准。
【数据】菌株:W3031B、Δhap4、ρ⁰;培养基:YPDA/YP;葡萄糖:0.5%或2%;接种OD600:0.2;温度:30°C;转速:180 rpm;装液量:1/3体积;pH:3.0/5.0/6.5;调节剂:0.1 N HCl/NaOH
2.2 酵母生长及培养基理化参数测定
酵母生长通过Cary 60紫外-可见分光光度计(Agilent Technologies,德国)测定培养物OD600进行监测。指数生长期比生长速率(μ)按OD自然对数增量与倍增时间之比计算。生物量生产通过基于背散射的Cell Growth Quantifier(CGQ)生物传感器(Scientific Bioprocessing,德国)监测,传感器连接轨道振荡器(Infors Multitron Standard,瑞士),数据采集与分析使用DOTS软件(Scientific Bioprocessing,德国)。在含0.5%或2%葡萄糖的YP培养基中,细胞生长至120 h内持续监测胞外pH与氧化还原电位(ORP)动力学。胞外pH变化用配备HI1131电极的HI3220 pH计(Hanna Instruments,美国)监测。ORP测定使用ORP电极(HI3131,Hanna Instruments,美国)配合HI5222离子计(Hanna Instruments,美国)。ORP电极用含16.13 g L⁻¹ K₃[Fe(CN)₆]与21.12 g L⁻¹ K₄[Fe(CN)₆]、pH 6.86的参比溶液校准:ORP为254 ± 10 mV(25 °C)。
【数据】监测时长:120 h;ORP校准值:254 ± 10 mV;校准液:16.13 g L⁻¹ K₃[Fe(CN)₆] + 21.12 g L⁻¹ K₄[Fe(CN)₆];校准pH:6.86;温度:25°C
2.3 葡萄糖消耗动力学测定
葡萄糖消耗采用苯酚-硫酸法测定。简要流程:取离心(13,500 rpm,10 min)后的无细胞上清0.4 mL,与0.2 mL 5%(w/v)苯酚及1 mL浓硫酸混合,于25–30 °C孵育10 min。以不含葡萄糖的YP为对照,在490 nm测定吸光度。数据经葡萄糖标准曲线定量,以g L⁻¹表示。
【数据】上清体积:0.4 mL;苯酚:0.2 mL、5%(w/v);硫酸:1 mL(浓);孵育温度:25–30°C;孵育时间:10 min;检测波长:490 nm;离心:13,500 rpm、10 min
2.4 乙醇脱氢酶酶活测定
收集指数中期细胞,按上述方法3500 ×g离心。沉淀重悬于0.1 M甘氨酸-氢氧化钠缓冲液(pH 9.0),用Biosan LMC-4200R离心机(Biosan,拉脱维亚)于3160 ×g离心10 min。细胞再次重悬于同一缓冲液,用EmulsiFlex-C3高压均质机(Avestin,加拿大)于4 °C破碎,连续循环5 min,最大压力20,000 psi,压力以椭球方式递增。所得粗提物以13,500 rpm离心10 min,在上清中测定总ADH活性。反应体系:0.1 mL乙醇(0.41 M)、0.1 mL NAD⁺(36 mM)、2.7 mL甘氨酸-NaOH缓冲液(0.1 M,pH 10.0),加入0.1 mL细胞裂解液启动反应。ADH活性通过分光光度计(Cary 60 UV-Vis,Agilent Technologies,美国)在340 nm监测NADH生成动力学。上清蛋白浓度用Lowry法测定,以牛血清白蛋白为标准。酶活以U mg⁻¹蛋白表示,1单位定义为每分钟将1.0 μmol乙醇转化为乙醛的酶量。
【数据】离心:3500 ×g / 3160 ×g、10 min;破碎:4°C、5 min、20,000 psi;反应体系:乙醇0.41 M(0.1 mL)、NAD⁺ 36 mM(0.1 mL)、甘氨酸-NaOH 0.1 M pH 10.0(2.7 mL)、裂解液0.1 mL;检测波长:340 nm;酶活单位:U mg⁻¹蛋白(1 U = 1.0 μmol乙醇/min)
2.5 质子通量测定
取对数中期细胞(生长22–24 h),用Sorvall LYNX 6000超速离心机(Thermo Scientific,美国)3500 ×g离心15 min收集。细胞沉淀用蒸馏水洗涤,随后重悬于实验缓冲液(150 mM Tris–HCl,终浓度含0.4 mM MgSO₄、1 mM NaCl、1 mM KCl,pH 7.5),按已报道方法测定完整细胞质膜H⁺通量速率(JH⁺)。简言之,用pH选择性电极(Hanna Instruments,美国)以电位法监测外加葡萄糖(浓度与生长培养基一致,0.5%或2%)后外部质子活性的变化。电极读数通过用0.01 M HCl滴定实验缓冲液校准,数据由LabView程序(National Instruments Co.,美国)每10 s输出。JH⁺由测得的质子活性变化计算,以mM H⁺ per minute per 10⁹ cells表示。为评估H⁺-ATPase依赖的质子通量,平行组细胞在测定前用H⁺-ATPase特异性抑制剂0.5 mM N,N′-二环己基碳二亚胺(DCCD)处理15 min,然后按上述方法监测质子通量。DCCD敏感质子通量速率定义为总质子通量速率与DCCD抑制样品之差,以百分比表示。
【数据】细胞龄:22–24 h;离心:3500 ×g、15 min;缓冲液:150 mM Tris–HCl、0.4 mM MgSO₄、1 mM NaCl、1 mM KCl、pH 7.5;DCCD:0.5 mM、15 min;数据输出间隔:10 s;单位:mM H⁺ min⁻¹ 10⁻⁹ cells;校准:0.01 M HCl
2.6 线粒体分离与ATPase活性测定
对数中期细胞用上述EmulsiFlex-C3高压均质机破碎。粗提物用于评估细胞内总H⁺-ATPase活性。线粒体按先前方法从同一粗提物中分离。样品以4000 rpm离心5 min,沉淀用1.2 M山梨醇洗涤。随后沉淀重悬于匀浆缓冲液(0.6 M山梨醇、10 mM Tris-HCl、1 mM EDTA、0.1%牛血清白蛋白,pH 7.4),于4 °C用Potter-Elvehjem玻璃微量匀浆器匀浆10–15次。悬液于4 °C、3000 rpm离心5 min,上清于4 °C、40,000 ×g超速离心15 min。所得沉淀为纯线粒体组分(30–40 mg蛋白 mL⁻¹),重悬于100–200 μL膜储存缓冲液(20 mM Tris缓冲液,含0.25 M蔗糖、1 mM EDTA、1 mM DTT,pH 7.4),−20 °C保存待用。粗裂解液与线粒体组分的蛋白浓度用Lowry法测定。ATPase活性测定取含100 μg蛋白的粗裂解液与线粒体组分。ATPase活性通过Taussky与Shorr法量化无机磷释放至孵育介质中。酶活以nmol Pi·mL⁻¹·min⁻¹·μg⁻¹蛋白表示。平行组用DCCD(0.5 mM)处理裂解液与线粒体组分。DCCD敏感H⁺-ATPase活性定义为未处理与DCCD处理样品之差。
【数据】离心:4000 rpm、5 min;匀浆:4°C、10–15次;超速离心:40,000 ×g、15 min、4°C;线粒体蛋白浓度:30–40 mg mL⁻¹;储存缓冲液:20 mM Tris、0.25 M蔗糖、1 mM EDTA、1 mM DTT、pH 7.4;储存温度:−20°C;上样蛋白量:100 μg;DCCD:0.5 mM;酶活单位:nmol Pi·mL⁻¹·min⁻¹·μg⁻¹蛋白
2.7 试剂与数据处理
本研究全部试剂为分析纯,购自Carl Roth GmbH(德国)、Sigma-Aldrich(美国)等,如各节所述。所列数值为至少三次独立实验的结果,且SD < 3%。统计比较(原文此处节选中断,后续统计方法原文未详述)。
【数据】独立实验次数:≥3;SD:<3%;试剂等级:分析纯;原文未详述:统计比较方法细节
研究结果
3.1 葡萄糖浓度与胞外pH对生长速率及理化参数的联合影响
测定了酿酒酵母W3031B野生型、Δhap4与ρ⁰突变体在不同pH(3.0、5.0、6.5)与葡萄糖浓度(0.5%或2%)下培养的比生长速率(μ)。结果表明,各菌株对培养条件变化呈差异化响应(图1)。
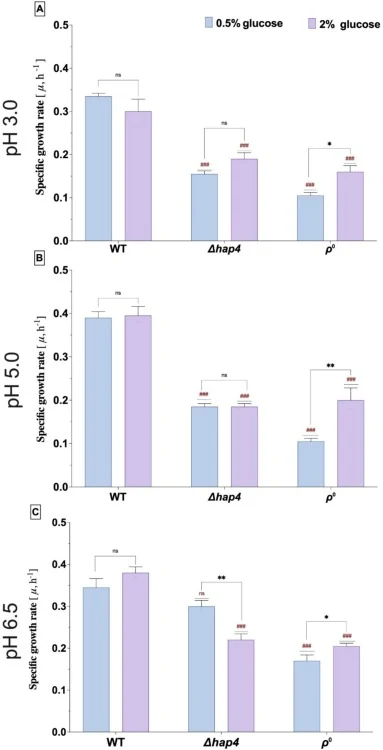
在0.5%葡萄糖培养时(图1A-C),WT细胞在所测pH范围内生长速率无显著变化,而Δhap4与ρ⁰突变体在pH 3.0–5.0下生长较pH 6.5下降约65%。与WT相比,两种线粒体缺陷突变体在pH 3.0–5.0下生长速率分别降低达2.2倍与3.7倍。在含2%葡萄糖的丰富培养基中(图1A-C),WT与Δhap4的比生长速率无显著变化,而ρ⁰较0.5%葡萄糖条件μ增加约2.0倍。不过,所有菌株的生长速率均不依赖pH。补充图1显示,pH 6.5下指数生长的WT细胞将两种浓度的葡萄糖完全消耗,但2%葡萄糖下的生物量产量约为0.5%葡萄糖的6.0倍。
【数据】低糖下突变体生长降幅:~65%(pH 3.0–5.0 vs 6.5);较WT降幅:Δhap4 2.2倍、ρ⁰ 3.7倍;ρ⁰在2%葡萄糖下μ增幅:~2.0倍;生物量产量比:2% vs 0.5%葡萄糖约6.0倍;pH 6.5下葡萄糖完全消耗
细胞代谢波动反映在胞外理化参数变化上。为评估不同初始葡萄糖浓度、pH与线粒体状态下的时程生长模式,全程监测了胞外pH与ORP变化(图2)。
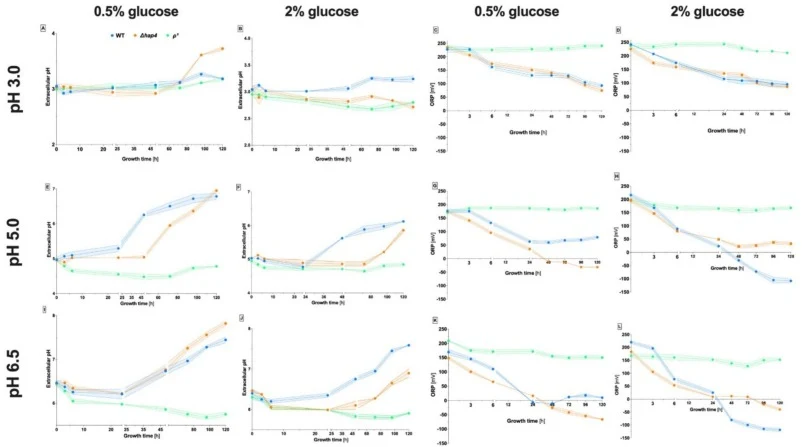
胞外pH随时间的变化呈葡萄糖与菌株依赖性。pH 3.0下所有条件下培养期间胞外pH无显著变化(图2A;B)。ρ⁰细胞培养期间胞外pH保持稳定,与pH及葡萄糖浓度无关。结果显示,对数中期细胞(补充图1)使培养基酸化,而延长培养可因呼吸激活导致培养基碱化。pH 5.0、0.5%葡萄糖下培养120 h,WT与Δhap4胞外pH升高约2.0个单位;而2%葡萄糖下仅升高约1.0个单位(图2E;F)。pH 6.5下WT胞外pH变化动态在两种葡萄糖浓度下相似,ΔpHmax为1.1。相比之下,pH 6.5下Δhap4在0.5%与2%葡萄糖中培养120 h,pH分别从6.5升至7.9与7.0。ORP变化与pH变化动态一致,取决于初始胞外pH、葡萄糖浓度与所用菌株(图2C;D;G;H;K;L)。较高pH(5.0与6.5)下ORP随时间下降(图2G;H;K;L),降幅最明显出现在培养48–120 h。最大ORP降幅(约325 mV)见于WT在pH 5.0、2%葡萄糖下培养,其次为Δhap4(约200 mV)与ρ⁰(约40 mV)(图2H)。
【数据】pH 5.0/0.5%葡萄糖120 h pH升幅:~2.0单位(WT、Δhap4);2%葡萄糖:~1.0单位;pH 6.5下WT ΔpHmax:1.1;Δhap4 pH 6.5/0.5%葡萄糖:6.5→7.9;2%葡萄糖:6.5→7.0;最大ORP降幅:WT ~325 mV、Δhap4 ~200 mV、ρ⁰ ~40 mV;ORP主要降幅时段:48–120 h
3.2 不同葡萄糖浓度与胞外pH下质膜质子通量
测定了不同pH与葡萄糖条件下指数生长WT、Δhap4与ρ⁰完整质膜的总质子通量与DCCD敏感质子通量。为检验钾对JH⁺的影响,采用不同K⁺浓度(0–5.0 mM)的实验缓冲液并按上述方法测定质子通量。补充图2汇总的结果显示,1.0–5.0 mM K⁺下质子通量速率无显著变化,这与先前研究一致——>10.0 mM K⁺可诱导悬浮于MES-TEA缓冲液中的酵母细胞(早指数期)去极化,Trk转运蛋白在此中起关键作用。
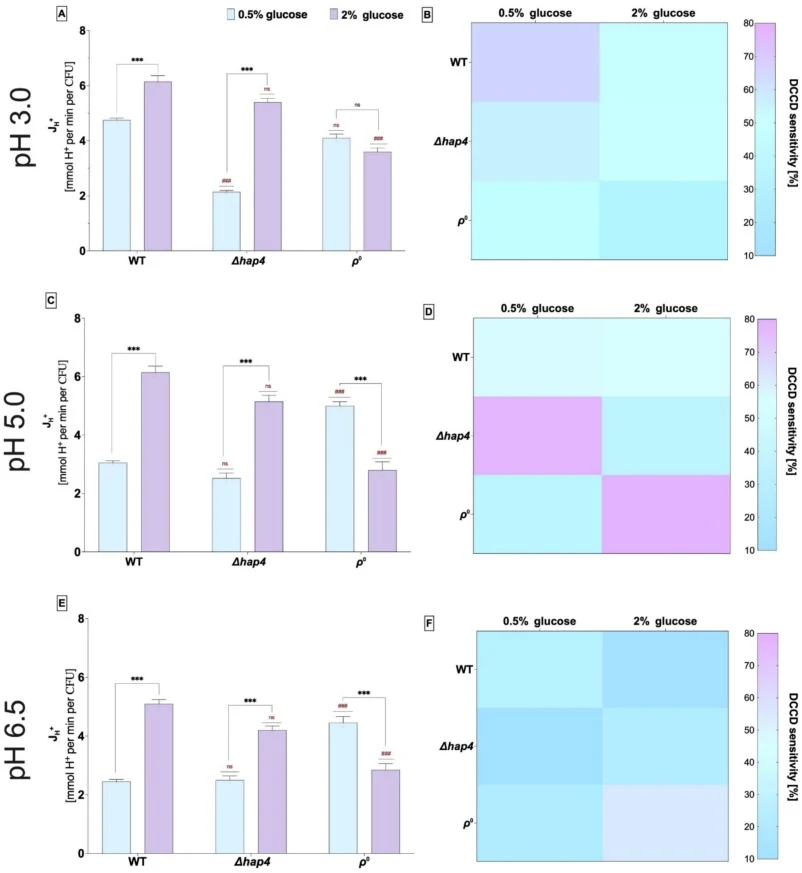
结果表明,总质子通量与DCCD敏感质子通量均依赖胞外pH、葡萄糖可利用性与菌株背景。最高总JH⁺(约6.0 mM H⁺ per min per 10⁹ CFU)见于2%葡萄糖下生长的WT细胞(图3A;C;E),且总JH⁺不依赖pH。相比之下,0.5%葡萄糖下总JH⁺较2%葡萄糖低约2.0倍(随pH而异)。尽管0.5%葡萄糖下JH⁺较低,DCCD敏感JH⁺却更高:在pH 3.0–5.0、0.5%葡萄糖下生长的WT细胞中,其贡献总质子通量的60–70%(图3A;C),比2%葡萄糖条件下同一参数高30%。pH 6.5、0.5%葡萄糖下WT的DCCD敏感JH⁺低约50%;而2%葡萄糖下总JH⁺对DCCD不敏感(图3E)。
0.5%葡萄糖下Δhap4总JH⁺较WT低2.0倍,与pH无关。2%葡萄糖下总JH⁺虽无显著差异,但Δhap4与WT的DCCD敏感JH⁺存在差异(图3B;D;F)。pH 5.0、0.5%葡萄糖下,Δhap4的DCCD敏感JH⁺较WT高约30%(图3D)。pH 5.0、2%葡萄糖下,Δhap4中DCCD敏感JH⁺对总质子通量的贡献降至约30%(WT约60%)(图3D),比pH 3.0、0.5%葡萄糖下Δhap4的相应贡献低约2.6倍(图3B)。
pH 3.0、0.5%葡萄糖下,WT与ρ⁰总JH⁺无显著差异(图3A)。但在pH 5.0与6.5下,ρ⁰总JH⁺较WT高约1.8倍。相反,ρ⁰总JH⁺较WT与Δhap4分别低约40%与60%。此外,0.5%葡萄糖下总JH⁺不依赖pH,而2%葡萄糖下ρ⁰在pH 3.0的总JH⁺较pH 5.0与6.5高约40%(图3A;C;E)。ρ⁰中DCCD敏感JH⁺在pH 3.0下占总质子通量达40%,与葡萄糖浓度无关(图3B)。相反,pH 5.0下其相对贡献呈葡萄糖依赖,2%葡萄糖下达80%,约为0.5%葡萄糖(约35%)的2.3倍(图3D)。pH 6.5、2%葡萄糖下WT与Δhap4质子通量不依赖DCCD,而ρ⁰中DCCD敏感JH⁺占总质子通量约60%(图3F)。总体而言,线粒体功能障碍以葡萄糖与pH依赖方式改变质子通量调控,ρ⁰细胞差异最大。
【数据】K⁺测试范围:0–5.0 mM(1.0–5.0 mM无显著变化);最高总JH⁺:~6.0 mM H⁺ min⁻¹ 10⁻⁹ CFU(WT、2%葡萄糖);0.5% vs 2%葡萄糖总JH⁺:低~2.0倍;WT DCCD敏感贡献:60–70%(pH 3.0–5.0、0.5%葡萄糖),较2%条件高30%;pH 6.5/0.5%葡萄糖:低~50%;Δhap4总JH⁺较WT:低2.0倍(0.5%葡萄糖);Δhap4 DCCD敏感JH⁺较WT:高~30%(pH 5.0、0.5%葡萄糖);贡献降至~30%(2%葡萄糖),低2.6倍;ρ⁰总JH⁺较WT:高~1.8倍(pH 5.0/6.5、0.5%葡萄糖);较WT/Δhap4低~40%/~60%;ρ⁰ pH 3.0总JH⁺较pH 5.0/6.5高~40%(2%葡萄糖);ρ⁰ DCCD敏感贡献:40%(pH 3.0)、80%(pH 5.0、2%葡萄糖)、~35%(0.5%葡萄糖)、~60%(pH 6.5、2%葡萄糖)
3.3 乙醇脱氢酶活性:葡萄糖浓度、胞外pH与线粒体缺陷的影响
测定了不同pH与葡萄糖水平下指数中期WT、Δhap4与ρ⁰细胞的ADH活性。结果表明,ADH活性在菌株间差异显著,取决于胞外pH与葡萄糖浓度(图4)。
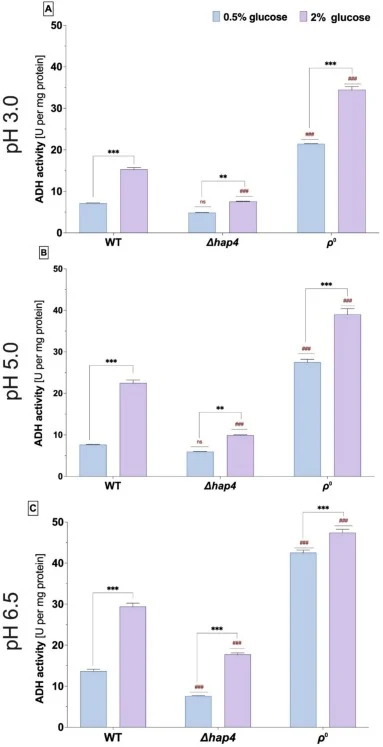
WT细胞ADH活性呈葡萄糖依赖变化,与pH无关,2%葡萄糖下活性高约3.0–4.0倍。最高ADH活性(28.8 ± 0.8 U mg⁻¹蛋白)见于pH 6.5、2%葡萄糖培养(图4C)。与葡萄糖浓度无关,pH 6.5下ADH活性较pH 3.0–5.0高约2.0倍(图4A-C)。pH 3.0、2%葡萄糖下ADH活性低约40%,而0.5%葡萄糖下无实质变化。Δhap4突变体表现出(原文此处节选中断,后续内容原文未详述)。
【数据】WT ADH活性(2% vs 0.5%葡萄糖):高~3.0–4.0倍;最高ADH活性:28.8 ± 0.8 U mg⁻¹蛋白(pH 6.5、2%葡萄糖);pH 6.5 vs pH 3.0–5.0:高~2.0倍;pH 3.0/2%葡萄糖:低~40%;原文未详述:Δhap4及ρ⁰的ADH完整数据
讨论与解读
细胞对波动环境的适应,需要将营养感知、能量代谢与离子稳态整合为协同调控网络。转录组、蛋白组与代谢组分析表明,葡萄糖限制同时激活呼吸与呼吸-发酵代谢响应,高葡萄糖即便在有氧下也促进发酵。线粒体虽被视为生物能量枢纽,但其作为碳源可利用性与胞外pH的系统级整合者,角色仍未充分界定。本研究显示,线粒体功能深刻塑造酵母对葡萄糖与pH变化的适应:生长响应呈菌株与葡萄糖浓度依赖,线粒体缺陷突变体在低葡萄糖与酸性pH下生长受损,高葡萄糖则缩小菌株间pH依赖差异(图1)。WT比生长速率在各pH下保持稳定,体现高效代谢柔性与稳健应激适应;两种线粒体缺陷株在酸性pH(3.0–5.0)下生长明显受损,ρ⁰尤甚,其生长抑制高达3.7倍,可能反映氧化磷酸化缺失与(原文此处节选中断)。
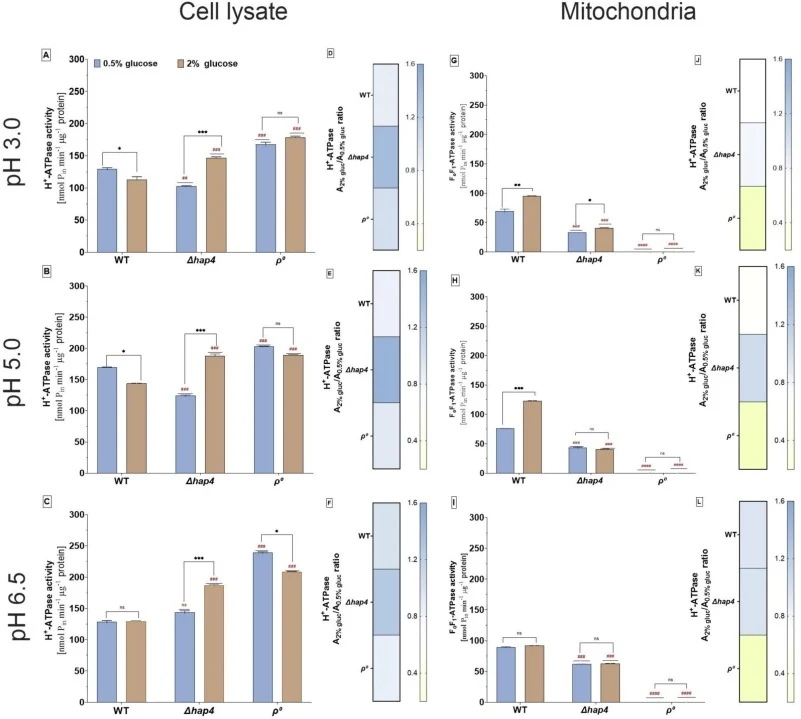
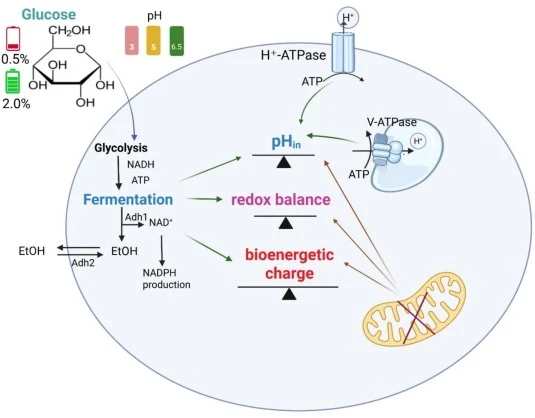
编译者解读:该研究以Δhap4与ρ⁰为"线粒体功能梯度"探针,把质子通量、ADH与H⁺-ATPase活性放进pH×葡萄糖二维矩阵中测量,方法学上胜在同步监测胞外pH与ORP动力学,能捕捉呼吸激活导致的碱化转折。对合成生物学而言,ρ⁰在低糖酸性下把质子稳态"外包"给质膜/胞质ATPase的补偿逻辑,提示底盘细胞工程中敲除线粒体功能可作为降低能耗负担、重定向碳 flux 的调控开关;但ρ⁰生长受损与DCCD敏感通量占比剧烈波动,也意味着这类底盘在工业酸性低糖发酵中的鲁棒性边界需要精细标定。
参考来源
期刊:Biochimica et Biophysica Acta (BBA) - Bioenergetics, 2026
DOI: 10.1016/j.bbabio.2026.149595
DOI: 10.1016/j.bbabio.2026.149595