来源:CHO细胞结团严重搅拌剪切优化(DNA Lab Space 实验教程)| 编译:DNA Lab Space
CHO培养到第3天,镜下一看全是十几颗细胞抱成的大团,计数仪读出来的密度直接掉一半。做蛋白表达的最怕这个——活率还撑得住,产物却往下掉。结团不是单一原因,剪切成因、培养基离子环境、传代手法、细胞株本身的黏附特性都参与其中。下面按“先排低级错、再分模块查、最后啃疑难”的顺序走一遍,多数情况下你能在2天内定位到主因。
第一步:先看这4个新手常犯的低级错误
1. 摇瓶转速凭感觉设。125 mL摇瓶只给90 rpm,剪切根本不够。直接调到120-130 rpm(25 mm振幅),24小时内看团块是否缩小。
2. 接种密度过低。低于0.2×10⁶ cells/mL,细胞为“找同伴”会主动聚集。起步用0.4-0.5×10⁶ cells/mL。
3. 传代时离心太狠。200 g以上、5分钟以上,细胞压紧成饼,吹打再散也带损伤。降到100-150 g,5 min,弃上清后轻弹管壁再重悬。
4. 没加抗结团剂就上罐。补料批培养里Pluronic F-68是“标配”,摇瓶阶段常被忽略。先加0.1% (w/v) 试试。
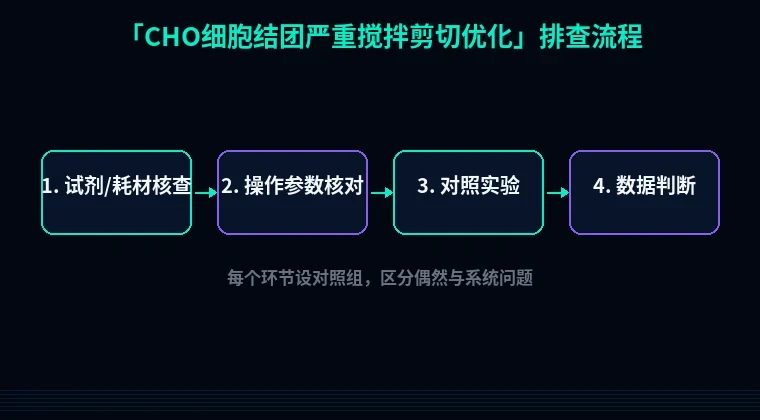
第二步:按流程分模块系统排查
模块A 搅拌与流体力学
现象:团块中心紧实、边缘细胞破碎率高,乳酸脱氢酶(LDH)释放上升。
原理:CHO贴壁依赖性弱,但仍靠钙黏蛋白介导弱黏附。剪切不足→碰撞后黏住不散;剪切过大→细胞膜受损后释放DNA,反而把死细胞和活细胞“粘”成更大的团。存在一个窗口,不是越大越好。
动作链:
1. 算叶尖线速度:π×D×N。CHO在搅拌罐里常用0.8-1.5 m/s,低于0.6 m/s结团概率明显升高。摇瓶换算约100-140 rpm。
2. 桨型选斜叶桨(pitched-blade)或最大叶片面积桨,别用Rushton直叶桨打CHO,局部剪切峰值高。
3. 装液量控制在罐体容积的60%-70%。装太满液面波动小,混合死区变大。
4. 加挡板改善轴向流,避免形成“慢速旋涡”——那是结团的温床。
验证:调参后每12小时取样,用Vi-CELL或成像计数看粒径分布,团块(>5细胞)占比从30%降到10%以下算有效。
模块B 通气与气泡
现象:结团伴随泡沫增多,团块内可见气泡包裹。
原理:鼓泡通气在气液界面产生高剪切,细胞被推到泡沫层脱水聚集;同时气泡上升的尾流把细胞卷成一串。
动作链:
1. 深层通气改用微泡+Pluronic F-68 0.1%-0.2%,降低气泡聚并。
2. 表通控制在0.01-0.02 vvm,别用大泡冲刷液面。
3. 若用摇瓶,装液量不超过瓶容积的20%,瓶口用透气膜而非棉塞。
验证:比较加/不加Pluronic的两组,48小时后团块占比差异>15%即说明气泡是主因之一。
模块C 培养基离子与黏附环境
现象:换批培养基后突然结团,细胞活率正常。
原理:钙黏蛋白依赖Ca²⁺。Ca²⁺、Mg²⁺偏高时细胞间黏附增强;另一方面,细胞碎片释放的DNA带负电,桥接细胞形成团。
动作链:
1. 查当前培养基钙浓度。超过1.5 mM可考虑换低钙配方,或补0.5-1 mM EDTA(下游纯化需评估)。
2. 加DNase I 10-20 U/mL,降解游离DNA,处理24小时看团块是否变松。
3. 抗结团剂组合:Pluronic F-68 0.1% + 硫酸葡聚糖0.1%-0.2%,两者机制互补。
4. 补料培养基的pH和渗透压也查一遍,渗透压>400 mOsm/kg会诱发应激性聚集。
验证:结团指数=(团块内细胞数/总细胞数)×100%,处理前后各测一次。
模块D 传代操作与细胞状态
现象:传代后第1天就成团,且团块越吹越散不开。
原理:胰酶/Accutase消化不彻底→残留黏附;消化过度→膜蛋白损伤,细胞靠“抱团”自保。离心压饼后机械吹打也制造碎片。
动作链:
1. 消化用Accutase 37°C 5-8 min,镜下确认单细胞率>90%再终止。
2. 终止液体积至少为酶液的3倍,含10% FBS。
3. 重悬用10 mL移液管轻柔上下5次,禁止用1 mL枪头猛吹。
4. 连续传代不超过25代,超代次细胞黏附表型漂移。
验证:传代当天镜检单细胞率;若<85%,问题在消化而非反应器。
第三步:进阶疑难问题
其一:抗体/产物介导的细胞黏附。表达分泌型抗体的克隆,产物在膜表面富集,通过Fc-Fc相互作用拉近细胞。表现是产抗体越高、结团越重。对策:把培养温度在产毒期降到32-34°C 24-48小时,减缓分泌速率;或在培养基里加0.05%低分子量硫酸葡聚糖做屏蔽。
其二:克隆间钙黏蛋白表达差异。同一宿主、不同克隆,结团倾向差3倍以上。筛克隆时把“单细胞悬液静置2小时不聚”作为一项指标,比只看滴度更省后期麻烦。
其三:放大后剪切历史不匹配。2 L罐调好的转速,直接按等tip speed放大到200 L,混合时间变长、局部剪切峰值高,结团反而加重。放大时同时匹配tip speed(±10%)和混合时间(±20%),两个参数不能只对一个。
避坑总结与实操建议
三条核心结论:
- 先算tip speed再调转速,CHO的窗口在0.8-1.5 m/s,凭手感设rpm是最大的坑。
- Pluronic F-68不是可选项,0.1%是起点,拮抗气泡剪切比事后吹打有效得多。
- 结团先看单细胞率,传代那步做不干净,反应器里怎么调都是治标。
两个日常好习惯:
1. 每次传代记录单细胞率、活率、团块占比三个数,画趋势图,结团苗头提前2天就能看到。
2. 换批血清或培养基先做5 mL小试48小时,别直接上反应器。
如果你正卡在克隆筛选或表达构建阶段,站内的引物设计工具能帮你快速拿到测序引物,密码子优化工具适合优化重轻链序列,蛋白可溶性优化工具则能在构建前预判表达风险——这些前置环节做扎实,后面细胞培养里的结团问题会少一半。