来源:Molecular characterization and aflatoxin biosynthetic gene profiles of Aspergillus flavus associated with maize and chili in Bangladesh(Fungal Biology)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
黄曲霉(Aspergillus flavus)产生的黄曲霉毒素是热带农业生态系统中严重的食品安全威胁。本研究从孟加拉国玉米和辣椒样品中分离获得38株黄曲霉,通过形态学多条件观测、ITS测序确认、13个SSR标记基因分型以及4个黄曲霉毒素合成通路基因(aflR、aflP/omt1、aflO/omtB、tub1)的PCR检测,系统揭示了该菌群体的表型可塑性、遗传多样性及产毒基因分布格局。研究发现群体遗传多样性高、寄主间分化低(K=3,高度混合),而aflP基因检出率在寄主和地区间变异显著,为黄曲霉毒素风险监测提供了基线分子信息。
研究背景
真菌毒素污染威胁全球粮食供应,热带与亚热带地区因气候利于真菌生长而尤为严重。黄曲霉毒素主要由黄曲霉和寄生曲霉产生,具有致癌、致畸和免疫抑制效应,其中黄曲霉毒素B1被国际癌症研究机构列为1类致癌物,长期暴露与肝细胞癌相关。全球约25%的农作物每年受真菌毒素污染,谷物、油料和豆类受影响最重。发展中国家因储藏条件、气候及监测基础设施有限,污染风险更高。黄曲霉是土壤-borne丝状真菌,也是黄曲霉毒素的主要产生菌,常侵染玉米、辣椒、花生、大麦和油料作物。本研究针对孟加拉国玉米与辣椒相关黄曲霉群体,整合形态学、SSR基因分型与产毒通路基因PCR谱,旨在解析其遗传多样性、群体结构及产毒基因的地理与寄主分布,为作物特异性监测策略提供分子基线。
研究方法
2.1 样品采集与分离
从孟加拉国不同田块采集表现明显霉变的玉米(Z. mays)和辣椒(C. annuum)样品,重点覆盖不同农业生态区和重要地区,如Khulna、Jashore、Kushtia、Satkhira、Jhinaidah和Chuadanga(补充表1)。每份样品200 g,无菌装入标记的聚乙烯袋中,冷藏运输直接送至Khulna大学植物保护实验室。取症状籽粒或荚果的植物组织切块(5 mm²),在1%次氯酸钠中表面消毒2 min,用无菌蒸馏水洗涤三次,接种于马铃薯葡萄糖琼脂(PDA)平板。平板于28 ± 2°C、漫射光下培养5–7天。形态上类似曲霉属的菌落经单孢分离进行继代培养,短期保存于4°C的PDA斜面,长期保存于−20°C的20%甘油中。
【数据】样品量:每份200 g;组织切块:5 mm²;表面消毒:1%次氯酸钠、2 min;洗涤:无菌蒸馏水3次;培养基:PDA;温度:28 ± 2°C;时间:5–7天;长期保存:20%甘油、−20°C
2.2 形态学鉴定
初步形态学鉴定使用PDA,选择该培养基是为了在统一实验室条件下实现所有分离株的一致回收和比较生长评估。培养物于28 ± 2°C、漫射光条件下培养5–7天。从菌落正面和反面记录菌落特征,包括色素沉着、质地、边缘形态、径向生长和产孢强度。显微结构采用乳酸酚棉蓝染色,在10×和40×放大倍数下检查。形态学鉴定依据Klich(2002)和Samson等(2014)的分类描述。由于本研究的主要目标是群体水平的比较分子特征分析而非正式分类修订,因此对所有分离株采用标准化的单一培养基方法。
【数据】培养基:PDA;温度:28 ± 2°C;时间:5–7天;光照:漫射光;染色:乳酸酚棉蓝;放大倍数:10×、40×
2.3 表型可塑性的形态学评估
所有形态学观察均使用每个分离株三个独立培养平板进行。为评估真菌分离株的表型可塑性,培养物在四种不同条件下培养,并在两个时间点从顶部和反面观察:12天(T_V_12D和R_V_12D)和30天(T_V_30D和R_V_30D)。在标准化光照下对菌落色素沉着进行视觉分析,并按五个离散颜色类别分类(绿色、乳白色、黄白色、粉色和黄绿色)。每个条件下所有分离株均归入一个颜色组。除色素评分外,还对质地、产孢密度、边缘规则性和色素强度等形态特征按描述性序数量表进行量化。该评估的具体评分量表见补充表2。
【数据】重复:每分离株3个平板;观察条件:4种(T_V_12D、R_V_12D、T_V_30D、R_V_30D);时间点:12天、30天;颜色类别:5类(绿色、乳白色、黄白色、粉色、黄绿色)
2.4 多样性指数与聚类分析
将分离株和条件的形状数量合并为性状矩阵,用于多样性和聚类分析。为衡量形态型丰富度和均匀度,根据观察到的表型谱中每种形态型的频率计算Shannon多样性指数(H′)。采用卡方(χ²)检验识别四种观察条件下形态型分布的显著差异,并在适用时用Cramer's V评估其强度。聚类分析使用标准化形态矩阵,通过Python的scikit-learn库进行k-means分析(k = 3),并计算轮廓系数以估计最佳聚类数。同时使用MEGA X进行层次聚类,采用欧几里得距离度量,并以1000次bootstrap重复在70%置信水平下验证聚类显著性。
【数据】聚类数:k = 3;bootstrap重复:1000次;置信水平:70%;距离度量:欧几里得距离;软件:Python scikit-learn、MEGA X
2.5 DNA提取、ITS扩增与测序
从PDA上培养7天的菌丝体中,使用真菌DNA试剂盒(Invitrogen,美国)提取基因组DNA,按制造商说明并加以修改以提高产量和纯度。DNA浓度和纯度用NanoDrop 2000c分光光度计(Thermo Scientific,美国)分析,DNA样品浓度调整至50 ng/μL。rDNA的内部转录间隔区(ITS1–5.8S–ITS2)使用通用引物ITS4(5′-TCCTCCGCTTATTGATATGC-3′)和ITS5(5′-GGAAGTAAAAGTCGTAACAAGG-3′)扩增。PCR产物在含溴化乙锭的1.0%琼脂糖凝胶上分离,紫外光下观察。约600 bp的扩增产物经纯化后进行Sanger测序。序列在NCBI GenBank中进行BLASTn搜索以进行种级鉴定。
【数据】菌龄:7天;DNA浓度:50 ng/μL;引物:ITS4、ITS5;凝胶:1.0%琼脂糖;扩增产物大小:约600 bp;测序方法:Sanger测序
2.6 黄曲霉毒素基因检测与多样性分析
#### 2.6.1 引物选择与基因靶标
黄曲霉毒素生物合成通路相关基因包括调控和结构组分。本研究靶向调控基因aflR、结构基因aflO(omtB)和aflP(omt1)以及管家基因tub1(β-微管蛋白)。引物选自Hashemi等(2007)。引物序列、预期扩增子大小和退火温度列于表1。tub1基因作为内部扩增对照。本研究采用基于PCR的选定黄曲霉毒素生物合成通路相关基因检测作为比较筛选的分子标记。使用色谱或免疫学方法直接定量黄曲霉毒素产量超出本研究范围。因此,检测到的基因谱应解释为与黄曲霉毒素生物合成通路相关的分子标记,而非对活性黄曲霉毒素产生的确认。
【数据】靶基因:aflR、aflO(omtB)、aflP(omt1)、tub1;引物来源:Hashemi等(2007);内参:tub1
#### 2.6.2 遗传多样性评估的SSR标记选择
使用13个简单序列重复(SSR)标记研究遗传多样性和寄主相关结构,这些标记已在黄曲霉群体研究中得到验证(Grubisha和Cotty,2009;Wang等,2012)。选择高PIC值、扩增稳定且条带清晰的引物。SSR位点覆盖不同基因组位置以实现广泛的基因组覆盖(补充表3)。
【数据】SSR标记数:13个;筛选标准:高PIC值、稳定扩增、清晰条带
#### 2.6.3 PCR扩增
PCR反应总体积20 μL,含50 ng模板DNA、0.5 μM各引物、200 μM dNTPs、1.5 mM MgCl₂、Taq缓冲液和1 U Taq聚合酶(Fermentas)。循环方案为:94°C初始变性5 min,随后40个循环的94°C 30 s、位点特异性退火(55–67°C)45 s、72°C延伸(时长取决于所需扩增子),最后72°C终延伸10 min。PCR反应产物在1%琼脂糖凝胶中电泳,紫外透射光下观察。根据条带的有(1)无(0)建立二元矩阵用于进一步分析。PCR扩增至少独立重复两次以确认扩增模式的重复性。
【数据】反应体积:20 μL;模板DNA:50 ng;引物浓度:0.5 μM;dNTPs:200 μM;MgCl₂:1.5 mM;Taq酶:1 U;初始变性:94°C、5 min;循环数:40;变性:94°C、30 s;退火:55–67°C、45 s;延伸:72°C;终延伸:72°C、10 min;凝胶:1%琼脂糖;重复次数:至少2次
2.7 数据矩阵构建、遗传多样性与系统发育分析
根据清晰一致条带的有(1)无(0),将SSR扩增产物评分为二元数据,生成分离株×标记矩阵。该矩阵用于计算遗传多样性参数,如多态位点百分比(%P)、多态信息含量(PIC)、Shannon指数(I)和Simpson多样性指数(D),使用GenAlEx v6.5和POPGENE v1.32。等位变异用存在-缺失热图和3D堆叠条形图对多态和单态位点进行图形化展示。所有统计分析和可视化在R v4.3.2中使用ggplot2、pheatmap和tidyverse包完成。38株分离株的遗传结构通过UPGMA或邻接法(NJ)聚类分析研究,使用简单匹配系数矩阵。系统发育树在MEGA X中构建。
【数据】软件:GenAlEx v6.5、POPGENE v1.32、R v4.3.2(ggplot2、pheatmap、tidyverse)、MEGA X;聚类方法:UPGMA、邻接法(NJ);系数:简单匹配系数
研究结果
3.1 黄曲霉的鉴定与分子确认
从不同田间地点采集的霉变玉米(Z. mays)和辣椒(C. annuum)样品中共回收50株真菌分离物。基于菌落形态和显微特征的初步鉴定表明,这些分离物表现出与曲霉属一致的特征。为确保准确的种级鉴定并排除近缘类群,随后使用内部转录间隔区(ITS)分析进行分子确认。使用通用引物ITS4和ITS5对分离物(25株来自辣椒,25株来自玉米)进行ITS区PCR扩增。所有扩增分离物均产生单一清晰约600 bp的扩增子,与曲霉属ITS区的预期大小相符,无非特异性扩增证据。代表性PCR产物经Sanger测序,针对NCBI核苷酸数据库的BLASTn分析显示与黄曲霉参考序列的序列同一性大于99%。基于ITS序列的系统发育重建进一步验证了该鉴定,所有研究分离株与已验证参考菌株紧密聚集在黄曲霉分支内,同时与包括黑曲霉、烟曲霉和土曲霉在内的其他近缘曲霉物种明显分离(补充图1)。基于ITS序列相似性、BLASTn确认和系统发育位置的综合结果,共38株分离物(20株来自辣椒,18株来自玉米)被最终鉴定为黄曲霉,保留用于下游形态学表征和遗传多样性分析。详细序列相似性结果见补充表4。
【数据】分离物总数:50株(辣椒25株、玉米25株);ITS扩增子:约600 bp;序列同一性:>99%;最终确认:38株(辣椒20株、玉米18株);引物:ITS4、ITS5
3.2 黄曲霉分离株的形态学鉴定
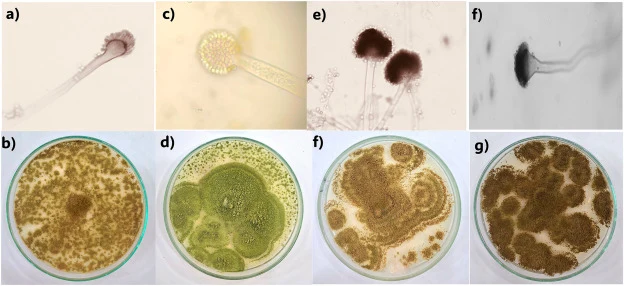
对38株黄曲霉分离株的显微和宏观检查显示出显著的表型多样性(图1)。分生孢子梗简单至高度分枝;分生孢子球形、椭圆形或梨形,排列成密集或稀疏的孢子头。分生孢子颜色为淡黄色至深棕色。在宏观层面,菌落在生长速率、表面质地(光滑至颗粒状)、边缘规则性和色素沉着方面表现出显著多样性。基于这些综合特征,共识别出14种不同的菌落形态型,范围从白黄色和黄绿色到深绿色菌落。这种广泛的变异凸显了黄曲霉分离株在实验室条件下存在的大量形态可塑性。
【数据】分离株数:38株;形态型数:14种;分生孢子形状:球形、椭圆形、梨形;分生孢子颜色:淡黄色至深棕色
3.3 菌落形态型的时间与空间多样性
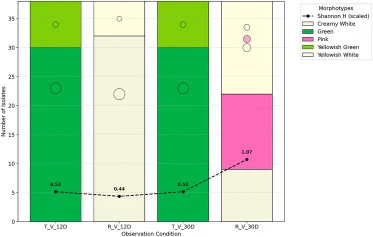
在四种不同观察条件下分析形态变异:12天的顶部和反面视图(T_V_12D、R_V_12D)以及30天的顶部和反面视图(T_V_30D、R_V_30D)。区分出五个主要颜色类别:绿色、乳白色、粉黄绿色和黄白色。在植物最初可见阶段(T_V_12D和T_V_30D),两组中均观察到绿色形态型,R_V_12D中观察到乳白色,R_V_30D中也观察到黄白色或变得更明显(图2)。R_V_30D仅显示粉色菌落,并可能检测到时间性色素变化。Shannon多样性指数(H′)在不同观察条件间变化,最低值记录于R_V_12D(H′ = 0.436),表明该阶段少数形态型占优势。最高多样性见于R_V_30D(H′ = 1.072),反映较老培养物中菌落表型的均匀度和多样化增加(补充表5)。
【数据】观察条件:4种(T_V_12D、R_V_12D、T_V_30D、R_V_30D);颜色类别:5类;H′最低:R_V_12D = 0.436;H′最高:R_V_30D = 1.072
3.4 基于形态学的曲霉分离株K-means聚类
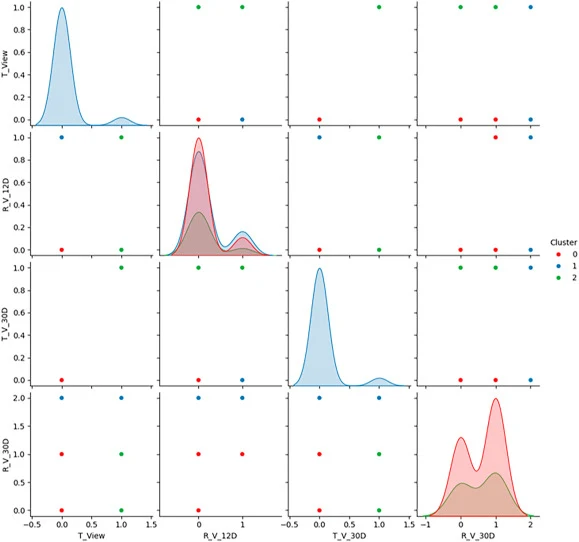
为进一步探索形态异质性,对四种观察条件(T_V_12D、R_V_12D、T_V_30D和R_V_30D)下记录的菌落特征进行K-means聚类。分析将分离株解析为三个形态聚类(k = 3),得到轮廓评分评估的支持(图3)。聚类0主要由T_V_12D和T_V_30D的绿色菌落组成,在R_V_12D有一些变异,R_V_30D为粉色或乳白色菌落;聚类1具有早期绿色和黄绿色菌落,在R_V_12D转变为乳白色或黄白色,而T_V平板培养一个月后整个平板覆盖绿色孢子;聚类2在T_VO表现为黄绿色天鹅绒样外观,随后在R_VO表现为乳白色非天鹅绒外观,随菌龄增加黄化并产孢。早期形态部分区分了分离株,即初级鉴定(R-V)的等效阶段但初级分离(T-V)的不同阶段,而后期阶段比其他因素更好地区分分离株,尤其是各自聚类分析中显示的分离株分化。
【数据】聚类数:k = 3;观察条件:4种;聚类评估:轮廓评分
3.5 黄曲霉毒素生物合成基因的检测与共现
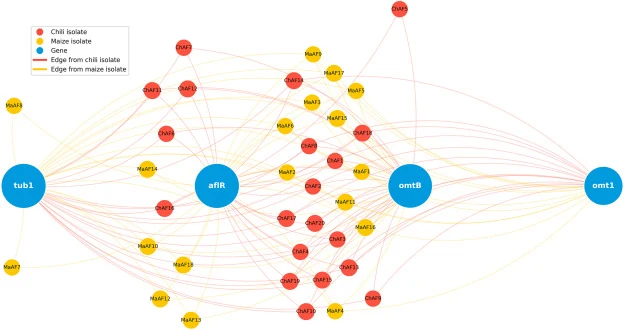
对黄曲霉毒素生物合成通路相关基因aflR(AflR)、aflO(omtB)、aflP(omt1)和tub1(Tub1)的PCR筛查揭示了分离株间的异质性分布模式(图4)。调控基因aflR和管家基因tub1在玉米和辣椒分离株中均以高频率检出。结构基因aflO在分离株中也广泛检出,而aflP扩增相对较低且变异更大,尤其在辣椒分离株中。基因共现模式的网络分析显示,缺乏aflP的分离株连通性降低,提示黄曲霉毒素生物合成基因簇相关区域可能存在变异或分化。所有靶基因的同时检出在玉米来源分离株中更常见(补充表6)。
【数据】靶基因:aflR、aflO、aflP、tub1;aflR和tub1:高频率检出;aflO:广泛检出;aflP:较低且变异大(尤其辣椒);同时检出:玉米来源更常见
3.6 产毒相关标记在寄主和地区间的基因流行模式
tub1基因在95%的辣椒分离株和94%的玉米分离株中检出,而aflR在两个寄主的所有分离株中均存在(图5)。观察到相当大的地区变异。例如,Bagerhat的分离株缺乏可检出的tub1,而Jhenaidah仅50%的分离株检出aflR。aflO基因在100%的辣椒分离株和83%的玉米分离株中检出。相比之下,aflP表现出最大变异,检出频率从Bagerhat的0%到Jhenaidah的100%不等。这些发现表明选定黄曲霉毒素生物合成相关基因的PCR检出频率存在寄主和地区特异性差异。
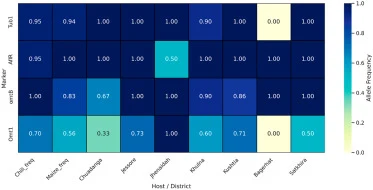
【数据】tub1:辣椒95%、玉米94%;aflR:两寄主均为100%;aflO:辣椒100%、玉米83%;aflP:Bagerhat 0%至Jhenaidah 100%;Jhenaidah aflR:50%
3.7 产毒标记的空间分布
地理参考散点图(图6)揭示了基因检出的空间趋势。中部区域(89.1–89.2°E,23.2–23.8°N)显示最高基因计数(黄色),而东南部靠近89.5°E和22.8°N的区域标记存在减少(紫色调),尤其是AflP和Tub1,提示选定黄曲霉毒素生物合成相关标记的潜在区域性检出频率降低。
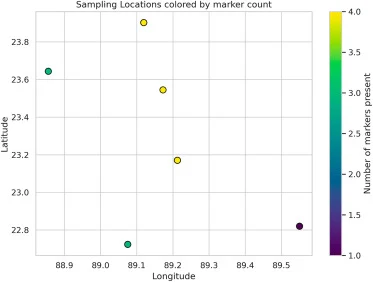
【数据】高基因计数区:89.1–89.2°E、23.2–23.8°N;低标记存在区:89.5°E、22.8°N附近;涉及标记:AflP、Tub1
3.8 SSR标记频率在寄主和地点间的分布
使用Circos图描述SSR标记扩增与寄主和地点的关系模式(图7)。标记频率在寄主和地理区域间存在变异,尽管包括aflR和tub1相关标记在内的若干位点在分离株中显示一致的高扩增频率。连接线厚度与相对频率强度成比例,百分比描绘在寄主或地点节点附近。基于地理来源,Jhenaidah、Jessore、Kushtia和Chuadanga的分离株对大多数标记显示相对较高的标记频率(80–100%),而Satkhira分离株对某些标记尤其是与aflP相关的标记显示低扩增频率。
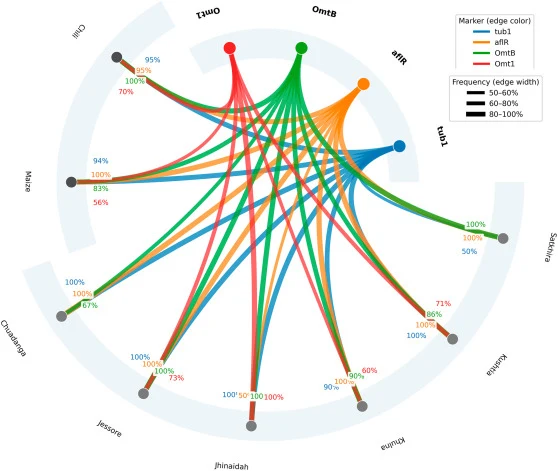
【数据】高频率地区:Jhenaidah、Jessore、Kushtia、Chuadanga(80–100%);低频率地区:Satkhira(尤其aflP相关标记);高频率位点:aflR、tub1相关标记
3.9 SSR标记扩增的凝胶电泳分析
可重复且多态的条带模式……(原文此处节选不完整)
【数据】原文未详述
3.10 基于SSR标记的遗传关系与群体结构
基于SSR标记数据的Jaccard距离热图和UPGMA树状图展示了玉米和辣椒来源黄曲霉分离株间的遗传关系(图9)。贝叶斯聚类(STRUCTURE)推断的群体结构显示,平均LnP(K)与推断聚类数K的关系确定K = 3为最佳遗传聚类数,STRUCTURE条形图展示了推断的祖先比例(图10)。群体内高度混合,表明寄主和地区间存在等位基因共享。
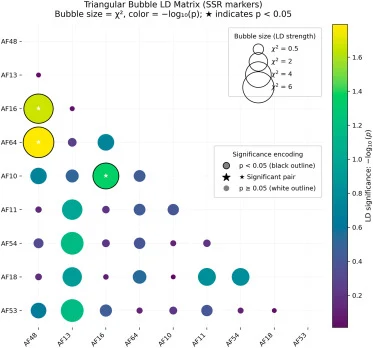
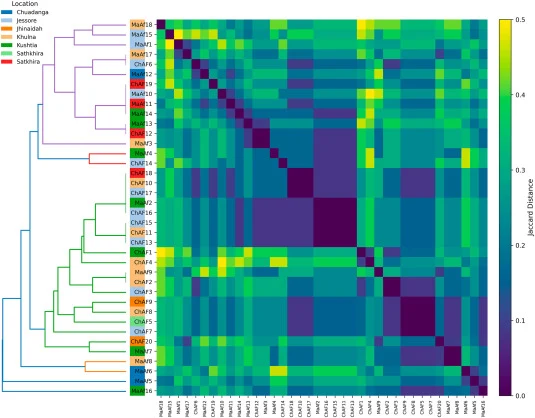
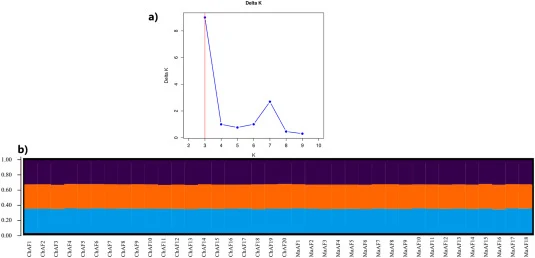
【数据】最佳聚类数:K = 3;聚类方法:贝叶斯聚类(STRUCTURE)、UPGMA;距离度量:Jaccard距离
讨论与解读
本研究对孟加拉国多个农业生态区玉米和辣椒相关黄曲霉群体进行了表型与分子综合表征,揭示了广泛的遗传多样性、寄主相关聚类模式以及产毒基因存在-缺失分布的异质性。这些发现凸显了热带种植体系中黄曲霉群体生物学的复杂性及其对黄曲霉毒素风险管理的意义。首先必须认识到,基于PCR的产毒基因检测并不代表黄曲霉毒素的活跃产生。部分非产毒黄曲霉分离株可能保留部分或全部产毒基因簇,却无法合成黄曲霉毒素。此外,引物结合区突变、基因缺失和单核苷酸多态性可降低PCR扩增效率,并相应影响健康分离株中的基因表达水平。因此,本研究结果应视为与产毒通路相关的比较分子谱,而非确定的产毒表型。形态学分析显示所有分离株间存在显著的表型可塑性差异。
编译者解读:该研究将群体遗传学(SSR分型、STRUCTURE聚类)与产毒通路基因PCR谱整合,方法组合务实、成本可控,适合资源有限地区的基线监测。其价值在于揭示了aflP检出率在寄主与地区间的剧烈波动(0–100%),提示单一基因标记筛查可能低估产毒风险。局限在于未直接定量黄曲霉毒素,基因型与产毒表型之间仍存缺口;后续若结合aflP序列多态性分析与毒素化学测定,可更精准地锁定高风险菌株。
参考来源
期刊:Fungal Biology, 2026
DOI: 10.1016/j.funbio.2026.101826
DOI: 10.1016/j.funbio.2026.101826