来源:Metabolic Engineering of Saccharomyces cerevisiae for Squalene-Enriched Biomass Production and Evaluation of the Protective Effects of Its Lysate against DSS-Induced Colitis(Journal of Agriculture and Food Research)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
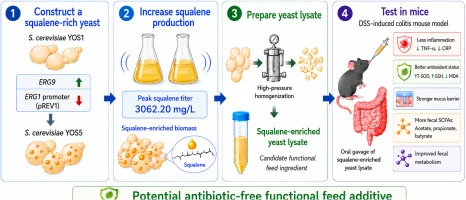
饲用蛋白资源短缺与抗生素禁用双重压力下,功能性饲料添加剂的开发迫在眉睫。本研究以高产法尼基焦磷酸(FPP)的酿酒酵母为底盘,通过过表达ERG9并弱化ERG1启动子,将代谢流导向角鲨烯合成,经发酵优化使角鲨烯滴度达3062.20 mg/L。随后以DSS诱导的小鼠急性结肠炎模型评价富含角鲨烯的酵母裂解物,发现其可显著缓解体重下降、疾病活动指数升高、结肠缩短及黏膜屏障损伤,并改善氧化应激与炎症因子水平,为工程化酵母生物质作为抗炎护肠功能性饲料原料提供了实验依据。
研究背景
全球人口预计2050年达约97亿,动物蛋白需求持续攀升,而豆粕、鱼糜等传统饲用蛋白原料受制于供应依赖、价格波动与环境足迹,难以满足现代畜牧生产需求。与此同时,全球范围内抗生素生长促进剂(AGPs)被限制乃至全面禁用,养殖业进入"后抗生素时代",肠道炎症、氧化应激与黏膜屏障功能障碍成为动物健康与生产性能的主要威胁。开发兼具营养供给与肠道稳态保护功能的非抗生素功能性饲料原料,对畜牧业可持续发展至关重要。
酵母生物质是成熟的单细胞蛋白来源,粗蛋白含量约40%–50%,氨基酸谱均衡,且培养周期短、水土足迹低、适于规模化发酵,被视为理想的替代蛋白源。然而,普通酵母生物质功能单一。角鲨烯作为甾醇与三萜类合成的关键前体,具有抗氧化、抗炎等生物活性,若能在酵母中过量积累,则可使生物质同时具备营养与功能双重属性。本研究即以此为切入点,对FPP高产酵母底盘进行代谢工程改造,并对所得富含角鲨烯的酵母裂解物开展动物实验评价。
研究方法
2.1 菌株、质粒与培养条件
本研究以按先前所述方案[24]构建的FPP高产酿酒酵母YOS1为亲本底盘菌株,用于衍生构建角鲨烯高产菌株。大肠杆菌TOP10用于质粒的构建、扩增与保存。基因编辑质粒基于CRISPR/Cas9载体pCut-1021b[25]构建,ERG9表达盒以pESC-Ura骨架组装。本研究所用引物列于表S1。酵母细胞常规培养于YPD培养基,含20 g/L蛋白胨、10 g/L酵母提取物和20 g/L葡萄糖。YPG培养基含20 g/L蛋白胨、10 g/L酵母提取物和40 g/L半乳糖。固体培养基补充20 g/L琼脂。酵母与大肠杆菌分别于30 °C和37 °C培养,液体培养振荡转速为220 rpm。
【数据】培养基:YPD(20 g/L蛋白胨、10 g/L酵母提取物、20 g/L葡萄糖)、YPG(20 g/L蛋白胨、10 g/L酵母提取物、40 g/L半乳糖);琼脂:20 g/L;温度:酵母30 °C、大肠杆菌37 °C;转速:220 rpm
2.2 产角鲨烯酿酒酵母菌株的构建
以酿酒酵母YOS1为底盘进行菌株改造。首先,将ERG9表达盒定点整合至先前报道的1021b基因组整合位点,获得过表达ERG9的酿酒酵母YOS2。随后,用选定的弱启动子或诱导型启动子替换天然ERG1启动子,以削弱角鲨烯向下游麦角甾醇生物合成的通量,促进胞内角鲨烯积累。以酿酒酵母YOS1提取的基因组DNA为模板扩增ERG9基因。在引物5′端添加同源臂,以便与线性化pESC-Ura发生同源重组。ERG9片段与线性化pESC-Ura载体经同源重组组装,组装混合物转化大肠杆菌TOP10。阳性转化子经菌落PCR与Sanger测序验证,获得重组质粒pESC-Ura-ERG9。以pESC-Ura-ERG9为模板扩增两端带1021b基因组位点同源臂的ERG9表达盒,与pCut-1021b共转化酿酒酵母YOS1。正确编辑的转化子经PCR与Sanger测序验证,随后在非选择性培养基中连续传代以消除Cas9编辑质粒。单菌落随后分别划线于YPD琼脂和与质粒携带的营养缺陷型筛选标记对应的选择性缺陷琼脂上。在YPD琼脂上生长而在选择性缺陷琼脂上不生长的菌落被选为质粒消除分离株,即获得工程菌株酿酒酵母YOS2。以底盘菌株YOS2为基础,构建靶向天然ERG1启动子区域的CRISPR编辑质粒pCut-pERG1。分别用三个组成型弱启动子(pREV1、pSAC6和pATP3)和两个半乳糖诱导型启动子(pGAL7和pGAL2)替换内源ERG1启动子,构建一系列启动子替换菌株,命名为酿酒酵母YOS5至YOS9。所有启动子替换菌株均经PCR与Sanger测序验证。对所有工程菌株进行摇瓶发酵筛选后,选择角鲨烯滴度最高的菌株用于后续发酵优化及动物实验样品制备。
【数据】底盘:酿酒酵母YOS1(FPP高产);整合位点:1021b;质粒:pCut-1021b、pESC-Ura、pCut-pERG1;启动子:pREV1、pSAC6、pATP3、pGAL7、pGAL2;菌株编号:YOS2、YOS5–YOS9;验证方法:菌落PCR、Sanger测序
2.3 发酵与角鲨烯定量
种子液制备:将目标菌株接种于YPD培养基,30 °C、200 rpm振荡培养24 h。种子液以16%(v/v)接种量转接至YPG发酵培养基,30 °C、220 rpm培养96 h。除另有说明外,所有发酵实验均至少进行三个独立生物学重复。角鲨烯提取:取1 mL发酵液,4 °C、5,000 × g离心10 min收集菌体。菌体用无菌超纯水洗涤两次,转入含无菌钢珠的管中,用乙酸乙酯重悬至终体积1 mL。以65 Hz低温珠磨20 min破碎细胞以提取胞内代谢物。样品随后于4 °C、12,000 × g离心10 min,收集上清用于GC-FID分析。角鲨烯浓度采用Agilent 7890B气相色谱仪结合GC-FID、配备HP-5毛细管柱定量。进样口与检测器温度分别设为300 °C和350 °C。柱温箱程序如下:160 °C初始保持5 min,以10 °C/min线性升温至325 °C,325 °C最终保持8 min。高纯氮气为载气,恒定流速1 mL/min,分流比10:1。以10至4,000 mg/L系列标准品建立外标校准曲线。角鲨烯滴度以每升发酵液的毫克数(mg/L)表示。
【数据】接种量:16%(v/v);温度:30 °C(培养)、4 °C(离心)、进样口300 °C、检测器350 °C;转速:种子200 rpm、发酵220 rpm;时间:种子24 h、发酵96 h、珠磨20 min、离心10 min、柱温程序5 min+升温+8 min;频率:65 Hz;离心力:5,000 × g、12,000 × g;体积:1 mL;流速:1 mL/min;分流比:10:1;标准曲线范围:10–4,000 mg/L;生物学重复:≥3
2.4 发酵条件优化
为满足后续动物实验的剂量需求,并避免因粗裂解物中角鲨烯浓度不足导致灌胃体积过大,对发酵培养基与培养参数进行系统优化。基线发酵条件定义如下:接种量16%(v/v)、半乳糖40 g/L、蛋白胨20 g/L、酵母提取物10 g/L、30 °C、220 rpm振荡培养、发酵时长96 h。采用单因素逐一实验评价接种量、碳源组成、碳源浓度、酵母提取物与蛋白胨比例、总有机氮浓度及无机盐添加对角鲨烯产量的影响。接种量优化:测试2%、9%、16%、23%和30%(v/v)接种量。碳源组成优化:以40 g/L半乳糖为唯一碳源,与含20 g/L半乳糖分别搭配20 g/L果糖、蔗糖、甘油或葡萄糖的双元碳源混合物比较。碳源浓度优化:评价20、40、60、80和100 g/L半乳糖浓度。氮源优化:测试酵母提取物与蛋白胨比例2:1、1:1、1:2、1:3和1:4(w/w),并将酵母提取物加蛋白胨总浓度从10 g/L进一步调整至50 g/L。无机盐筛选:发酵培养基分别单独添加ZnSO4、MgSO4、CuSO4、CaCl2、MnSO4、NaCl、K2HPO4或CH3COONH4,终浓度均为0.2 g/L。对初筛确定的关键添加物进一步在0、0.2、0.4和0.6 g/L进行浓度梯度优化。基于单因素结果,选取总有机氮浓度、MnSO4用量和CaCl2用量三个变量设计L9(33)正交试验(表S2)。
【数据】接种量:2%、9%、16%、23%、30%(v/v);半乳糖:20、40、60、80、100 g/L;双元碳源:20 g/L半乳糖+20 g/L果糖/蔗糖/甘油/葡萄糖;酵母提取物:蛋白胨:2:1、1:1、1:2、1:3、1:4(w/w);总氮浓度:10–50 g/L;无机盐:ZnSO4、MgSO4、CuSO4、CaCl2、MnSO4、NaCl、K2HPO4、CH3COONH4各0.2 g/L;浓度梯度:0、0.2、0.4、0.6 g/L;正交设计:L9(33);温度:30 °C;转速:220 rpm;时间:96 h
2.5 动物给药用酵母裂解物的制备
基于前期观察——完整富含角鲨烯酵母细胞灌胃对DSS诱导结肠炎保护作用有限——正式动物实验采用酵母裂解物作为干预样品。以亲本FPP高产酿酒酵母YOS1来源的裂解物作为底盘裂解物对照,以扣除酵母细胞基质与亲本遗传背景的影响。实验样品由YOS1与YOS5菌株在优化发酵条件下培养制备。发酵结束后,4 °C、5,000 × g离心10 min收获酵母细胞,用无菌生理盐水洗涤两次。将一定体积发酵液收获的菌体重悬于相当于原发酵液体积15.3%的无菌生理盐水中,进行高压……
【数据】离心:5,000 × g、4 °C、10 min;洗涤:无菌生理盐水2次;重悬体积比:原发酵液体积的15.3%;菌株:YOS1、YOS5;原文节选在此处中断,后续高压处理参数原文未详述
研究结果
3.1 产角鲨烯酿酒酵母工程菌株的构建与筛选
角鲨烯合酶Erg9催化酵母中FPP向角鲨烯的关键转化[28]。为增强通往角鲨烯生物合成的代谢流,通过在1021b位点基因组整合ERG9过表达盒对FPP高产底盘酿酒酵母YOS1进行改造,获得酿酒酵母YOS2。角鲨烯标准品线性校准曲线(图S2)在10–4,000 mg/L浓度范围内线性良好,相关系数R² = 0.99878,证实其适用于基于GC-FID的角鲨烯定量。如图1a所示,ERG9过表达使角鲨烯滴度从底盘菌株YOS1的266 mg/L显著提高至YOS2的1075 mg/L,同时细胞干重(DCW)显著提升。这些结果证实,增强Erg9催化的FPP向角鲨烯代谢流,是促进高FPP产量酵母底盘角鲨烯积累的有效策略。
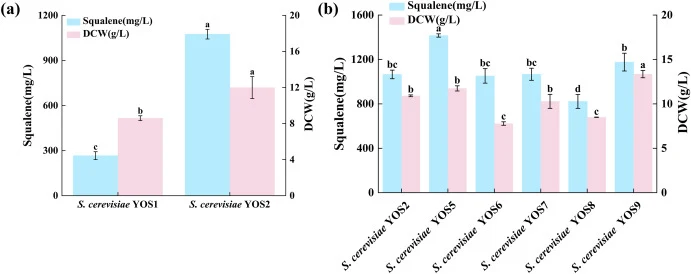
Erg1在麦角甾醇生物合成途径中催化角鲨烯转化为2,3-氧化角鲨烯,ERG1为维持甾醇生物合成与酵母正常生长所必需[21]。因此,用选定启动子替换天然ERG1启动子,以筛选在保持生物质产量的同时增强角鲨烯积累的变体。携带不同ERG1启动子替换的YOS2衍生菌株间角鲨烯滴度存在显著差异(p < 0.05,图1b)。在测试的启动子变体中,携带pREV1(YOS5)和pGAL2(YOS9)的菌株角鲨烯滴度分别提高至1415.7 mg/L和1226.1 mg/L,相对亲本菌株YOS2分别提高31.69%和14.06%。其中YOS5(pREV1)在所有工程菌株中角鲨烯滴度最高,同时细胞干重略有下降。相反,携带pSAC6、pGAL7和pATP3替换的菌株角鲨烯产量低于YOS2。然而,本研究未评估ERG1表达、麦角甾醇含量与生长动力学,裂解物组成的潜在变化尚需进一步表征。这些结果提示,ERG1启动子的强度与调控特性关键性影响角鲨烯积累与下游甾醇生物合成之间的平衡。ERG1削弱不当可能扰乱细胞甾醇稳态或生长,从而限制最终角鲨烯产量。相比之下,pREV1替换似乎在ERG1削弱与细胞适应性之间提供了有利平衡,在不严重损害下游麦角甾醇途径的前提下增强角鲨烯储存。因此,选择携带pREV1替换、角鲨烯滴度更优的酿酒酵母YOS5用于后续发酵优化与动物干预样品制备。
【数据】标准曲线范围:10–4,000 mg/L;R² = 0.99878;YOS1滴度:266 mg/L;YOS2滴度:1075 mg/L;YOS5滴度:1415.7 mg/L(+31.69%);YOS9滴度:1226.1 mg/L(+14.06%);显著性:p < 0.05
3.2 发酵参数的系统优化
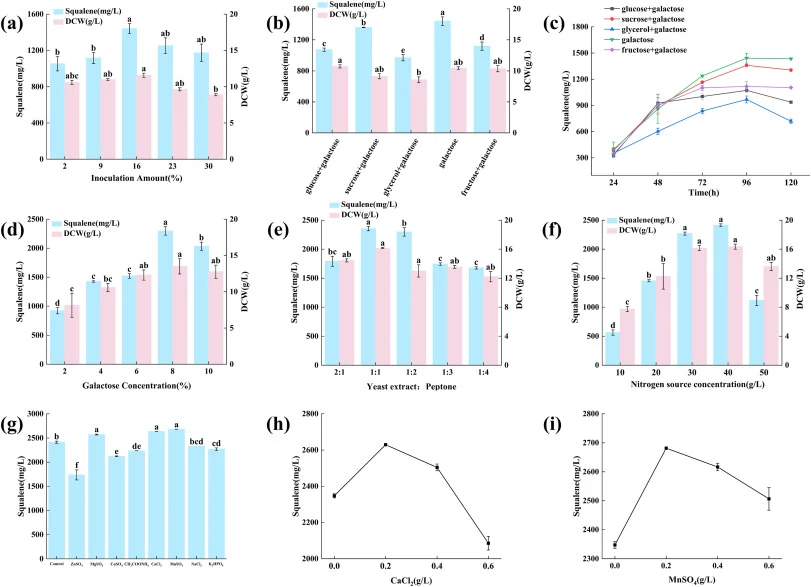
为提高角鲨烯产量、从而减少灌胃目标剂量所需的酵母生物质量,进一步优化YOS5的发酵条件(图2)。角鲨烯滴度对接种比例呈单峰响应,在16%(v/v)接种比例下达到最大值1441.3 mg/L。该结果表明适中的初始细胞密度可能在生物质增殖与角鲨烯生物合成之间提供合适平衡。碳源筛选显示,半乳糖与葡萄糖双元碳源混合物产生较高的细胞干重10.73 g/L,但角鲨烯滴度较低,为1044 mg/L。相反,40 g/L半乳糖作为唯一碳源产生较高的角鲨烯滴度1444 mg/L。该结果可能归因于葡萄糖介导的碳分解代谢阻遏,其可削弱工程生物合成模块的半乳糖诱导型表达并限制FPP向角鲨烯的通量[29]。这些发现表明,生物质增加未必转化为更高的角鲨烯滴度,尤其当碳流优先导向细胞增殖而非产物积累时。半乳糖浓度进一步优化显示,80 g/L半乳糖使角鲨烯滴度与细胞干重均达最大,分别为2298.3 mg/L和13.50 g/L。100 g/L半乳糖浓度下角鲨烯产量下降,可能与过量碳供应引起的渗透胁迫或代谢负担有关。氮源优化确定酵母提取物与蛋白胨质量比1:1为最优氮源组成,角鲨烯滴度达2355.5 mg/L。总有机氮源浓度进一步优化显示40 g/L为最优,角鲨烯滴度达2414.0 mg/L。这些结果提示,适宜的氮供应同时支持细胞生长与角鲨烯生物合成能力,而氮不足或过量均可能限制产物积累。无机盐筛选显示,添加0.2 g/L MgSO4、CaCl2或MnSO4使角鲨烯产量分别显著提高至2572.7 mg/L、2634.1 mg/L和2681.5 mg/L,其中MnSO4刺激效应最明显。后续浓度梯度实验确定MnSO4与CaCl2的最佳添加水平均为0.2 g/L。Mn2+可能参与酶催化与胞内抗氧化防御,从而改善工程菌株发酵过程中的代谢稳定性[30]。Ca2+可能有助于膜与细胞壁完整性、增强胁迫耐受性,并间接促进角鲨烯积累[31]。然而,过量无机盐添加可能造成离子胁迫[32],这或可解释较高离子浓度下观察到的角鲨烯产量下降。基于单因素筛选结果,采用L9(33)正交试验优化三个关键变量:总有机氮源浓度、MnSO4浓度和CaCl2浓度(表S4)。九个正交组角鲨烯滴度范围为2117.71至3062.20 mg/L,其中第二实验组产量最高。极差分析显示,三因素对角鲨烯产量的相对影响顺序为:总有机氮源浓度 > CaCl2浓度 > MnSO4浓度。正交试验得出的最优水平为总有机氮源40 g/L、MnSO4 0.2 g/L、CaCl2 0.2 g/L。结合先前优化的接种比例、半乳糖浓度和酵母提取物与蛋白胨比例,优化发酵体系使YOS5角鲨烯滴度峰值达3062.20 mg/L。这些结果证明,发酵参数的系统优化大幅增强了工程酵母菌株的角鲨烯积累。
【数据】接种量:16%(v/v)→1441.3 mg/L;双元碳源(半乳糖+葡萄糖):DCW 10.73 g/L、滴度1044 mg/L;半乳糖40 g/L:滴度1444 mg/L;半乳糖80 g/L:滴度2298.3 mg/L、DCW 13.50 g/L;半乳糖100 g/L:产量下降;酵母提取物:蛋白胨=1:1:滴度2355.5 mg/L;总氮40 g/L:滴度2414.0 mg/L;MgSO4 0.2 g/L:2572.7 mg/L;CaCl2 0.2 g/L:2634.1 mg/L;MnSO4 0.2 g/L:2681.5 mg/L;正交组范围:2117.71–3062.20 mg/L;最优组合:总氮40 g/L、MnSO4 0.2 g/L、CaCl2 0.2 g/L;峰值滴度:3062.20 mg/L
3.3 富含角鲨烯酵母裂解物改善DSS诱导结肠炎小鼠的临床病理表现
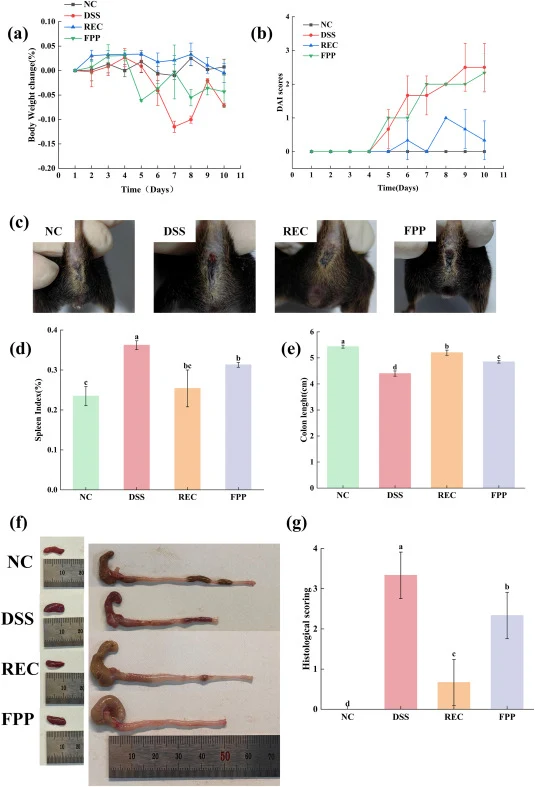
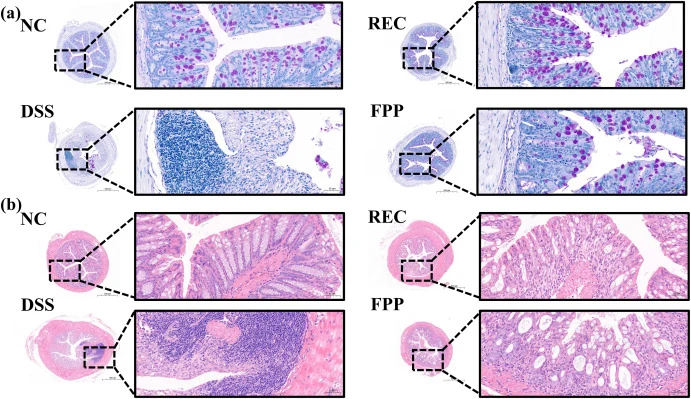
在0.4 g/kg体重的目标剂量下,每只20 g小鼠每日需角鲨烯8 mg,相当于约2.61 mL优化培养物收获的生物质,并浓缩至0.4 mL灌胃剂量。体重变化与DAI评分是评价DSS诱导急性结肠炎严重程度的常用指标[33,34]。与NC组相比,DSS组小鼠在实验期间出现显著体重下降(图3a)。FPP底盘裂解物组仅轻度减轻体重下降,而REC组体重维持优于FPP组。与上述变化一致,DSS处理……
【数据】目标剂量:0.4 g/kg体重;小鼠体重:20 g;每日角鲨烯需求:8 mg;培养物体积:2.61 mL;灌胃体积:0.4 mL;分组:NC、DSS、FPP、REC;原文节选在此处中断,后续结果数据原文未详述
讨论与解读
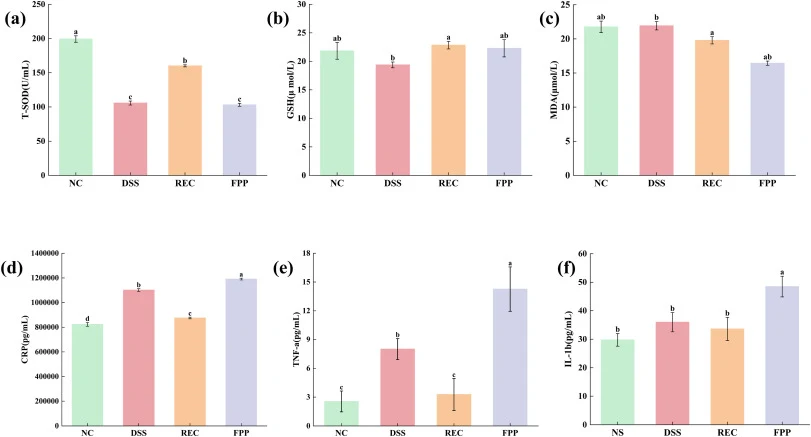
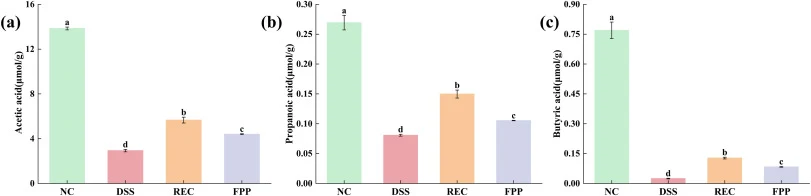
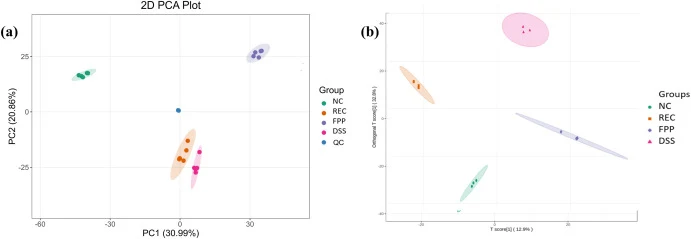
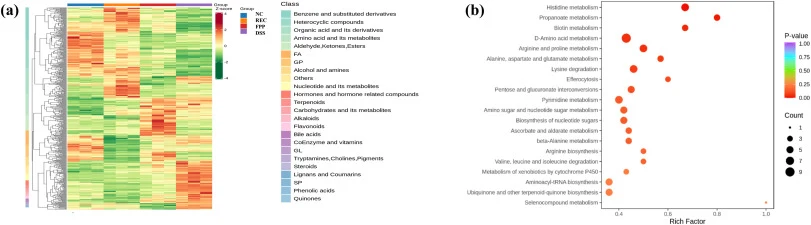
本研究对FPP高产酿酒酵母底盘进行代谢工程改造,通过将代谢流导向角鲨烯生物合成并减少其向下游甾醇转化,增强了角鲨烯积累。所得富含角鲨烯的酵母生物质在DSS诱导急性结肠炎小鼠模型中表现出改善的肠道保护作用,凸显其作为生物活性功能性饲料原料的潜力。富含角鲨烯酵母裂解物的有益效应表现为炎症反应减轻、氧化应激状态改善、粪便短链脂肪酸产量提高及肠道代谢稳态恢复。这些发现表明,工程化酵母生物质可超越单纯蛋白源的角色,为无抗生素动物营养中功能性代谢物递送提供可持续平台。尽管前景可期,仍需进一步研究评价长期饲喂效应、最佳添加水平、生物安全性、微生物群介导机制及在目标畜禽物种中的功效。在实际生产条件下的验证将是把富含角鲨烯酵母生物质转化为商业功能性饲料添加剂的关键。
编译者解读:该研究走的是"底盘改造—发酵优化—动物验证"的经典合成生物学落地路径,选择FPP节点而非从上游MVA途径大动干戈,改造幅度克制却有效;用弱启动子pREV1替换ERG1而非敲除,保住了细胞生长与甾醇稳态的底线,这种"减法式"通量重定向值得借鉴。局限也很明显:ERG1表达与麦角甾醇含量未测,裂解物成分变化未表征,动物实验仅见急性模型短期数据,长期饲喂与畜禽靶动物验证仍是空白。从产业角度看,3062.20 mg/L的滴度已具备一定放大潜力,但裂解物制备与灌胃剂量的折算逻辑提示下游浓缩成本不可忽视。
参考来源
期刊:Journal of Agriculture and Food Research, 2026
DOI: 10.1016/j.jafr.2026.103432
DOI: 10.1016/j.jafr.2026.103432