来源:A Frameshift Mutation Causes Loss of Polygalacturonase Activity in Saccharomyces cerevisiae BCRC21447 and Its Restoration Enables Efficient Juice Clarification(Biocatalysis and Agricultural Biotechnology)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
酿酒酵母中聚半乳糖醛酸酶活性常与PGU1基因相关,但多数菌株携带该基因却不表现活性。本研究在S. cerevisiae BCRC21447的PGU1基因第1024位发现一个胸腺嘧啶插入,造成移码突变、酶活丧失。作者用质粒过表达修正后的PGU1,成功恢复酶活,并确定最优产酶条件为pH 4.5、25 °C、48 h;1%(w/v)冻干粗酶粉处理24 h后,苹果汁透光率由68.67%升至90.75%。
研究背景
果胶是高等植物中层和初生细胞壁中的结构性杂多糖,主链主要由α-1,4连接的D-半乳糖醛酸构成。在果汁提取、过滤与澄清过程中,果胶的黏度和凝胶特性会抬高浊度与黏度,给食品工业带来麻烦。果胶酶能降解果胶物质,降低果汁黏度和浊度,因而广泛用于果汁澄清、提取以及葡萄酒等发酵饮料生产。
目前食品工业用的商品果胶酶多由黑曲霉生产,其分泌的果胶酶系成分复杂,包含聚半乳糖醛酸酶、果胶裂解酶和果胶甲酯酶等。问题在于果胶甲酯酶会催化果胶脱甲酯基,释放甲醇——食品加工中不受欢迎的副产物,具有潜在毒性。此外,丝状真菌来源的果胶甲酯酶常与其他果胶酶共存,表现出……(原文此处节选截断)。酿酒酵母作为食品安全级宿主,其内源聚半乳糖醛酸酶主要由PGU1基因编码,但许多菌株虽有该基因却检测不到酶活,这一矛盾成为本研究的切入点。
研究方法
2.1 菌株与培养条件
本研究所用菌株汇总于表1。大肠杆菌TOP10用于质粒扩增,于37 °C在Luria–Bertani(LB)培养基中培养。转化后的大肠杆菌培养基补充100 mg/L氨苄青霉素。S. cerevisiae BCRC21447于30 °C在YPD培养基中培养。转化后的酿酒酵母于补充200 mg/L G418的YPD培养基中培养。
【数据】菌株:E. coli TOP10、S. cerevisiae BCRC21447;抗生素:氨苄青霉素100 mg/L、G418 200 mg/L;温度:大肠杆菌37 °C、酵母30 °C;培养基:LB、YPD
2.2 质粒构建
本研究所用质粒与引物分别汇总于表1和表S1。构建质粒pPGU1以在酿酒酵母中过表达PGU1。质粒pBCo1作为模板,用于PCR扩增含KanMX和AmpR抗性基因的DNA片段。PCR扩增使用热循环仪(Thermo Fisher Scientific,美国马萨诸塞州沃尔瑟姆)进行。每个50 μL反应体系含1 μL正向引物(10 μM)、1 μL反向引物(10 μM)、1 μL模板DNA(500 ng/μL)、22 μL双蒸水和25 μL PrimeSTAR Max Premix(Takara Bio Inc.,日本滋贺)。PCR程序为:94 °C初始变性30 s;随后35个循环,每个循环94 °C变性30 s、按引物熔解温度(Tm)优化的退火温度退火30 s、72 °C延伸1 min 20 s;最后72 °C终延伸7 min,之后保持于10 °C。含PGU1基因并融合His标签的片段由Integrated DNA Technologies(美国爱荷华州科拉尔维尔)合成。KanMX、AmpR和PGU1三个片段用Gibson Assembly组装,生成pPGU1质粒。组装后的质粒经热激转化进大肠杆菌TOP10扩增,质粒DNA用Zymoclean™ Gel DNA Recovery Kit(Zymo Research,美国加州尔湾)纯化。
【数据】反应体积:50 μL;引物浓度:10 μM;模板DNA:500 ng/μL(1 μL);退火:按Tm优化、30 s;延伸:72 °C、1 min 20 s;循环数:35;终延伸:72 °C、7 min;抗性基因:KanMX、AmpR
2.3 转化
采用醋酸锂–电穿孔法(Chen and Lin, 2022)将pPGU1质粒转化进S. cerevisiae BCRC21447。酿酒酵母先在1 mL YPD肉汤中30 °C预培养24 h,取80 μL培养物接种至20 mL YPD肉汤,30 °C培养至OD600达0.5–1.2。4 °C、3,500 rpm离心5 min收集细胞,用冰冷无菌水洗涤,重悬于含1 M LiAc、10× TAE缓冲液和1 M山梨醇的溶液中。悬液30 °C孵育45 min,随后加入100 μL 1 M二硫苏糖醇(DTT),继续孵育15 min。离心收集细胞,用1 M山梨醇洗涤两次,最终重悬于100 μL 1 M山梨醇中制备感受态细胞。转化时,取50 μL感受态细胞与500 ng pPGU1混合,转入电击杯,用BIO-RAD MicroPulser电穿孔仪(Bio-Rad Laboratories,美国加州赫拉克勒斯)以1.25 kV电击。电击后加入1 mL YPD肉汤和1 mL山梨醇,30 °C恢复培养。转化子在含200 μg/mL G418的YPD琼脂平板上筛选,30 °C培养48 h。阳性菌落经菌落PCR确认。
【数据】预培养:1 mL YPD、30 °C、24 h;接种量:80 μL入20 mL;OD600:0.5–1.2;离心:3,500 rpm、5 min、4 °C;LiAc:1 M;DTT:100 μL、1 M、15 min;电击:1.25 kV;质粒用量:500 ng;G418筛选:200 μg/mL、30 °C、48 h
2.4 蛋白表达检测
蛋白浓度用Bradford法测定,以牛血清白蛋白(BSA)为标准品。蛋白样品与4×上样缓冲液及β-巯基乙醇混合,100 °C热变性10 min,在4–12% NuPAGE™ Bis-Tris Mini Protein Gels(Thermo Fisher Scientific,美国沃尔瑟姆)上分离。蛋白条带用考马斯亮蓝染色(Invitrogen,美国加州卡尔斯巴德)显色。Western blot分析中,蛋白转印至聚偏二氟乙烯(PVDF)膜,封闭后与抗6×His标签抗体(1:2,000;Invitrogen,美国加州卡尔斯巴德)孵育过夜,随后与山羊抗小鼠IgG抗体(1:15,000;Invitrogen,美国加州卡尔斯巴德)孵育。免疫反应信号用BCIP/NBT底物溶液(Nacalai Tesque Inc.,日本京都)检测。
【数据】热变性:100 °C、10 min;凝胶:4–12% Bis-Tris;一抗:抗6×His、1:2,000、过夜;二抗:山羊抗小鼠IgG、1:15,000;检测底物:BCIP/NBT
2.5 聚半乳糖醛酸酶活性测定
酵母细胞在1 mL YPD肉汤中30 °C培养24 h,12,000 rpm离心1 min,取上清测定聚半乳糖醛酸酶活性。定性分析采用基于前人方法(Louw et al., 2010)改良的平板法。将上清点样于含1%聚半乳糖醛酸、2%琼脂和50 mM柠檬酸–柠檬酸钠缓冲液(pH 4.5)的聚半乳糖醛酸(PGA)琼脂平板上。平板30 °C孵育24 h,随后用6 N HCl覆盖。透明圈的形成视为聚半乳糖醛酸酶活性的标志。定量分析采用3,5-二硝基水杨酸(DNS)法(Zhou et al., 2011),以半乳糖醛酸为标准品。50 μL培养上清与450 μL含0.25%聚半乳糖醛酸的50 mM柠檬酸–柠檬酸钠缓冲液(pH 4.5)混合,50 °C孵育1 h。释放的还原糖通过540 nm吸光度测定。一单位(U)聚半乳糖醛酸酶活性定义为50 °C下每分钟释放1 μmol还原糖的酶量,以U/mg蛋白表示。
【数据】培养:1 mL YPD、30 °C、24 h;离心:12,000 rpm、1 min;PGA平板:1%聚半乳糖醛酸、2%琼脂、50 mM柠檬酸缓冲液pH 4.5;孵育:30 °C、24 h;显色:6 N HCl;DNS反应:50 μL上清+450 μL 0.25% PGA、50 °C、1 h;检测波长:540 nm;酶活定义:50 °C每分钟释放1 μmol还原糖为1 U
2.6 产酶影响因素
评估培养温度、pH和培养时间对聚半乳糖醛酸酶生产的影响。菌株分别在15、20、25、30、33和37 °C培养48 h以确定最适温度;在相同培养时长下测试pH 4至9的培养基。时间进程实验中,菌株在pH 4.5、30 °C培养,于0、6、12、36、48、72和96 h取样。离心后收集培养上清,用DNS法测定聚半乳糖醛酸酶活性。
【数据】温度梯度:15、20、25、30、33、37 °C;时间:48 h;pH范围:4–9;时间进程取样点:0、6、12、36、48、72、96 h;时间进程条件:pH 4.5、30 °C
2.7 苹果汁澄清
新鲜苹果洗净、去核、切块。将100 g苹果组织与50 mL水混合打浆,经网筛过滤制得苹果汁。粗酶制剂以1%、5%和8%浓度加入30 mL苹果汁,50 °C孵育。于0、30、60 min和24 h取样,随后1,000 × g离心10 min。上清用定性滤纸过滤,用分光光度计于650 nm测定果汁浊度。澄清效率依据处理前后浊度值按以下公式计算(Yin et al., 2017)。
【数据】苹果组织:100 g;加水:50 mL;果汁体积:30 mL;酶浓度:1%、5%、8%;孵育温度:50 °C;取样时间:0、30、60 min、24 h;离心:1,000 × g、10 min;检测波长:650 nm
2.8 统计分析
数据以三次独立实验的平均值±标准差(SD)表示。统计差异用Student's t检验评估,p < 0.05视为具有统计学显著性。
【数据】重复数:3次独立实验;统计方法:Student's t检验;显著性阈值:p < 0.05
研究结果
3.1 PGU1基因序列分析
前人研究已表明,尽管多数酿酒酵母菌株携带编码聚半乳糖醛酸酶的PGU1基因,却往往检测不到聚半乳糖醛酸酶活性(Jia and Wheals, 2000)。对S. cerevisiae BCRC21447的PGU1基因进行序列分析,鉴定出两个单核苷酸多态性(SNP)和一个单核苷酸插入。720 bp处的C-to-T替换为同义突变,不改变所编码的苯丙氨酸残基;877 bp处的A-to-G替换导致氨基酸由丝氨酸变为甘氨酸。此外,1024 bp处插入一个额外的胸腺嘧啶,造成移码突变,改变下游开放阅读框,预测产生异常蛋白序列(图S2)。
【数据】突变位点:720 bp C→T(同义)、877 bp A→G(Ser→Gly)、1024 bp插入T(移码);SNP数:2个;插入:1个核苷酸
3.2 质粒构建与菌株转化验证
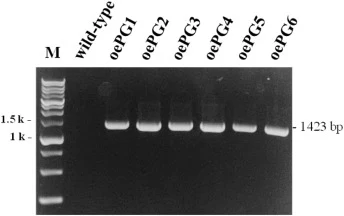
为确定该移码突变是否导致聚半乳糖醛酸酶活性丧失,构建了去除插入胸腺嘧啶的修正PGU1序列,以恢复原始开放阅读框。pPGU1质粒用Gibson Assembly构建,在大肠杆菌TOP10中扩增,并经PCR、琼脂糖凝胶电泳和DNA测序验证。电穿孔导入S. cerevisiae BCRC21447后,在含G418的YPD琼脂平板上筛选转化子。菌落PCR确认存在预期的1,423-bp片段(图1)。获得6个验证过的转化子,命名为oePG1至oePG6,用于后续分析。
【数据】预期片段大小:1,423 bp;转化子数量:6个(oePG1–oePG6);筛选抗生素:G418
3.3 蛋白表达检测
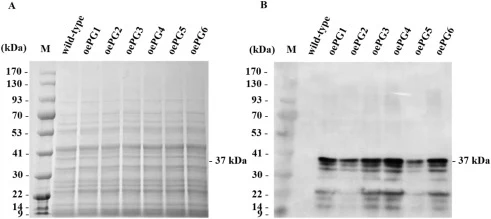
蛋白表达经SDS–PAGE和Western blot分析。PGU1基因编码由361个氨基酸组成的聚半乳糖醛酸酶,预测分子量约37.288 kDa。SDS–PAGE虽未检测到与预测分子量对应的明显蛋白条带,但Western blot在转化子中检测到约37 kDa的特异性免疫信号,野生型菌株则无。所有转化子中,oePG4的目标蛋白信号最强,表明其重组PGU1表达水平最高(图2)。因此选取oePG4进行后续表征实验。
【数据】蛋白长度:361个氨基酸;预测分子量:37.288 kDa;检测信号:约37 kDa;最强表达菌株:oePG4
3.4 聚半乳糖醛酸酶活性测定
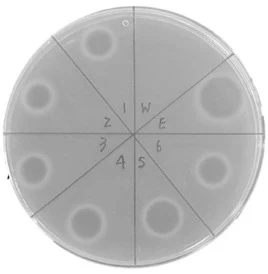
用聚半乳糖醛酸(PGA)琼脂平板评估聚半乳糖醛酸酶活性,商品果胶酶作为阳性对照。野生型菌株在PGA琼脂平板上不产生可检测的透明圈,表明无可检测的聚半乳糖醛酸酶活性。相反,所有重组菌株(oePG1–oePG6)在PGA琼脂上均形成明显透明圈,证明成功表达了能降解聚半乳糖醛酸的功能性PGU1(图3)。重组菌株酶活的恢复表明,修正移码突变成功恢复了S. cerevisiae BCRC21447中PGU1的功能。
【数据】野生型:无透明圈;重组菌株:oePG1–oePG6均有透明圈;阳性对照:商品果胶酶
3.5 温度、pH和培养时间对产酶的影响
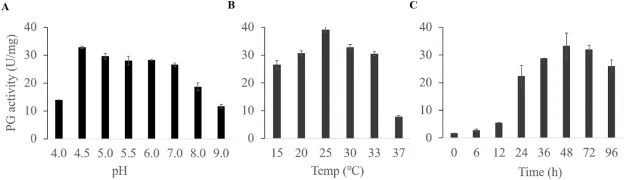
为优化聚半乳糖醛酸酶生产,评估了培养pH、温度和孵育时间对oePG4菌株聚半乳糖醛酸酶活性的影响。培养上清中的酶活用DNS法测定(图4)。pH 4.5时观察到最大酶活(32.82 ± 1.18 U/mg)。所试温度中,25 °C产酶最高(39.21 ± 1.06 U/mg)。酶活随时间增加,培养48 h后达最大值(33.37 ± 4.59 U/mg),96 h时仍相对稳定(31.97 ± 1.61 U/mg)。据此确定oePG4产聚半乳糖醛酸酶的最优培养条件为pH 4.5、25 °C、培养时间48 h,后续实验均采用此条件。
【数据】最适pH:4.5(32.82 ± 1.18 U/mg);最适温度:25 °C(39.21 ± 1.06 U/mg);最适时间:48 h(33.37 ± 4.59 U/mg);96 h:31.97 ± 1.61 U/mg
3.6 苹果汁澄清
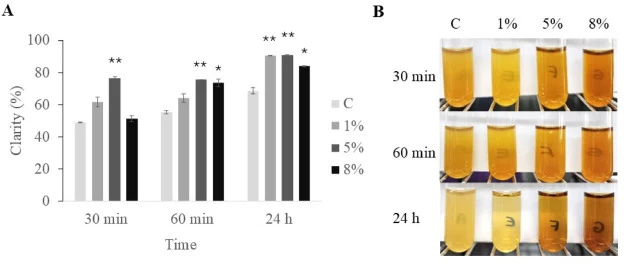
为评估重组PGU1的应用潜力,将oePG4培养上清制备的粗酶粉用于苹果汁澄清。测试了不同酶剂量(1%、5%和8% [w/v]),未处理苹果汁作对照。结果显示,与未处理对照相比,所有处理的果汁澄清度均随反应时间增加(图5)。5%酶处理在30 min内即显著提高澄清度(p < 0.01),8%处理在60 min和24 h后显示显著改善(p < 0.05)。肉眼观察与定量结果一致,5%处理在整个孵育期内透明度最高。24 h后,所有酶处理组的字母均清晰可见。这些结果表明,酿酒酵母生产的重组PGU1能有效改善苹果汁澄清,可能在果汁加工中有应用潜力。
【数据】酶剂量:1%、5%、8%(w/v);5%处理:30 min内显著(p < 0.01);8%处理:60 min与24 h显著(p < 0.05);孵育温度:50 °C;评价指标:650 nm浊度
讨论与解读
对S. cerevisiae BCRC21447的PGU1基因序列分析鉴定出两个SNP和一个单核苷酸插入(图S1)。其中一个SNP导致Ser293Gly替换。类似多态性此前在酵母VIN13的PGU1等位基因中也有发现,但异源表达分析表明该替换不影响聚半乳糖醛酸酶活性(Louw et al., 2010)。因此Ser293Gly替换不太可能是BCRC21447中PGU1功能丧失的原因。而1024 bp处插入额外胸腺嘧啶造成移码突变,改变下游开放阅读框,预测产生异常蛋白序列。由于PGU1编码的是一种功能性内切聚半乳糖醛酸酶,编码序列长1086 bp(Vidyasagar et al., 2022),该移码突变预期会破坏完整酶的产生。与此一致,S. cerevisiae BCRC21447在PGA琼脂平板上未能产生可检测的透明圈,表明无可检测的聚半乳糖醛酸酶活性(图3)。综合序列分析与酶活缺失结果,支持移码突变是BCRC21447中PGU1功能丧失的主要遗传缺陷这一结论。亲本菌株Saccharomyces cerevisiae BCRC 21447未显示可检测的聚半乳糖醛酸酶活性……(原文此处节选截断)。
编译者解读:本研究走的是"先诊断、再修复"的简洁路线——用一个质粒补回单碱基即可恢复酶活,说明该菌株的缺陷是单基因、可逆的,工程改造成本低。选择酿酒酵母而非黑曲霉作宿主,规避了果胶甲酯酶带来的甲醇问题,食品安全属性是卖点。局限也明显:质粒系统需G418抗性维持,工业规模下抗生素标记不可接受,后续应转向基因组整合或CRISPR修复;另外澄清实验仅在50 °C、粗酶粉水平完成,未与商品酶做同条件成本对比,离工业化还有距离。
参考来源
期刊:Biocatalysis and Agricultural Biotechnology, 2026
DOI: 10.1016/j.bcab.2026.104320
DOI: 10.1016/j.bcab.2026.104320