来源:Metabolic engineering of industrial Aspergillus niger for efficient production of trans-aconitic acid(Green Carbon)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
反乌头酸(tAA)是美国能源部认定的30种高值生物基平台化学品之一,可用于生物农药、增塑剂与功能聚合物。长期以来,其商业化受制于低效的生产方式。本研究以工业柠檬酸生产菌株黑曲霉MEFC 1501为底盘,系统评估了途径模块、前体供给、线粒体转运与产物分泌等多层改造策略,在摇瓶中实现65.0 g/L滴度,并在50 L反应器补料分批发酵中达到109.27 g/L,为目前报道的最高水平。
研究背景
反乌头酸(tAA,CAS: 4023-65-8)是一种C6不饱和三羧酸,天然存在于多种植物中,因安全性良好而长期用作食品添加剂。近年来其应用扩展至农业领域,可作为抗寄生线虫的生物农药。更关键的是,tAA分子同时具有活性羟基与α,β-不饱和双键,这一独特结构使其成为功能聚合物合成的优良砌块,被美国能源部列为30种高值生物基平台化学品之一,并可作为传统邻苯二甲酸酯类增塑剂的可持续替代前体。
然而,商业利用严重受限于缺乏高效生产方法。甘蔗提取或柠檬酸化学脱水等传统路线产物浓度低、纯化繁琐,tAA至今主要以特种试剂形式供应,下游应用开发因此受限。研究者曾尝试寻找天然微生物生产菌,虽鉴定出若干细菌种类,但tAA滴度极低。在此背景下,将工业级丝状真菌改造为tAA细胞工厂成为一条现实路径——黑曲霉具备强大的三羧酸循环碳流、优异的耐酸性与GRAS地位,但其代谢网络天然偏向柠檬酸积累,如何将碳流导向tAA是本研究的核心问题。
研究方法
2.1 菌株与培养基
本研究所用全部菌株列于表1。以工业柠檬酸生产菌株黑曲霉MEFC 1501为起始菌株。黑曲霉在土豆葡萄糖琼脂(PDA)平板上于30°C培养以获得孢子。孢子于IPM培养基(135 g/L葡萄糖、2 g/L NH₄NO₃、1 g/L玉米浆粉、0.01 g/L FeSO₄、0.01 g/L (NH₄)₂HPO₄、0.4 g/L MgSO₄,pH调至3.25)中培养以生成新鲜菌丝体,随后用于原生质体转化。转化子在含相应抗生素的PDAS平板(PDA培养基补充1.2 M D-山梨醇)上筛选。黑曲霉转化子于TPM培养基(135 g/L葡萄糖、3 g/L NH₄NO₃、2 g/L玉米浆粉、0.06 g/L FeSO₄、0.01 g/L (NH₄)₂HPO₄、0.4 g/L MgSO₄、0.24 g/L L-甲硫氨酸(L-Met),pH调至3.25)中进行摇瓶发酵。质粒构建时,大肠杆菌DH5α转化子在补充50 mg/L氨苄青霉素或卡那霉素的Luria-Bertani(LB)固体培养基上于37°C筛选。
【数据】培养基:PDA、IPM、PDAS、TPM、LB;葡萄糖:135 g/L(IPM、TPM);NH₄NO₃:2 g/L(IPM)/3 g/L(TPM);玉米浆粉:1 g/L(IPM)/2 g/L(TPM);FeSO₄:0.01 g/L(IPM)/0.06 g/L(TPM);(NH₄)₂HPO₄:0.01 g/L;MgSO₄:0.4 g/L;L-Met:0.24 g/L(TPM);pH:3.25;山梨醇:1.2 M;潮霉素B:100 mg/L;氨苄青霉素/卡那霉素:50 mg/L;温度:30°C(黑曲霉)/37°C(大肠杆菌)
2.2 表达盒的构建
所有在黑曲霉中异源表达的基因,包括AtacoA、adi1、tbrA、mttA和aexA,均经合成并做密码子优化。异源表达乌头酸酶基因时,将来源于土曲霉(A. terreus)的AtacoA去除线粒体信号肽后,按黑曲霉偏好进行密码子优化,克隆至载体pUC57-Amp,得到质粒pUC57-AtacoA。以MEFC 1501基因组为模板,通过PCR扩增启动子PglaA[18]。以携带终止子元件Tpgk的质粒pWM62为模板,通过PCR扩增终止子Tpgk片段及pEASY®-Blunt Simple质粒骨架。三个片段经无缝克隆组装,连接产物转化大肠杆菌DH5α。阳性克隆经PCR鉴定并测序确认,获得质粒pWM79。以该质粒为模板,PCR扩增表达盒PglaA-AtacoA-Tpgk,纯化后用于转化黑曲霉。其余表达盒采用相同策略构建。所用全部元件列于补充材料表S1。
【数据】基因:AtacoA、adi1、tbrA、mttA、aexA;启动子:PglaA;终止子:Tpgk;质粒:pUC57-Amp、pWM62、pEASY®-Blunt Simple、pWM79;宿主:大肠杆菌DH5α;方法:无缝克隆、PCR、测序
2.3 黑曲霉的转化
黑曲霉菌丝体于IPM中30°C摇瓶培养24 h,随后按此前描述的原生质体-PEG法进行转化[19]。对于AtacoA表达盒,原生质体浓度调至1×10⁷个/mL,原生质体悬液与表达盒PglaA-AtacoA-Tpgk及潮霉素抗性基因(hph)表达盒PtrpC-hph-TtrpC混合。转化子在PDA-SH平板(PDA补充1.2 M山梨醇与100 mg/L潮霉素B)上筛选。所有转化子均在PDAH平板(PDA补充100 mg/L潮霉素B)上进行两轮单孢分离。PglaA-AtacoA-Tpgk表达盒整合入黑曲霉MEFC 1501基因组的情况通过基因组PCR确认。其他表达盒按相同策略构建,转化子在补充相应浓度抗生素的PDA-S平板上筛选,基因型由相应引物对确认。随机选取代表性转化子用于后续分析。
【数据】原生质体浓度:1×10⁷个/mL;山梨醇:1.2 M;潮霉素B:100 mg/L;培养温度:30°C;培养时间:24 h;单孢分离:2轮
2.4 黑曲霉摇瓶培养
经两轮单孢分离确认的转化子分别接种至PDA平板以获得成熟孢子。每株菌取5×10⁷个孢子接入装有55 mL TPM培养基的500 mL三角瓶,设三个生物学重复,于35°C、220 rpm摇床培养5天。cAA、tAA与葡萄糖浓度按此前描述的方法用HPLC测定[2]。cAA与tAA浓度采用外标法定量,标准曲线由cAA与tAA标准品(Merck,德国)生成。显著性差异(p值)的统计分析在GraphPad Prism 11中采用双因素方差分析(ANOVA)完成(p值:<0.05 = ,<0.01 = ,<0.001 = ,<0.0001 = ****)。
【数据】孢子接种量:5×10⁷个;装液量:55 mL/500 mL;温度:35°C;转速:220 rpm;时间:5天;重复数:3个生物学重复;检测方法:HPLC外标法;统计方法:双因素ANOVA
2.5 MEFC 1826的实验室规模发酵
工程菌株黑曲霉MEFC 1826的实验室规模分批与补料分批发酵采用两阶段工艺。种子培养与发酵均使用优化后的tAA生产培养基(120 g/L葡萄糖、4.0 g/L NH₄NO₃、0.4 g/L FeSO₄、0.01 g/L (NH₄)₂HPO₄、0.4 g/L MgSO₄、0.1 g/L色氨酸、0.24 g/L L-Met、2.0 g/L玉米浆粉)。种子培养在10 L发酵罐中进行,工作体积6 L。培养基初始pH用硫酸调至3.0,随后于115°C灭菌15 min。冷却至37°C后,接入黑曲霉孢子至终浓度3×10⁵个/mL。培养条件设为:温度37°C、搅拌转速400 rpm、通气量0.3 vvm、罐压维持0.7 bar。培养过程中采用溶氧-搅拌级联控制策略维持溶氧(DO)高于30%。pH不加控制,自然浮动。种子液培养28 h后收获并转入发酵培养基。发酵在50 L发酵罐中进行,工作体积30 L。培养基于115°C灭菌15 min,冷却至37°C后接入3 L种子液。操作参数设定为:温度37°C、搅拌转速290 rpm、通气量0.3 vvm、罐压维持0.7 bar。整个发酵过程通过溶氧-搅拌级联控制回路维持DO高于30%。分批发酵不控制pH,待残糖完全耗尽即终止。补料分批发酵中,当残糖浓度降至40 g/L时,以2 g/L/h的速率补入800 g/L葡萄糖溶液,共补加2200 g葡萄糖一水合物。发酵51 h时pH降至2.0,用4 mol/L氢氧化钠调至2.5。cAA、tAA与葡萄糖的测定按2.4节所述方法进行。堆积菌丝体积(PMV)通过离心测定:取混合均匀的发酵液10 mL置于带刻度的锥形离心管中,3000×g离心10 min,以菌体沉淀体积除以发酵液体积计算PMV。50 L分批与补料分批发酵各进行两次独立的生物学重复。
【数据】发酵培养基:120 g/L葡萄糖、4.0 g/L NH₄NO₃、0.4 g/L FeSO₄、0.01 g/L (NH₄)₂HPO₄、0.4 g/L MgSO₄、0.1 g/L色氨酸、0.24 g/L L-Met、2.0 g/L玉米浆粉;种子罐:10 L(工作体积6 L);种子接种终浓度:3×10⁵个/mL;种子培养温度:37°C;种子搅拌:400 rpm;通气量:0.3 vvm;罐压:0.7 bar;种子培养时间:28 h;发酵罐:50 L(工作体积30 L);发酵搅拌:290 rpm;灭菌:115°C、15 min;补料触发残糖:40 g/L;补料浓度:800 g/L;补料速率:2 g/L/h;补加葡萄糖总量:2200 g;51 h调pH:2.0→2.5(4 mol/L NaOH);PMV离心:3000×g、10 min;重复数:2次独立生物学重复
2.6 荧光显微镜
荧光图像使用配备40×物镜的Zeiss激光扫描共聚焦显微镜采集,图像采集使用ZEN 3.8软件。GFP激发波长488 nm,发射光收集范围为495–550 nm。
【数据】物镜:40×;GFP激发:488 nm;发射收集:495–550 nm;软件:ZEN 3.8
研究结果
3.1 强化柠檬酸向顺乌头酸的转化
黑曲霉MEFC 1501是高效的柠檬酸生产菌。在此底盘上建立tAA生物合成,首要前提是将柠檬酸转化为顺乌头酸(cAA),后者可经自发互变或酶催化转化为tAA(图1a)。然而,TCA循环中柠檬酸向cAA的转化由乌头酸酶唯一催化。乌头酸酶通过脱水-水合机制介导柠檬酸、cAA与异柠檬酸的可逆互变,其中cAA仅作为瞬时中间体生成,极少积累至可检测水平。平衡条件下反应强烈偏向柠檬酸,据报道柠檬酸:异柠檬酸:cAA比例约为91:6:3。这一热力学偏倚长期被视为黑曲霉大量积累柠檬酸的关键决定因素[14],但对乌头酸的大量生产构成显著不利。
在产衣康酸的土曲霉CICC40205中,柠檬酸被高效脱水为cAA并进一步脱羧生成衣康酸。这一代谢背景提示,尽管土曲霉乌头酸酶同样催化柠檬酸、cAA与异柠檬酸之间的可逆互变,其途径组织方式偏向为下游衣康酸合成供应cAA,而非积累柠檬酸。因此,tAA合成中的瓶颈在土曲霉与黑曲霉之间可能不同:在土曲霉中cAA的供给与可及性足以支持tAA合成,而在黑曲霉中cAA供给可能是需要考虑的障碍。
据此,将来自土曲霉CICC40205的乌头酸酶(AtAcoA,由ATEG_03325编码)[2]异源重构于黑曲霉MEFC 1501的细胞质区室。去除AtAcoA的线粒体定位信号肽,所得细胞质变体置于强内源启动子PglaA控制之下。与预期相反,该构建的异源表达仅带来边际改善:tAA滴度从1.73 g/L升至2.07 g/L(提高19.7%),cAA水平基本不变(从0.73 g/L至0.78 g/L)(图1b)。
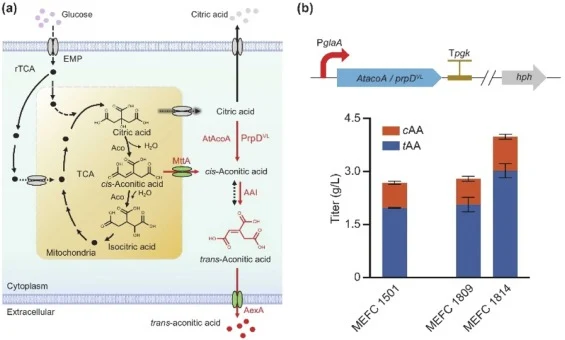
鉴于乌头酸酶AtAcoA可能并非最优,进一步评估了PrpD^VL——大肠杆菌2-甲基柠檬酸脱水酶PrpD的突变变体[20]。野生型PrpD催化单向脱水反应,将2-甲基柠檬酸转化为2-甲基乌头酸,不伴随再水合步骤。PrpD^VL突变体已被证明可直接以柠檬酸为底物生成cAA而不进一步转化为异柠檬酸,从而改善大肠杆菌中的衣康酸生产[20]。PrpD^VL的异源表达较AtAcoA带来适度改善:cAA滴度从0.73 g/L升至0.96 g/L,tAA产量提高75%,达到3.02 g/L(图1b)。总体而言,这些结果表明强化柠檬酸向cAA的转化收益有限,似乎并非黑曲霉中tAA合成的关键限速步骤。
【数据】出发菌株tAA:1.73 g/L;OE-AtacoA菌株tAA:2.07 g/L(+19.7%);出发菌株cAA:0.73 g/L;OE-AtacoA菌株cAA:0.78 g/L;OE-prpD^VL菌株cAA:0.96 g/L;OE-prpD^VL菌株tAA:3.02 g/L(+75%);平衡比例柠檬酸:异柠檬酸:cAA≈91:6:3
3.2 异源表达乌头酸异构酶加速cAA向tAA的转化
cAA向tAA的转化是该生物合成途径的关键步骤。尽管cAA与tAA可自发互变,且在发酵温度下tAA为热力学更有利的异构体,但这一非酶过程速率极低。AAI可显著加速该异构化。迄今仅鉴定并表征了少数几种AAI。本研究异源重构了两个研究相对充分的成员——来自苏云金芽孢杆菌(B. thuringiensis)的TbrA[4]与来自玉米黑粉菌(U. maydis)的真菌Adi1[21],并在三种不同启动子(PgpdAn、PgpdAt和PglaA)下评估其性能(图2a)。引人注目的是,导入单个异构酶基因即使tAA滴度从可忽略的本底水平提升至40 g/L以上,且在多个构建中一致。其中,真菌来源的Adi1持续优于细菌来源的TbrA,PglaA启动子优于另外两个启动子。表现最佳的转化子MEFC 1829(PglaA-adi1)在摇瓶发酵中tAA最高滴度达43.76 g/L(图2a),tAA占乌头酸总池的93.7%。这些结果提示,对野生型黑曲霉而言,乌头酸异构化是比上游柠檬酸向cAA转化更关键的瓶颈,因为异构化步骤可防止cAA被分流进入细胞代谢。解除该瓶颈后,重新审视乌头酸酶策略以确定能否实现进一步的途径强化。令人鼓舞的是,PrpD^VL与Adi1共表达使tAA滴度升至46.7 g/L(图2b)。这一改善表明,一旦异构化步骤被加速,cAA的细胞质供给即成为下一个限速因素。
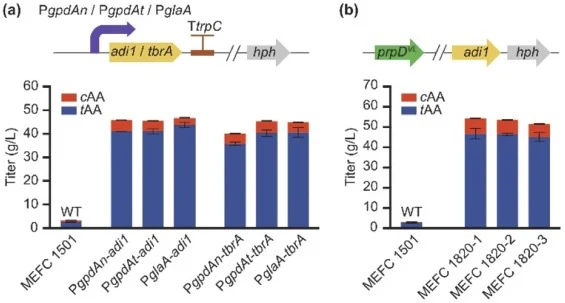
【数据】单异构酶表达tAA滴度:>40 g/L;MEFC 1829(PglaA-adi1)tAA最高滴度:43.76 g/L;tAA占乌头酸总池:93.7%;PrpD^VL+Adi1共表达tAA滴度:46.7 g/L;启动子比较:PglaA > PgpdAn、PgpdAt;酶比较:Adi1 > TbrA
3.3 异源表达MttA增强cAA供给
除在细胞质中直接将柠檬酸转化为cAA外,另一条增加乌头酸供给的路线是将cAA从线粒体TCA循环转运至细胞质。在产柠檬酸的黑曲霉中,线粒体跨膜系统主要输出柠檬酸。相反,在土曲霉CICC40205中,线粒体转运蛋白MttA特异性地介导cAA而非柠檬酸向细胞质的流出[22]。这提示黑曲霉与土曲霉之间tAA合成途径存在另一瓶颈:土曲霉线粒体合成的cAA可经MttA转运至细胞质,作为tAA合成前体;而黑曲霉缺乏MttA,可能限制细胞质中cAA的可及性,进而限制tAA合成。
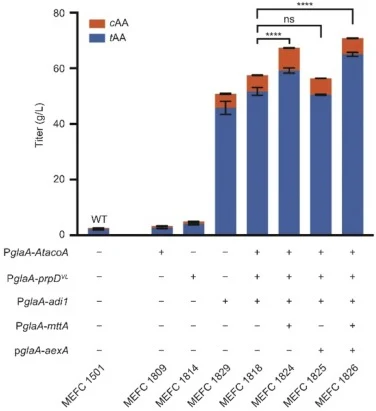
首先评估单独导入MttA是否促进乌头酸生产。摇瓶发酵结果显示,mttA表达使cAA滴度升至2.5–3.9 g/L,较亲本菌株(0.48 g/L)提高5至8倍;tAA滴度最高达15.97 g/L(图3a),较亲本菌株(1.19 g/L)提高13.4倍。该效应显著大于图1b所示的细胞质柠檬酸向cAA转化策略。随后将MttA表达与先前验证的乌头酸酶及AAI共过表达组合,所得菌株命名为MEFC 1824(OEAtacoA/prpD^VL/adi1/mttA)。观察到协同效应,tAA最高滴度从52 g/L升至59.2 g/L,提高13.8%(图4)。这些结果凸显了在黑曲霉tAA生物合成的代谢工程中克服线粒体与细胞质物理分隔所形成天然屏障的重要性。在天然背景下,cAA作为TCA循环中间体在线粒体中生成,并迅速导向异柠檬酸进入后续代谢。导入MttA被认为可桥接这一空间间隙,阻止cAA重新进入TCA循环,从而扩大细胞质cAA池。当与AAI催化的cAA向tAA快速异构化相耦合时,该策略扩大前体池并将反应平衡推向tAA积累,这一协同效应最终驱动碳流走向tAA合成。
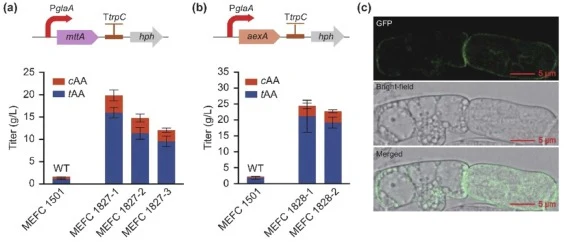
【数据】亲本菌株cAA:0.48 g/L;OE-mttA菌株cAA:2.5–3.9 g/L(5–8倍);亲本菌株tAA:1.19 g/L;OE-mttA菌株tAA最高:15.97 g/L(13.4倍);MEFC 1824 tAA:52→59.2 g/L(+13.8%)
3.4 通过特异性外排系统改造tAA的胞外分泌
有机酸的胞内积累不仅对生物合成途径产生反馈抑制,还扰动胞内环境、产生细胞毒性效应,最终损害生产率。
【数据】原文节选至此中断,该段落后续内容及图4对应数据原文未详述
3.5 摇瓶与反应器规模发酵性能
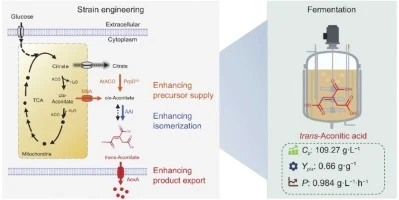
在摇瓶条件下,组合多种工程策略后tAA滴度达到65.0 g/L。表现最佳的菌株MEFC 1826(基因型为MEFC 1501::PglaA-AtacoA::prpD^VL::adi1::mttA::aexA)在50 L反应器中进行分批与补料分批发酵。补料分批发酵中tAA滴度达109.27 g/L,对葡萄糖得率为0.66 g/g,生产强度为0.984 g/L/h。
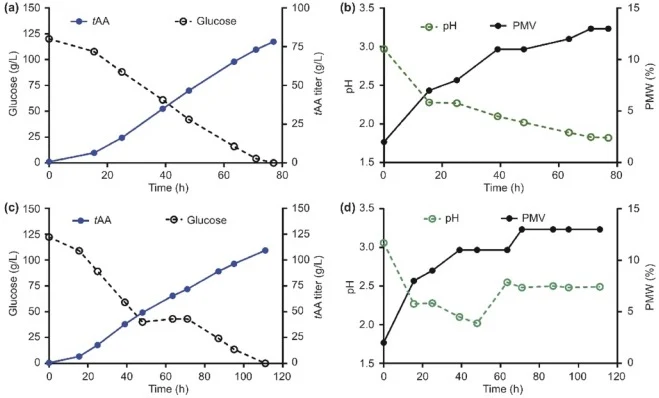
【数据】摇瓶tAA滴度:65.0 g/L;MEFC 1826补料分批tAA滴度:109.27 g/L;得率:0.66 g/g葡萄糖;生产强度:0.984 g/L/h;反应器规模:50 L
讨论与解读
本研究以工业黑曲霉为底盘,采用分步、系统级代谢工程策略拆解并优化tAA生物合成途径。核心结论是:AAI催化的cAA向tAA异构化是黑曲霉改造中的首要限速步骤,单独导入该酶即可大幅提升tAA产量;但最大产量需要多策略协同——经线粒体cAA外排与细胞质柠檬酸转化强化前体池,并配合产物快速外排,才能充分释放途径潜力。最优菌株在50 L补料分批发酵中达到迄今报道的最高滴度109.27 g/L,超过此前土曲霉报道的生产水平,凸显黑曲霉底盘的潜力。黑曲霉优异的耐酸性、GRAS地位与这一高性能工艺相结合,为tAA制造提供了商业可行且环境友好的路线。未来工作将聚焦工艺优化与菌株改良,以缩小与工业柠檬酸生产的差距。
编译者解读:该研究的价值不在于单点酶改造,而在于用"异构化—前体供给—跨膜转运—产物外排"的分层框架证明了丝状真菌有机酸生产中转运系统与 biosynthetic 途径同等重要。对合成生物学而言,这提示细胞工厂设计不能只盯途径酶,膜转运蛋白往往是隐藏的限速节点。局限在于讨论与结果节选中外排系统与50 L工艺细节披露有限,且摇瓶到反应器的放大倍数(65→109 g/L)背后的工程参数仍待完整公开。
参考来源
期刊:Green Carbon, 2026
DOI: 10.1016/j.greenca.2026.10.001
DOI: 10.1016/j.greenca.2026.10.001