来源:Effects of potato saccharification liquid on the quality of natto co-fermented by Bacillus subtilis var. natto and Bifidobacterium animalis subsp. lactis(Food Bioscience)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
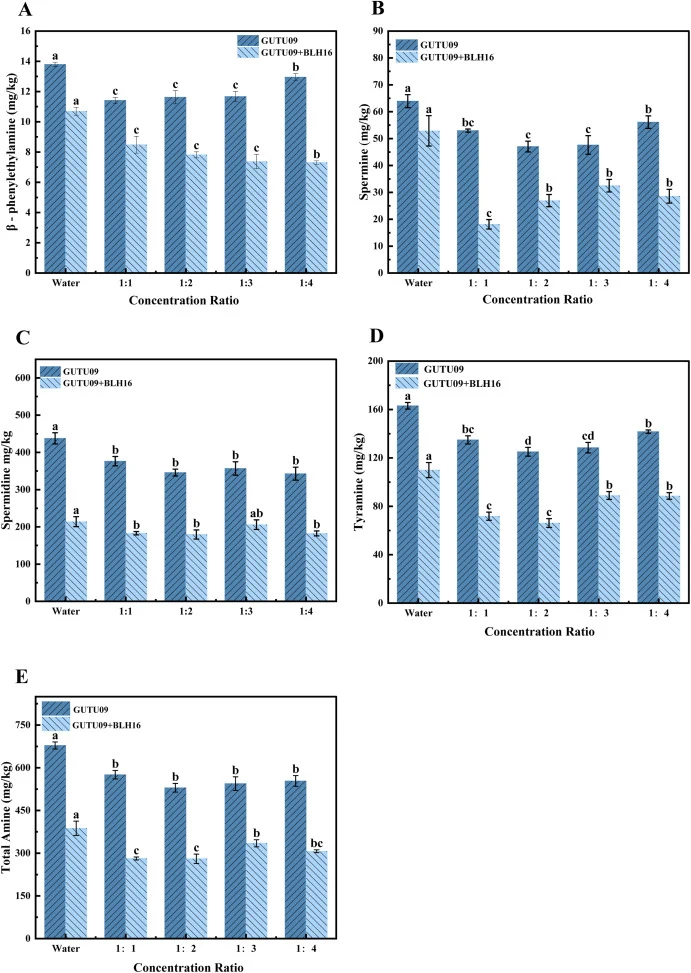
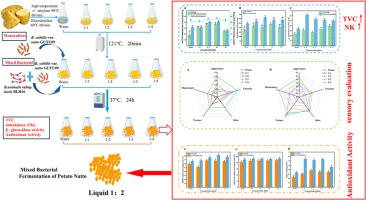
纳豆虽具纤溶、抗氧化等功能,却长期受制于氨味重、功能成分产量不稳、贮藏期短三大短板。这篇来自Food Bioscience的研究用马铃薯糖化液替代清水浸泡大豆,以纳豆芽孢杆菌GUTU09单菌或与动物双歧杆菌乳亚种BLH16共发酵,系统考察活菌数、纳豆激酶、β-葡萄糖苷酶、异黄酮、生物胺、抗氧化与感官品质,并建立Arrhenius货架期模型。1:2配比综合表现最佳,共发酵纳豆激酶提升27%,生物胺显著下降。
研究背景
纳豆是日本传统的固态发酵大豆制品,通常由纳豆芽孢杆菌发酵而成。发酵过程中,大豆大分子被降解为纳豆激酶(NK)、异黄酮、肽、氨基酸和维生素K2等活性物质。其中NK因纤溶活性和潜在心血管益处而备受关注,异黄酮等抗氧化成分则共同构成纳豆的功能价值。
但传统纳豆存在明显局限。单菌发酵常因蛋白质过度降解和碱性化合物积累而产生强烈氨味与不良风味。NK、异黄酮苷元等功能成分的产量依赖微生物生长与酶分泌,而这两者又受底物组成和发酵条件强烈影响。贮藏期间色泽、气味、活菌数和感官可接受性的劣变,进一步限制了纳豆产品的货架期稳定性。
马铃薯糖化液富含可发酵碳水化合物,具备作为营养调控底物的潜力。本研究将其用于纳豆浸泡与发酵,比较单菌与共发酵两种体系,围绕品质、功能与贮藏稳定性展开评价。
研究方法
2.1 材料与试剂
马铃薯和大豆购自贵州农产品市场(中国贵州)。凝血酶、纤维蛋白原、大豆苷元、大豆苷、染料木素、染料木苷、α-高温淀粉酶和糖化酶购自上海索莱宝生物科技有限公司(中国上海)。2,2-二苯基-1-苦基肼(DPPH)、2,2′-联氮-双(3-乙基苯并噻唑啉-6-磺酸)(ABTS)和2,4,6-三(2-吡啶基)-s-三嗪(TPTZ)购自国药集团(中国)。
【数据】材料来源:贵州农产品市场;试剂供应商:上海索莱宝、国药集团;试剂纯度/规格:原文未详述
2.2 实验方法
#### 2.2.1 培养基
LB培养基:葡萄糖10 g/L、酵母提取物5 g/L、牛肉提取物10 g/L、氯化钠5 g/L。PTYG培养基:含胰蛋白胨5 g/L、大豆蛋白胨5 g/L、酵母提取物10 g/L、葡萄糖10 g/L、Tween 80 1 mL/L、L-半胱氨酸盐酸盐0.05 g/L,以及盐溶液4 mL。固体培养基另加琼脂20 g/L。酪蛋白培养基:酪蛋白5 g/L、葡萄糖1 g/L、酵母提取物1 g/L、K2HPO4 1 g/L、KH2PO4 0.5 g/L、MgSO4 0.1 g/L、琼脂20 g/L,pH 7.0~7.5。MRS培养基:蛋白胨10.0 g/L、牛肉提取物10.0 g/L、酵母提取物5.0 g/L、乙酸钠5.0 g/L、柠檬酸铵2.0 g/L、葡萄糖20.0 g/L、磷酸氢二钾2.0 g/L、硫酸镁0.5 g/L、硫酸锰0.25 g/L、Tween-80 1.0 mL/L,固体培养基另加琼脂20 g/L。所有培养基均在121 °C灭菌20 min。
【数据】LB培养基:葡萄糖10 g/L、酵母提取物5 g/L、牛肉提取物10 g/L、NaCl 5 g/L;PTYG培养基:胰蛋白胨5 g/L、大豆蛋白胨5 g/L、酵母提取物10 g/L、葡萄糖10 g/L、Tween 80 1 mL/L、L-半胱氨酸盐酸盐0.05 g/L、盐溶液4 mL;酪蛋白培养基:pH 7.0~7.5;MRS培养基:葡萄糖20.0 g/L、蛋白胨10.0 g/L;琼脂:20 g/L;灭菌:121 °C、20 min
#### 2.2.2 菌株与培养条件
本研究使用纳豆芽孢杆菌GUTU09(中国典型培养物保藏中心,CCTCC No. M2021641,分离自贵州豆豉)和动物双歧杆菌乳亚种BLH16(CCTCC No. M20231318,源自贵州传统发酵红酸汤)。GUTU09于37 °C培养15 h,稀释并调整至1.0 × 10⁸ CFU/mL。BLH16在PTYG液体培养基中于37 °C培养48 h,调整获得1.0 × 10⁸ CFU/mL的种子液。两种培养物均离心(8000 × g,10 min),菌体重悬于无菌生理盐水至终浓度1.0 × 10⁸ CFU/mL。
【数据】菌株:GUTU09(CCTCC No. M2021641)、BLH16(CCTCC No. M20231318);GUTU09培养:37 °C、15 h;BLH16培养:37 °C、48 h;菌液终浓度:1.0 × 10⁸ CFU/mL;离心:8000 × g、10 min
#### 2.2.3 马铃薯糖化液制备
马铃薯去皮、清洗、煮沸,按马铃薯与水比1:1、1:2、1:3、1:4(w/v)加水研磨成浆。浆液用α-淀粉酶(80 U/g)在90 °C液化60 min,随后用糖化酶(800 U/g)在60 °C糖化60 min。冷却后,马铃薯糖化液于4 °C保存备用。对糖化液的理化性质进行分析:可溶性固形物于20 °C用数字折光仪按NY/T 2637—2014测定;还原糖采用3,5-二硝基水杨酸(DNS)法于540 nm以葡萄糖为标准测定;葡萄糖含量按GB 5009.8-2023用高效液相色谱测定;总酚含量采用Folin-Ciocalteu法以没食子酸为标准分析;同时记录糖化液pH。所有数值见补充表S1。
【数据】料水比:1:1、1:2、1:3、1:4(w/v);α-淀粉酶:80 U/g、90 °C、60 min;糖化酶:800 U/g、60 °C、60 min;保存:4 °C;可溶性固形物测定:20 °C;还原糖测定:540 nm;标准品:葡萄糖、没食子酸
#### 2.2.4 马铃薯纳豆制备
大豆清洗三次,于不同浓度马铃薯糖化液中浸泡12 h。沥干后,将50 g分装至三角瓶,补加1% NaCl,于121 °C灭菌20 min。冷却后,单菌发酵样品按4%(v/w)接种GUTU09种子液(1.0 × 10⁸ CFU/mL),对应初始接种量约4.0 × 10⁶ CFU/g样品。共发酵时,GUTU09与BLH16种子液(1.0 × 10⁸ CFU/mL)各按2%(v/w)接种,对应每株菌初始接种量约2.0 × 10⁶ CFU/g样品。发酵于37 °C进行24 h,随后4 °C后熟24 h。所得产品即为马铃薯纳豆。
【数据】浸泡:12 h;装量:50 g/瓶;NaCl:1%;灭菌:121 °C、20 min;单菌接种:4%(v/w)、约4.0 × 10⁶ CFU/g;共发酵接种:各2%(v/w)、各约2.0 × 10⁶ CFU/g;发酵:37 °C、24 h;后熟:4 °C、24 h
#### 2.2.5 样品制备
取5 g纳豆与45 mL无菌去离子水混合,用匀浆机匀浆获得十倍匀浆液。匀浆液于4 °C静置24 h,然后以7500 × g离心15 min。收集上清液用于后续分析。
【数据】样品:5 g纳豆 + 45 mL无菌去离子水(10倍匀浆);静置:4 °C、24 h;离心:7500 × g、15 min
2.3 总活菌数(TVC)与NK活性测定
TVC按Zhao等(2024)方法测定。取1 g马铃薯纳豆于9 mL无菌生理盐水中匀浆15 s,随后进行10倍系列稀释。取适宜稀释度涂布MRS琼脂和LB琼脂进行微生物计数。动物双歧杆菌乳亚种BLH16于MRS琼脂、37 °C厌氧培养48 h;纳豆芽孢杆菌GUTU09于LB琼脂、37 °C需氧培养24 h。计数菌落并以CFU/g表示。马铃薯葡萄糖琼脂用于霉菌计数。NK活性按Lan等(2020)方法测定。
【数据】匀浆:1 g样品 + 9 mL无菌生理盐水、15 s;稀释:10倍系列;BLH16培养:MRS琼脂、37 °C、48 h、厌氧;GUTU09培养:LB琼脂、37 °C、24 h、需氧;单位:CFU/g
2.4 β-葡萄糖苷酶活性测定
β-葡萄糖苷酶活性测定参照Tsui和Yang(2021)方法并稍作修改。用已知浓度的标准溶液制备对硝基苯酚标准曲线。酶活测定时,将0.5 mL 5 mmol/L对硝基苯基-β-D-吡喃葡萄糖苷与0.5 mL纳豆提取液混合,于37 °C孵育30 min。加入2.0 mL 1 mol/L碳酸钠终止反应。于400 nm测定吸光度。在37 °C测定条件下每分钟释放1 μmol对硝基苯酚所需的酶量定义为1个β-葡萄糖苷酶活性单位(U)。
【数据】底物:5 mmol/L对硝基苯基-β-D-吡喃葡萄糖苷0.5 mL;酶液:0.5 mL;反应:37 °C、30 min;终止液:1 mol/L碳酸钠2.0 mL;检测波长:400 nm;酶活定义:37 °C每分钟释放1 μmol对硝基苯酚为1 U
2.5 感官评价
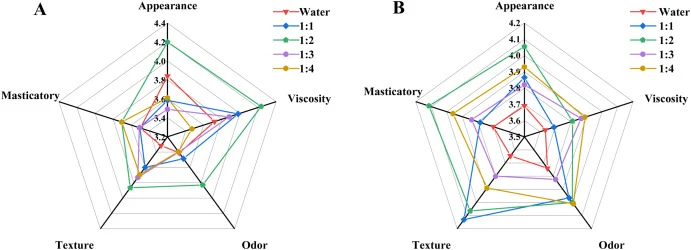
感官评价参照Yang等(2021)方法并稍作修改。样品随机编码,由20名受过培训的研究生在感官实验室中评价。评价属性包括外观、香气、黏度、滋味和咀嚼性。采用5分制(1 = 最差,5 = 最佳),最终得分转换为百分比。感官评分见表1,总感官评价得分已转换为百分比量表。
【数据】评价人数:20名受训研究生;评分制:5分制(1最差~5最佳);评价属性:外观、香气、黏度、滋味、咀嚼性;结果形式:百分比
2.6 大豆异黄酮测定
大豆异黄酮的提取与测定参照国家标准《粮油检验 大豆异黄酮的测定 高效液相色谱法》(中国,2011)及Brustel等(2024)所述方法。简要而言,称取5 g样品并提取。提取液用100 mL/L甲醇定容至50 mL,取1 mL经0.45 μm滤膜过滤后进样分析。
【数据】样品:5 g;定容:50 mL、100 mL/L甲醇;过滤:0.45 μm;检测:HPLC
2.7 生物胺含量测定
生物胺按Wang等(2024)方法分析。取5 g样品与20 mL 0.4 mol/L高氯酸匀浆,涡旋,提取30 min。离心(5000 × g,10 min)后收集上清液并定容至50 mL。采用HPLC测定含量。
(1)生物胺标准溶液制备与样品衍生化:生物胺标准溶液按《食品安全国家标准 食品中生物胺的测定》(中国,2016)方法配制。取1.0 mL标准溶液于10 mL离心管中,依次加入200 μL 2 mol/L氢氧化钠溶液、300 μL饱和碳酸氢钠溶液缓冲,然后加入2 mL丹磺酰氯衍生化试剂(10 mg/L,溶剂为丙酮),振荡混匀,40 °C避光水浴45 min,每15 min振荡一次。加入100 μL 25%氨水终止衍生化反应,避光静置30 min,加入1400 μL色谱纯乙腈混匀,经0.22 μm有机滤头过滤,4 °C避光保存待HPLC测定。
(2)色谱条件:色谱柱为C18(150 mm × 3.9 mm,Waters),紫外检测波长254 nm。
【数据】样品:5 g;提取液:0.4 mol/L高氯酸20 mL、30 min;离心:5000 × g、10 min;定容:50 mL;标准液:1.0 mL;NaOH:200 μL、2 mol/L;饱和碳酸氢钠:300 μL;丹磺酰氯:2 mL、10 mg/L(丙酮溶剂);衍生化:40 °C、45 min、避光、每15 min振荡;终止:25%氨水100 μL、避光30 min;乙腈:1400 μL;过滤:0.22 μm;色谱柱:C18 150 mm × 3.9 mm(Waters);检测波长:254 nm
研究结果
3.1 马铃薯糖化液浓度对纳豆TVC与NK活性的影响
发酵24 h后,马铃薯糖化液浸泡纳豆的活菌数显著高于清水浸泡对照(p < 0.05)(图1A)。在纳豆芽孢杆菌GUTU09与动物双歧杆菌乳亚种BLH16共发酵条件下,中等糖化液浓度伴随更高的纳豆芽孢杆菌活菌增幅。1:3浓度时,共发酵纳豆活菌数达10¹⁴ CFU/g,为清水对照的8.8倍。同时,BLH16计数从10¹⁰ CFU/g(清水)增至1:2配比下的10¹¹ CFU/g。尽管GUTU09最高计数出现在1:3处理,但综合NK活性、BLH16存活、生物胺、抗氧化能力和感官品质,1:2处理整体表现最佳。这种提升可归因于马铃薯糖化液的营养调控作用——其提供易于发酵的糖类(主要是葡萄糖),支撑微生物生长与代谢(Hernández-Heredia等,2025)。由于纳豆芽孢杆菌GUTU09是发酵体系中NK的主要产生菌,芽孢杆菌活菌数的增加与NK活性增强密切相关(Li, Xu等,2021)。
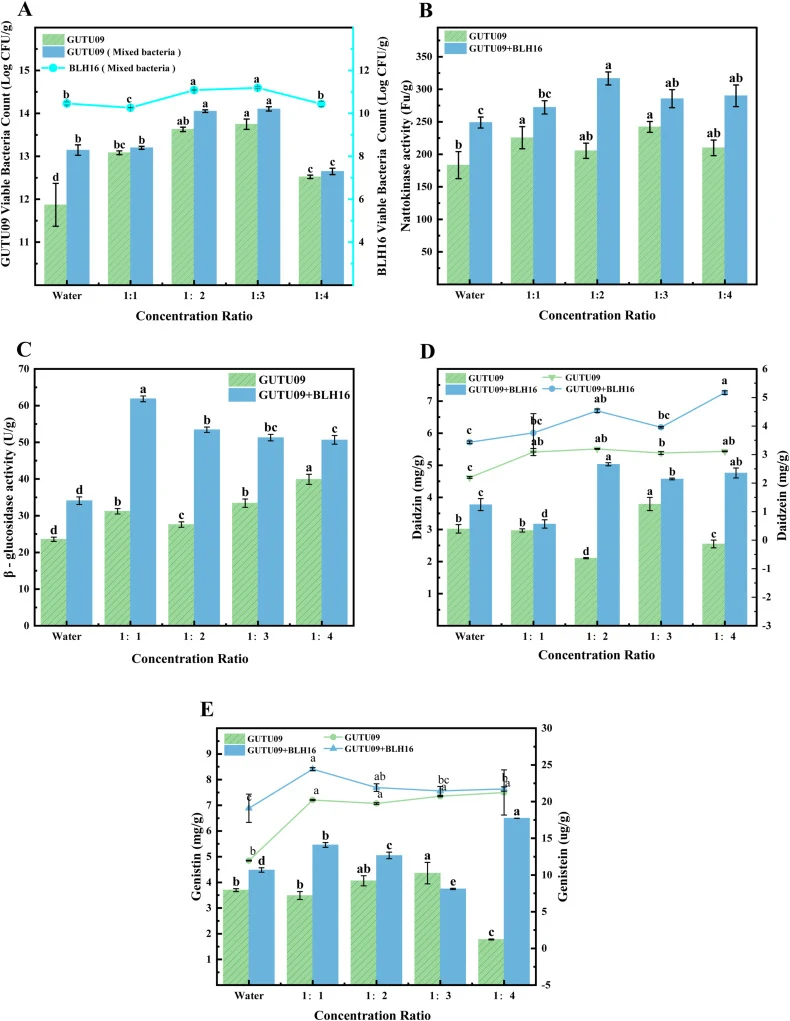
如图1B所示,马铃薯糖化液浸泡后NK活性显著升高,且共发酵高于单菌发酵。峰值出现在1:2配比。与清水对照相比,GUTU09单菌发酵NK活性从183 ± 20.82 FU/g升至205.55 ± 8.30 FU/g,而与BLH16共发酵则从248.88 ± 8.38 FU/g升至316.66 ± 10 FU/g。共发酵的增强可能归因于代谢互作——BLH16产生有机酸、氨基酸和维生素,支持微生物生长与酶分泌(Wang等,2015)。然而,过高的糖化液浓度削弱了这一益处,可能源于渗透胁迫或碳氮失衡。
【数据】发酵时间:24 h;共发酵1:3活菌数:10¹⁴ CFU/g(对照8.8倍);BLH16:10¹⁰→10¹¹ CFU/g(1:2);NK单菌:183 ± 20.82→205.55 ± 8.30 FU/g;NK共发酵:248.88 ± 8.38→316.66 ± 10 FU/g;最佳配比:1:2;显著性:p < 0.05
3.2 马铃薯糖化液浓度浸泡对纳豆β-葡萄糖苷酶活性的影响
如图1C所示,与清水对照相比,所有糖化液处理组的β-葡萄糖苷酶活性均显著升高(p < 0.05)。GUTU09单菌发酵中,活性从23.59 ± 0.47 U/g升至39.93 ± 1.12 U/g。共发酵中,活性从34.08 ± 0.86 U/g升至61.86 ± 0.66 U/g。相同浓度下,共发酵酶活几乎是单菌发酵的两倍,反映微生物生长与胞外酶产生的增强(Lai等,2025)。β-葡萄糖苷酶活性的升高可能有助于解释3.3节所述大豆异黄酮的变化。大豆中异黄酮主要以糖苷形式存在,如大豆苷和染料木苷,可被β-葡萄糖苷酶水解生成相应苷元——大豆苷元和染料木素(Mai等,2021;You等,2015)。结果提示,糖化液通过提供额外营养促进酶分泌,在共发酵体系中尤为明显。
【数据】β-葡萄糖苷酶单菌:23.59 ± 0.47→39.93 ± 1.12 U/g;共发酵:34.08 ± 0.86→61.86 ± 0.66 U/g;共发酵约为单菌2倍;显著性:p < 0.05
3.3 马铃薯糖化液浓度浸泡对大豆异黄酮含量的影响
如图1D和E所示,经清水或不同浓度马铃薯糖化液浸泡后,单菌与混菌发酵纳豆中均检测到四种主要异黄酮:大豆苷、大豆苷元、染料木苷和染料木素。单菌发酵条件下,清水浸泡样品大豆苷含量为3.01 ± 0.107 mg/g,1:3马铃薯糖化液浸泡样品为3.79 ± 0.167 mg/g,显著升高;而相同浓度糖化液的混菌发酵将大豆苷含量显著提高至5.03 ± 0.039 mg/g,提示共发酵可能有利于大豆苷积累。大豆苷元含量的趋势更为明显(图1D折线图):单菌发酵中,清水浸泡处理大豆苷元含量为2.19 ± 0.023 mg/g,1:3浓度糖化液浸泡后升至3.19 ± 0.012 mg/g;混菌发酵进一步升至4.53 ± 0.052 mg/g。图1E显示,单菌发酵时染料木苷含量在1:3糖化液浸泡组最高,达4.2 ± 0.34 mg/g,显著高于清水浸泡组(p < 0.05);混菌发酵进一步将染料木素含量提高至6.499 ± 0.003 mg/g。染料木素含量总体较低,单菌发酵最高为23.28 ± 2.5 μg/g,混菌发酵为24.36 ± 0.16 μg/g;糖化液浸泡处理同样显著促进染料木素生成(p < 0.05)。综合分析表明,马铃薯糖化液浸泡与混菌发酵均能有效提高纳豆总异黄酮含量及各异黄酮组分水平。这些结果提示,马铃薯糖化液营造了有利的代谢环境,促进异黄酮的释放与转化。本实验中,糖化液浸泡显著提高纳豆β-葡萄糖苷酶活性(图1C),与大豆苷和染料木苷含量的上升趋势一致,表明酶活增强是驱动苷元型异黄酮积累的重要因素。值得注意的是,尽管β-葡萄糖苷酶活性升高,大豆苷和染料木苷等糖苷型异黄酮并未减少,反而在混菌发酵中显著增加。这可能是因为马铃薯糖化液提供了充足碳源与营养,促进结合态异黄酮释放,并改变糖苷水解与苷元积累之间的平衡,使糖苷释放速率超过其水解速率。结果,苷元与糖苷同时积累。由于大豆苷元和染料木素等苷元具有抗氧化、降血压等强生物活性,糖化液浸泡与共发酵的组合策略显著提升了纳豆的功能价值。
【数据】大豆苷:清水单菌3.01 ± 0.107 mg/g→1:3单菌3.79 ± 0.167 mg/g→混菌5.03 ± 0.039 mg/g;大豆苷元:2.19 ± 0.023→3.19 ± 0.012→4.53 ± 0.052 mg/g;染料木苷:1:3单菌4.2 ± 0.34 mg/g;染料木素:单菌23.28 ± 2.5 μg/g、混菌24.36 ± 0.16 μg/g;混菌染料木素(苷)6.499 ± 0.003 mg/g;显著性:p < 0.05
3.4 不同浓度马铃薯糖化液对纳豆抗氧化活性的影响
如图2所示,马铃薯糖化液在GUTU09单菌和GUTU09+BLH16共发酵体系中总体均提高了纳豆的抗氧化活性。与清水浸泡对照相比,1:2配比糖化液浸泡后,GUTU09单菌组DPPH自由基清除率从59.24 ± 0.57%升至68.53 ± 0.36%。共发酵组中,1:3处理DPPH清除率达82.41 ± 0.47%,显著高于相应对照组(p < 0.05)。FRAP、ABTS·+和总还原力测定呈现相似趋势。1:2糖化液处理后,FRAP值在单菌组达0.85 ± 0.01 mmol Fe²⁺/L,共发酵组约0.83 mmol Fe²⁺/L。ABTS·+清除率在单菌体系从81.67 ± 0.51%升至87.09 ± 1.80%,共发酵体系从90.61 ± 0.77%升至93.32 ± 0.12%。糖化液浸泡纳豆的总还原力也显著高于清水浸泡样品。抗氧化活性的增强可能与马铃薯来源生物活性成分的综合作用有关。
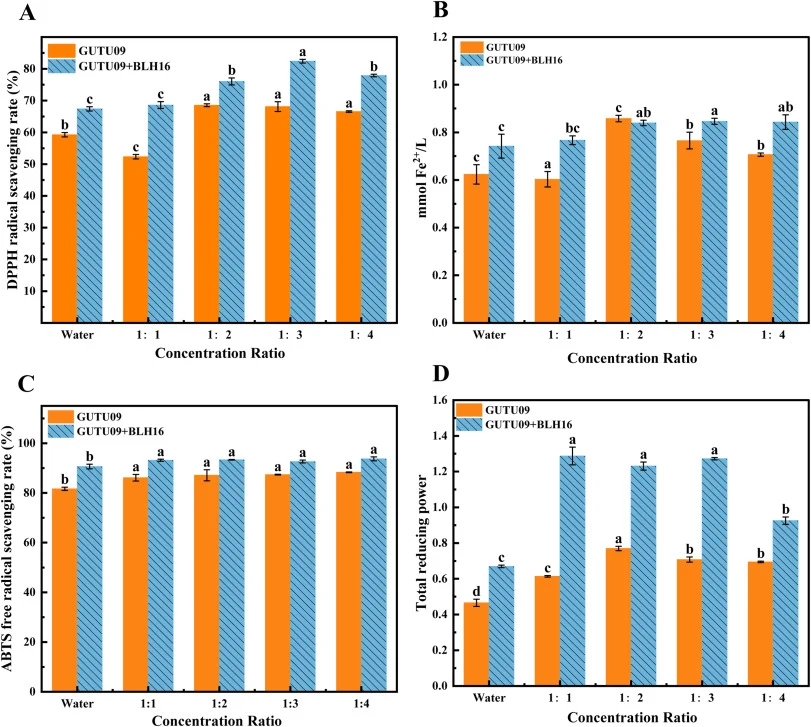
【数据】DPPH单菌:59.24 ± 0.57%→68.53 ± 0.36%(1:2);DPPH共发酵:82.41 ± 0.47%(1:3);FRAP:单菌0.85 ± 0.01 mmol Fe²⁺/L、共发酵约0.83 mmol Fe²⁺/L(1:2);ABTS·+:单菌81.67 ± 0.51%→87.09 ± 1.80%,共发酵90.61 ± 0.77%→93.32 ± 0.12%;显著性:p < 0.05
讨论与解读
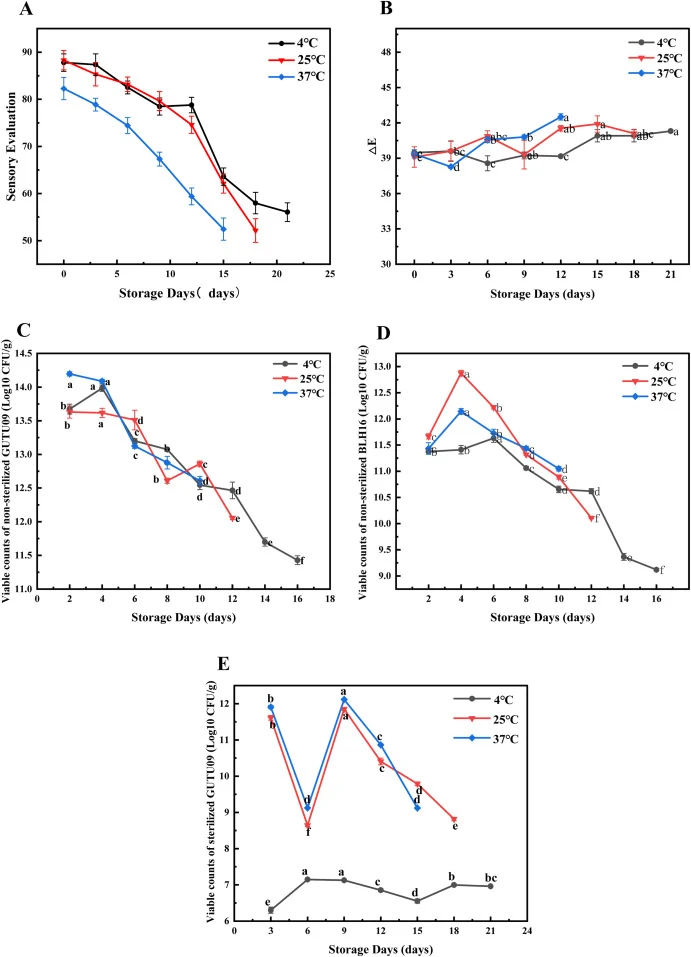
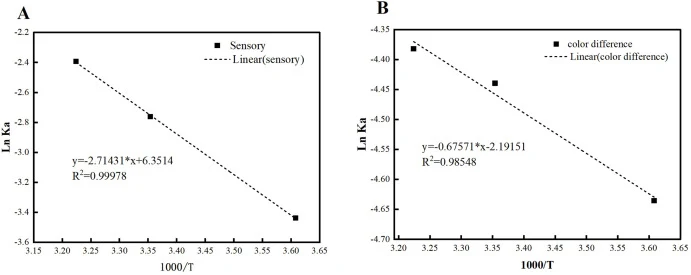
本研究证明,马铃薯糖化液能够改善纳豆芽孢杆菌GUTU09与动物双歧杆菌乳亚种BLH16共发酵纳豆的品质。综合纳豆激酶活性、微生物存活、生物胺降低、抗氧化能力与感官品质的比较评价,1:2马铃薯糖化液配比整体表现最佳。基于Arrhenius的货架期模型进一步表明,在所测条件下色差是预测品质劣变更合适的指标,4、25、37 °C下预测货架期分别为8、7、6天。这些发现为开发品质更优、贮藏稳定性更可预测的马铃薯功能纳豆产品提供了理论与技术支撑。
编译者解读:该研究的巧思在于把马铃薯糖化液当作"营养调控器"而非单纯碳源——用可发酵糖同时撬动菌体生长、酶分泌和异黄酮转化,再以双菌共发酵补足代谢互作。1:2配比的综合最优说明糖浓度存在明确窗口,过高反而因渗透胁迫或碳氮失衡反噬。局限也明显:感官评价仅20人、货架期模型基于加速试验外推,且生物胺与抗氧化只做了表型关联,未深入到代谢通路层面。对合成生物学而言,这提示底物工程与菌群设计需协同优化,而非单点加料。
参考来源
期刊:Food Bioscience, 2026
DOI: 10.1016/j.fbio.2026.109716
DOI: 10.1016/j.fbio.2026.109716