来源:Flux rewiring enables native D-glucosamine production in Escherichia coli(Metabolic Engineering)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
D-氨基葡萄糖是医药、营养品和功能材料领域的重要氨基糖,其工业生产长期依赖甲壳类生物质的化学提取。本研究在大肠杆菌中重新审视了一株被改造用于积累D-景天庚酮糖的菌株,意外发现其具备内源合成D-氨基葡萄糖的能力。通过筛选磷酸酶、解除GlmS产物抑制、删除NagB回补反应、优化氮代谢与培养条件,摇瓶水平产量提升至9.2 g L−1,并揭示了磷酸酶身份决定碳通量在D-氨基葡萄糖与D-景天庚酮糖之间分配的关键机制。
研究背景
D-氨基葡萄糖是一种高附加值氨基糖,广泛用于制药、营养补充剂和功能材料。它既是多种生物活性化合物与高分子材料的关键前体,也被大量添加进人类与动物的膳食补充剂中,尤其用于宠物食品和兽医配方,以支持关节健康、缓解骨关节炎相关症状。在食品领域,D-氨基葡萄糖还因参与美拉德反应、生成风味活性物质并影响甜味与鲜味等感官属性而受到关注。2024年全球氨基葡萄糖市场规模估计为11.0亿美元,预计2025至2034年复合年增长率为5.63%。
应用规模虽大,工业生产方式却仍以甲壳类外壳来源的几丁质生物质化学提取为主。这条路线带来可持续性与过敏原方面的顾虑,也推动人们寻找可放大、可持续、不依赖动物源原料的替代生产途径。大肠杆菌能够直接以D-葡萄糖为底物、经内源代谢合成D-氨基葡萄糖,这一未被充分利用的氨基糖合成能力成为本研究的设计起点。作者此前针对中性稀有糖建立了"磷酸化—去磷酸化"策略,本研究将该策略延伸至氨基糖合成,并系统考察磷酸酶选择、氮代谢与培养条件对产量的影响。
研究方法
2.1 试剂
分子克隆实验所用的全部酶均购自New England Biolabs(NEB)。所有合成寡核苷酸由Integrated DNA Technologies合成。Sanger测序与全质粒测序由Genewiz提供。D-氨基葡萄糖与D-景天庚酮糖购自Tokyo Chemical Industry。D-葡萄糖购自Fisher Scientific。
【数据】酶供应商:NEB;寡核苷酸供应商:IDT;测序服务:Genewiz;D-氨基葡萄糖与D-景天庚酮糖供应商:Tokyo Chemical Industry;D-葡萄糖供应商:Fisher Scientific;原文未详述试剂用量
2.2 菌株与质粒
本研究所用全部菌株与质粒分别列于表1和表2。全部寡核苷酸列于表S1。质粒采用序列与连接非依赖克隆(SLIC)构建。构建的质粒经测序验证。本研究所用质粒的构建指南详见表S2。基因缺失与基因插入等基因组改造采用CRISPR-Cas9介导的同源重组构建。用于基因缺失与插入的线性DNA修复片段通过PCR组装扩增基因组DNA或质粒DNA构建。用于CRISPR-Cas9介导同源重组的sgRNA编码质粒以pTargetF质粒(Addgene #62226)为模板、采用Q5定点突变(New England Biolabs)构建。全部基因组改造均经测序验证。本研究所用CRISPR-Cas9介导基因改造的指南详见表S3。
【数据】克隆方法:SLIC;基因组改造方法:CRISPR-Cas9介导同源重组;sgRNA质粒模板:pTargetF(Addgene #62226);定点突变试剂盒:Q5 site-directed mutagenesis(NEB);验证方式:测序;原文未详述PCR循环参数
2.3 培养条件
过夜培养物在37 °C、3 mL含相应抗生素的Luria-Bertani(LB)培养基中培养。抗生素浓度如下:壮观霉素(50 μg mL−1)、氨苄青霉素(200 μg mL−1)、卡那霉素(50 μg mL−1)、庆大霉素(15 μg mL−1)。M9基本培养基由33.7 mM Na2HPO4、22 mM KH2PO4、8.6 mM NaCl、9.4 mM NH4Cl、2 mM MgSO4、0.1 mM CaCl2、A5微量元素混合液(2.86 mg l−1 H3BO3、1.81 mg l−1 MnCl2·4H2O、0.079 mg l−1 CuSO4·5H2O、49.4 μg l−1 Co(NO3)2·6H2O、0.22 g l−1 ZnSO4.7H2O、0.39 g l−1 Na2MoO4.2H2O)、不同浓度的葡萄糖以及相应抗生素组成。M9P培养基由M9基本培养基添加5 g L−1酵母提取物与相应抗生素组成。M9YT培养基由M9基本培养基添加6 g L−1酪蛋白消化蛋白胨、12 g L−1酵母提取物与相应抗生素组成。所用诱导剂为1 mM异丙基-β-D-1-硫代吡喃半乳糖苷(IPTG)。600 nm光密度(OD600)用Synergy H1混合板读仪(BioTek Instruments, Inc.)测定。
【数据】过夜培养:37 °C、3 mL LB;壮观霉素:50 μg mL−1;氨苄青霉素:200 μg mL−1;卡那霉素:50 μg mL−1;庆大霉素:15 μg mL−1;M9成分:33.7 mM Na2HPO4、22 mM KH2PO4、8.6 mM NaCl、9.4 mM NH4Cl、2 mM MgSO4、0.1 mM CaCl2;M9P添加:5 g L−1酵母提取物;M9YT添加:6 g L−1酪蛋白消化蛋白胨、12 g L−1酵母提取物;IPTG:1 mM;OD测定仪器:Synergy H1
2.4 D-氨基葡萄糖与D-景天庚酮糖生产实验
对于常规细胞密度生产实验,将过夜培养物按1%接种至3 mL M9P培养基或M9YT培养基中。细胞在37 °C培养至所述OD600,必要时用1 mM IPTG诱导,随后在30 °C培养24 h。
【数据】接种量:1%;培养体积:3 mL;培养基:M9P或M9YT;第一阶段温度:37 °C;诱导剂浓度:1 mM IPTG;第二阶段温度:30 °C;第二阶段时间:24 h
2.5 糖定量
D-葡萄糖、D-氨基葡萄糖与D-景天庚酮糖浓度分析采用高效阴离子交换(HPAE)结合脉冲安培检测(PAD),仪器为ICS-5000+系统,配CarboPac PA20 3 × 150 mm(Thermo Fisher)与Dionex™ AminoTrap柱(Thermo Fisher)。平衡相为脱气MilliQ水配制的50 mM NaOH,流速0.3 mL min−1,运行10 min。流动相为脱气MilliQ水配制的50 mM NaOH,流速0.3 mL min−1,运行20 min。第20至50分钟流动相切换为200 mM NaOH。柱温箱维持30 °C。HPAE-PAD分析样品制备:取300 μL培养液于17,000 g离心3 min。上清稀释250倍,加至0.2 mm PVDF亲水膜96孔过滤板,2000 g离心5 min收集至聚苯乙烯96孔板。糖浓度用真实标准品制备的外标曲线定量。
【数据】检测系统:ICS-5000+ HPAE-PAD;色谱柱:CarboPac PA20 3 × 150 mm + AminoTrap;平衡相:50 mM NaOH、0.3 mL min−1、10 min;流动相:50 mM NaOH、0.3 mL min−1、20 min;第20–50分钟:200 mM NaOH;柱温:30 °C;样品体积:300 μL;离心:17,000 g、3 min;稀释倍数:250倍;过滤板:0.2 mm PVDF亲水膜;过滤离心:2000 g、5 min;定量方式:外标曲线
2.6 结构预测
使用ColabFold v1.5结合AlphaFold2,对野生型、GlmS54(A38T、R249C、G471S)与GlmS*(A38T、R249C)的全长GlmS单体结构(609个残基)进行预测。多序列比对用MMseqs2针对ColabFold数据库生成。每个变体使用AlphaFold2-multimer-v3权重、3次循环生成5个模型,随后进行AMBER力场弛豫。每个变体按pLDDT选取排名最高的模型用于下游分析。模型质量以平均pLDDT与pTM评分评估。
【数据】结构预测工具:ColabFold v1.5 + AlphaFold2;蛋白长度:609个残基;变体:野生型、GlmS54(A38T/R249C/G471S)、GlmS*(A38T/R249C);MSA工具:MMseqs2;权重:AlphaFold2-multimer-v3;循环数:3;每变体模型数:5;弛豫力场:AMBER;模型选择标准:pLDDT最高;质量指标:平均pLDDT、pTM
2.7 Rosetta Cartesian ΔΔG计算
各突变对蛋白质热力学稳定性的影响采用Rosetta Cartesian ΔΔG方案评估。首先用Rosetta FastRelax对野生型GlmS的最佳ColabFold模型进行精修,加坐标约束(ref2015评分函数,500条独立轨迹),选取最低能量结构作为参考。Cartesian ΔΔG计算使用ref2015_cart评分函数,每个突变3次迭代。分别计算A38T、R249C、G471S的单点ΔΔG值,以及双突变(A38T/R249C)与三突变(A38T/R249C/G471S)的组合ΔΔG值。突变文件指定每个位点的野生型与突变型残基身份,组合变体同时包含全部组成突变。稳定性效应参照Kellogg等的指南解读,ΔΔG值< 5 REU视为蛋白质功能可耐受。
【数据】精修方案:Rosetta FastRelax;评分函数:ref2015;独立轨迹:500条;ΔΔG评分函数:ref2015_cart;迭代次数:3次/突变;单点突变:A38T、R249C、G471S;组合突变:A38T/R249C、A38T/R249C/G471S;耐受阈值:ΔΔG < 5 REU
2.8 蛋白–配体复合物建模
各GlmS变体与GlcN-6-P的复合物结构用Boltz-2预测。输入文件指定全长蛋白序列与以SMILES字符串表示的GlcN-6-P配体(N[C@H]1C(O)O[C@H](COP(=O)(O)O)[C@@H](O)[C@@H]1O)。同时建模单体(单链+配体)与同源二聚体(两条相同链+每条链一个配体)复合物。多序列比对用ColabFold MSA服务器生成。结构预测使用Boltz-2默认模型,每个输入一个样本。预测置信度以Boltz-2置信度评分、配体ipTM与蛋白ipTM评估。配体结合构象分析用BioPython测量配体重原子与蛋白残基重原子之间的最小原子间距离。突变到配体的距离以同样方式测量。蛋白–配体界面的预测比对误差(PAE)值从Boltz-2输出中提取。
【数据】建模工具:Boltz-2;配体:GlcN-6-P(SMILES:N[C@H]1C(O)O[C@H](COP(=O)(O)O)[C@@H](O)[C@@H]1O);复合物形式:单体、同源二聚体;MSA服务器:ColabFold MSA;每输入样本数:1;置信度指标:Boltz-2置信度评分、配体ipTM、蛋白ipTM;距离分析工具:BioPython;界面指标:PAE
2.9 统计分析
数据以三次生物学重复的平均值±标准差表示。统计分析采用单因素方差分析(ANOVA),随后进行Dunnett多重比较检验(双侧)。统计显著性定义为P ≤ 0.05。
【数据】重复数:3次生物学重复;数据表示:平均值±标准差;统计方法:单因素ANOVA + Dunnett多重比较检验(双侧);显著性阈值:P ≤ 0.05
研究结果
3.1 大肠杆菌的内源D-氨基葡萄糖生产能力
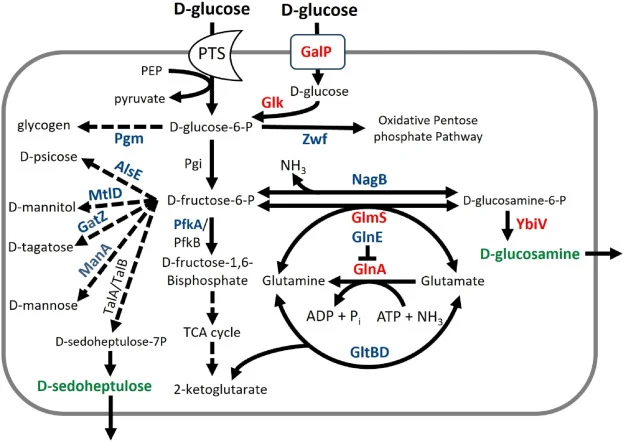
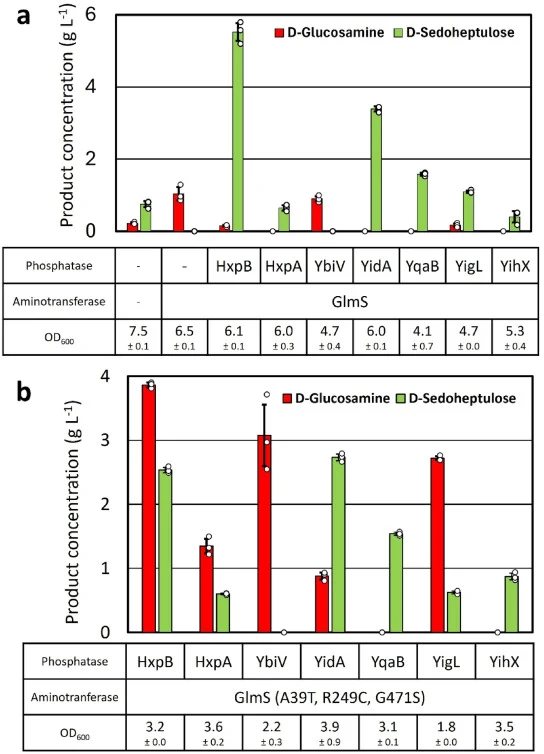
在前期工作中,AL4731(ΔpfkA Δzwf ΔalsE ΔmanA Δpgm ΔgatZ ΔmtlD,表1)被改造用于将碳通量从主要葡萄糖利用途径与竞争性糖产物中分流,并被证明可积累D-景天庚酮糖(图1)。在以D-葡萄糖对该菌株重新考察时,除预期的D-景天庚酮糖外,我们还检测到D-氨基葡萄糖的积累(图2a)。AL4731(表1)积累了0.2 g L−1 D-氨基葡萄糖与0.75 g L−1 D-景天庚酮糖(图2a)。在无外源酶的情况下出现D-氨基葡萄糖积累,表明大肠杆菌天然具备将D-葡萄糖转化为D-氨基葡萄糖的酶学能力。这些结果进一步说明,系统性消除竞争性碳汇可以揭示通常被主导代谢途径掩盖的潜在生物合成活性。
【数据】菌株:AL4731(ΔpfkA Δzwf ΔalsE ΔmanA Δpgm ΔgatZ ΔmtlD);D-氨基葡萄糖:0.2 g L−1;D-景天庚酮糖:0.75 g L−1;碳源:D-葡萄糖;原文未详述培养温度与时间(该段未列)
3.2 面向D-氨基葡萄糖与D-景天庚酮糖生产的磷酸酶筛选
我们假设内源F6P由GlmS胺化为GlcN6P,同时谷氨酰胺转化为谷氨酸,而D-氨基葡萄糖的积累需要随后对GlcN-6P去磷酸化(图1)。GlmS催化的胺化步骤已很明确,但能够高效将GlcN6P转化为D-氨基葡萄糖的内源磷酸酶身份并不清楚,这是内源氨基糖生产中一个关键未解步骤。为突破这一限制,我们选取了一组宽底物特异性磷酸酶,通过将各基因与glmS共表达(pAL2937–pAL2943;表2)在菌株AL4731(ΔpfkA Δzwf ΔalsE ΔmanA Δpgm ΔgatZ ΔmtlD,表1)中,筛选了己糖醇磷酸酶B(HxpB)、糖磷酸酶YbiV、糖磷酸酶YidA、己糖醇磷酸酶A(HxpA)、α-D-葡萄糖-1-磷酸磷酸酶YihX、磷酸糖磷酸酶YigL与果糖-1-磷酸磷酸酶YqaB。多数情况下,该改造选择性提高D-景天庚酮糖产量,而未增强D-氨基葡萄糖积累(图2a)。鉴于这些磷酸酶底物特异性宽泛,过表达也可能通过作用于其他胞内磷酸化代谢物影响细胞生理,此类效应可能造成生长与生产表型的差异(图2)。该结果与GlcN6P对GlmS的反馈抑制一致:低效去磷酸化导致胞内GlcN6P积累,抑制F6P进一步胺化,限制流向D-氨基葡萄糖的通量。这些结果表明,当GlmS仍受产物抑制时,仅靠磷酸酶活性不足以提高D-氨基葡萄糖产量,并凸显磷酸酶身份是决定碳通量分配的关键控制点。已有研究表明,GlmS突变即GlmS54(A38T、R249C、G471S)可解除GlcN6P的反馈抑制。据此,我们接下来用glmS54替换野生型glmS,并在AL4731(ΔpfkA Δzwf ΔalsE ΔmanA Δpgm ΔgatZ ΔmtlD,表1)中共表达同一组内源磷酸酶(pAL2906、pAL2907、pAL2908、pAL2909、pAL2910、pAL2911、pAL2912,表2)。与野生型酶相反,glmS54的表达在多种磷酸酶背景下均大幅提高D-氨基葡萄糖积累(图2b),表明GlcN6P反馈抑制被解除、经GlmS催化胺化反应的通量增加。引人注目的是,D-氨基葡萄糖与D-景天庚酮糖之间的相对分配随共表达磷酸酶身份而变化,说明磷酸酶底物偏好是代谢通量分配的主导决定因素。在所评价的磷酸酶中,额外表达ybiV独特地将碳通量导向专一性D-氨基葡萄糖生产,产出3.07 g L−1 D-氨基葡萄糖,未检测到D-景天庚酮糖生成(图2b)。相反,其余所有磷酸酶均支持不同程度的D-景天庚酮糖生成。该结果确定YbiV为内源D-氨基葡萄糖生物合成的选择性磷酸酶,并确立磷酸酶身份是该平台内定向产物特异性的有力控制点。
【数据】菌株:AL4731(ΔpfkA Δzwf ΔalsE ΔmanA Δpgm ΔgatZ ΔmtlD);共表达质粒:pAL2937–pAL2943(野生型glmS筛选)、pAL2906–pAL2912(glmS54筛选);筛选磷酸酶:HxpB、YbiV、YidA、HxpA、YihX、YigL、YqaB;最佳结果:ybiV + glmS54 → D-氨基葡萄糖3.07 g L−1,D-景天庚酮糖未检出;其余磷酸酶:支持不同程度D-景天庚酮糖生成;原文未详述各磷酸酶对应具体滴度数值
3.3 通过替代葡萄糖转运蛋白提高葡萄糖摄取
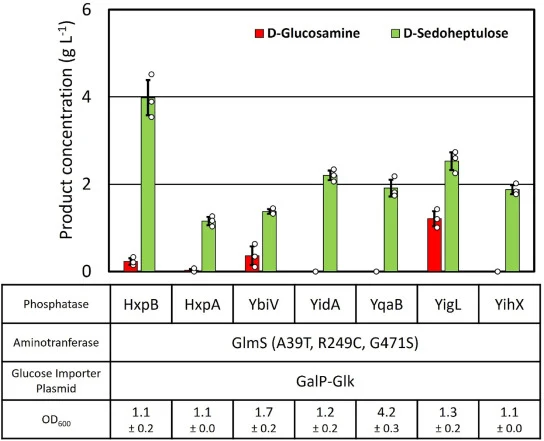
在大肠杆菌中,胞内糖磷酸积累会诱导葡萄糖磷酸胁迫,并通过破坏ptsG mRNA稳定性抑制葡萄糖摄取,ptsG编码葡萄糖特异性PTS转运蛋白。为缓解这一限制,我们额外表达了编码半乳糖-质子同向转运蛋白的galP与编码葡萄糖激酶的glk(pAL2264,表2)。这些改造使葡萄糖经GalP以不依赖PTS的方式摄取,随后由Glk磷酸化为葡萄糖-6-磷酸。该改造虽提高了葡萄糖摄取,却选择性增强D-景天庚酮糖生产、降低D-氨基葡萄糖滴度,表明增加的碳通量优先流向D-景天庚酮糖生成而非氨基糖生物合成(图3)。这些结果表明,在这些条件下葡萄糖摄取并非D-氨基葡萄糖生产的主要限制因素,单纯增加碳流入并不能增强经GlmS依赖途径的通量。此外,后续所有实验均采用YbiV作为磷酸酶,以维持选择性D-氨基葡萄糖生产。
【数据】共表达基因:galP + glk(质粒pAL2264);转运机制:GalP不依赖PTS摄取 + Glk磷酸化;表型:葡萄糖摄取提高、D-景天庚酮糖生产选择性增强、D-氨基葡萄糖滴度降低;后续实验磷酸酶:YbiV;原文未详述具体滴度数值
3.4 消除无效循环以提高D-氨基葡萄糖产量
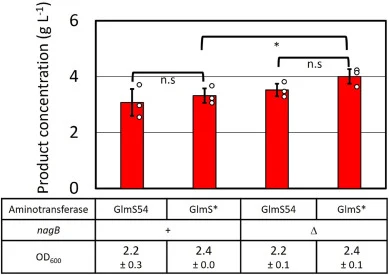
在大肠杆菌中,NagB(GlcN6P脱氨酶)催化GlmS反应的逆反应,将GlcN6P转回F6P并释放氨,从而直接对抗D-氨基葡萄糖净生物合成(图1)。为消除该无效循环、稳定流向氨基糖生成的通量,我们在AL4731中删除nagB,构建菌株AL4974(ΔpfkA Δzwf ΔalsE ΔmanA Δpgm ΔgatZ ΔmtlD ΔnagB,表1)。在该背景中共表达glmS54与ybiV(pAL2908;表2)时,D-氨基葡萄糖产量进一步提高,达到3.52 g L−1(图4)。这些结果表明,去除NagB介导的逆反应是强化内源氨基葡萄糖生物合成途径正向通量、提高D-氨基葡萄糖总体积累的有效策略。在菌株构建与筛选过程中,我们观察到某些菌落尽管预期基因型相同,却始终优于其他菌落。对来自这些高性能菌株的质粒测序发现,其glmS相对GlmS54发生了改变,含有两个氨基酸替换(A38T、R249C;pAL3004,表2)。已有研究表征了GlmS54中各单点突变的功能影响,但三个替换的合并贡献尚未与中间突变变体直接比较。表达双突变GlmS(A38T、R249C)基因产出4.01 g L−1 D-氨基葡萄糖,与GlmS54所得无显著差异(图4)。该观察表明,在所考察条件下,A38T与R249C替换足以重现与GlmS54相关的产量提升表型。因此,后续所有实验均采用双突变GlmS变体。尽管G471S在单独评价时被报道可影响GlmS活性,我们的结果提示,在A38T与R249C存在时,该替换并非获得改善的D-氨基葡萄糖生产所必需。
【数据】菌株:AL4974(ΔpfkA Δzwf ΔalsE ΔmanA Δpgm ΔgatZ ΔmtlD ΔnagB);质粒:pAL2908(glmS54 + ybiV);D-氨基葡萄糖:3.52 g L−1(ΔnagB背景);质粒pAL3004:GlmS(A38T、R249C);GlmS产量:4.01 g L−1;与GlmS54比较:无显著差异;结论:G471S非必需
3.5 GlmS变体的结构与热力学分析
GlmS的反馈不敏感变体此前已通过……(原文节选至此结束)
【数据】原文节选至此结束,后续内容未提供;已述变体:GlmS54(A38T/R249C/G471S)、GlmS*(A38T/R249C);原文未详述本节具体结构与热力学数值
讨论与解读
本研究把一条原本用于中性稀有糖的"磷酸化—去磷酸化"设计原则移植到氨基糖合成,起点却是一个"意外":为积累D-景天庚酮糖而系统删减竞争途径的AL4731,竟能凭内源酶系产出0.2 g L−1 D-氨基葡萄糖。这说明大肠杆菌的氨基糖合成潜力一直存在,只是被主导代谢掩盖。真正决定产物走向的不是碳流入量——过表达galP/glk增加葡萄糖摄取后通量反而偏向D-景天庚酮糖——而是去磷酸化步骤的酶身份。YbiV使碳通量专一性流向D-氨基葡萄糖(3.07 g L−1,D-景天庚酮糖未检出),其他磷酸酶则不同程度保留D-景天庚酮糖生成,这种"酶依赖性通量分配"进一步支撑了两种糖的可调共生产。删除nagB阻断逆反应后产量升至3.52 g L−1,而双突变GlmS*(A38T、R249C)即可重现GlmS54的产量表型(4.01 g L−1),提示G471S并非必需。经氮代谢与培养条件系统优化,摇瓶产量最终达9.2 g L−1。
编译者解读:该工作的亮点在于"减法发现"——先删竞争途径,再让内源活性显形,比直接堆叠异源基因更省。磷酸酶身份作为通量分配开关的发现,为氨基糖类产品的可调共生产提供了可复用的控制节点。局限也明显:9.2 g L−1仍是摇瓶水平,与工业需求差距大;磷酸酶底物宽泛性带来的生理副作用尚未量化;产量提升高度依赖氮代谢优化,放大后的氮供给与副产物控制仍是待解问题。
参考来源
期刊:Metabolic Engineering, 2026
DOI: 10.1016/j.ymben.2026.102526
DOI: 10.1016/j.ymben.2026.102526