来源:The Fe-S cluster assembly NFS1-ISD11-FH subcomplex is involved in heme biosynthesis in plants(Plant Physiology and Biochemistry)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
血红素与铁硫簇是植物细胞中两类最重要的含铁辅因子,二者合成途径均位于线粒体与质体,但彼此是否存在功能联系长期缺乏直接证据。本研究以拟南芥半胱氨酸脱硫酶AtNFS1为切入点,通过T-DNA插入突变体与过表达株系证明:叶片非共价结合血红素含量随AtNFS1表达水平变化约30%,血红素依赖性过氧化氢酶活性随之升降,而CAT1–3转录本未变。分离线粒体的回补实验进一步显示,氯化血红素几乎完全恢复突变体过氧化氢酶活性,原卟啉IX则无效。瞬时下调铁硫簇组装蛋白frataxin(AtFH)同样降低血红素含量与过氧化氢酶活性,并与AtNFS1下调呈叠加负效应。
研究背景
真核半胱氨酸脱硫酶NFS1是一种依赖磷酸吡哆醛(PLP)的同源二聚体,以L-半胱氨酸为底物,生成L-丙氨酸和与蛋白结合的过硫化物。NFS1主要定位于线粒体,与稳定化蛋白ISD11(约10 kDa)、酰基载体蛋白(ACP)、激活蛋白frataxin(FH)以及支架蛋白ISU1–3形成异源复合体。在线粒体内,NFS1作为铁硫(Fe-S)簇组装机器(ISC)的组分,催化Fe-S蛋白合成与成熟的第一步反应。近期研究进一步刻画了线粒体ISC组装机器的组织与功能,强调了NFS1、ISD11、ACP、frataxin与ISU支架蛋白在Fe-S簇形成和传递中的协同作用。
Fe-S簇是自然界最古老、功能最多样的辅因子之一,参与电子传递、铁硫储存、基因表达调控、光合作用及多种酶活性。另一方面,细胞色素、过氧化氢酶及某些电子传递复合体等众多蛋白需要血红素作为辅因子才能发挥功能。在哺乳动物、酵母和植物等多种生物中,frataxin在mitochondrial Fe-S簇生物发生、铁稳态和血红素合成中均发挥关键作用。然而,植物中ISC机器与血红素合成途径之间的功能关系尚不清楚。本研究聚焦NFS1-ISD11-FH亚复合体,旨在检验ISC机器是否以及如何影响拟南芥血红素合成与血红素蛋白功能。
研究方法
2.1 植物材料与生长条件
以拟南芥(Columbia Col-0)作为野生型株系。atnfs1突变体株系在AtNFS1基因(At5g65720)启动子区含有T-DNA插入;具体为SALK_000501(命名为atnfs1-1)和SALK_083681(命名为atnfs1-2),二者均表现AtNFS1表达下降。这些突变体株系的种子取自Salk研究所T-DNA Express Collection(http://signal.salk.edu/cgi-bin/tdnaexpress)。两个AtNFS1过表达株系(命名为ATNFS1-1和ATNFS1-2)为本实验室此前构建(Armas et al., 2019b)。纯合T3代与野生型植株培养于MS琼脂平板,置于温室22°C、荧光灯(Grolux, Sylvania与Cool White, Philips)下,光强150 μmol m−2 s−1,长日照光周期(16 h光照/8 h黑暗)。除另有说明外,植株按Boyes等(2001)描述的1.05生长阶段(约生长15天)收获。
【数据】生态型:Columbia Col-0;突变体:SALK_000501(atnfs1-1)、SALK_083681(atnfs1-2);过表达株系:ATNFS1-1、ATNFS1-2;培养基:MS琼脂平板;温度:22°C;光强:150 μmol m−2 s−1;光周期:16 h光照/8 h黑暗;收获时期:生长阶段1.05(约15天)
2.2 血红素含量测定
野生型、atnfs1突变体和AtNFS1过表达植株中非共价结合血红素含量按Peter与Grimm(Peter et al., 2009)所述方案并作轻微修改后测定。简言之,先用含0.1 N NH4OH的冷碱性丙酮(9:1;v/v)提取样品以去除叶绿素。随后用含5% HCl(v/v)的酸性丙酮提取血红素基团,转入乙醚,浓缩,并通过DEAE-Sepharose柱洗涤纯化。提取的血红素用Perkin–Elmer lambda 35 UV/Vis分光光度计在398 nm测定吸光度定量。标准氯化血红素溶液(Sigma-Aldrich, St Louis, MO, USA)通过将固体试剂溶于50 mM磷酸钠(pH 7.4)配制。
【数据】提取剂1:含0.1 N NH4OH的冷碱性丙酮(9:1,v/v);提取剂2:含5% HCl(v/v)的酸性丙酮;纯化介质:DEAE-Sepharose柱;检测波长:398 nm;标准品:氯化血红素(Sigma-Aldrich);标准品溶剂:50 mM磷酸钠,pH 7.4
2.3 RNA提取与qRT-PCR分析
总RNA用TRIzol试剂(Invitrogen, Carlsbad, CA, USA)按厂商说明从莲座叶(生长阶段1.05)提取。互补DNA(cDNA)用oligo(dT)和M-MLV逆转录酶(Promega, Madison, WI, USA)合成。定量实时PCR(qRT-PCR)在Stratagene Mx3000P实时PCR系统(Agilent Technologies, Santa Clara, CA, USA)上进行,以SYBRGreen I(Thermo Fisher Scientific, Waltham, MA, USA)为荧光染料,使用Go Taq DNA聚合酶(Promega, Madison, WI, USA)。用于扩增150–250 bp产物的基因特异性引物列于表1。cDNA扩增循环条件如下:95°C初始变性5 min;随后40个循环,每个循环95°C变性20 s、60°C退火30 s、72°C延伸20 s。每次扩增反应后立即进行熔解曲线分析以确认PCR特异性。此外,PCR产物在2%(w/v)琼脂糖凝胶上分析,以验证预期产物大小并确认无非特异性扩增产物。实验设四个独立生物学重复(每个重复为5株单株的混合样品),每样品三个技术重复。相对转录水平按目标基因转录丰度与β-ACTIN(At3g18780)转录丰度之比,用2−ΔΔCt法计算(Pfaffl, 2001)。
【数据】RNA提取试剂:TRIzol;逆转录酶:M-MLV;荧光染料:SYBRGreen I;聚合酶:Go Taq DNA聚合酶;扩增产物长度:150–250 bp;初始变性:95°C,5 min;循环数:40;变性:95°C,20 s;退火:60°C,30 s;延伸:72°C,20 s;凝胶浓度:2%(w/v)琼脂糖;生物学重复:4;技术重复:3;内参基因:β-ACTIN(At3g18780);计算方法:2−ΔΔCt
2.4 过氧化氢酶活性测定
过氧化氢酶活性使用完整莲座叶或按下文所述分离的线粒体组分测定。植物材料在液氮中研磨成细粉以助破碎,随后按1:10(w/v)比例与提取缓冲液匀浆,缓冲液含50 mM KH2PO4(pH 7.8)、0.5%(v/v)Triton X-100和0.5 mM EDTA,并补充1 mM PMSF作为蛋白酶抑制剂。离心后,上清用于按Aebi等(Aebi, 1984)所述方法测定过氧化氢酶活性。测定时,取5 μl上清与475 μl测定缓冲液(50 mM KH2PO4,pH 7)及20 μl 0.88 M H2O2混合。在25°C下通过监测240 nm吸光度因H2O2消耗而下降来跟踪过氧化氢酶活性(消光系数ε240 = 38 M−1 cm−1)。一单位(U)过氧化氢酶活性定义为每分钟分解1 μmol H2O2所需的酶量。所有酶活测定均设三个重复。
【数据】匀浆比例:1:10(w/v);提取缓冲液:50 mM KH2PO4,pH 7.8、0.5%(v/v)Triton X-100、0.5 mM EDTA、1 mM PMSF;上清用量:5 μl;测定缓冲液:475 μl,50 mM KH2PO4,pH 7;H2O2:20 μl,0.88 M;测定温度:25°C;检测波长:240 nm;消光系数:ε240 = 38 M−1 cm−1;单位定义:每分钟分解1 μmol H2O2;重复数:3
2.5 线粒体纯化
按Werhahn等(2001)所述并参照Kruft等(2001)的修改方法从拟南芥根中分离纯化线粒体。在这些优化条件下,所得线粒体组分基本不含质体和胞质污染。最终线粒体沉淀用含300 mM甘露醇和10 mM K2HPO4(pH 7.4)的缓冲液重悬,与此前描述一致(Busi et al., 2006a)。总蛋白浓度用Bradford法测定(Bradford, 1976),以牛血清白蛋白(BSA)为标准品。
【数据】重悬缓冲液:300 mM甘露醇、10 mM K2HPO4,pH 7.4;蛋白定量方法:Bradford法;标准品:BSA
2.6 氯化血红素与原卟啉处理
在分离线粒体悬液中加入氯化血红素或原卟啉、25°C温和振荡孵育1 h后,测定过氧化氢酶活性的恢复情况。反应介质含250 mM甘露醇、50 mM KCl、2 mM MgCl2、20 mM HEPES pH 7.4、1 mM K2HPO4、1 mM DTT、10 mM ATP、20 μM ADP、10 mM琥珀酸钠,并补充10 μM氯化血红素或10 μM原卟啉。反应通过加入10 μl线粒体悬液(总蛋白约10 mg/ml)启动。孵育后,线粒体于4°C、10,000 x g离心20 min沉淀。线粒体沉淀随后在20 mM K2HPO4缓冲液(pH 7)中超声裂解,并于4°C、12,000 x g离心10 min。上清按上述方法测定过氧化氢酶活性。
【数据】孵育温度:25°C;孵育时间:1 h;反应介质:250 mM甘露醇、50 mM KCl、2 mM MgCl2、20 mM HEPES pH 7.4、1 mM K2HPO4、1 mM DTT、10 mM ATP、20 μM ADP、10 mM琥珀酸钠;添加物浓度:10 μM氯化血红素或10 μM原卟啉;线粒体悬液:10 μl,总蛋白约10 mg/ml;离心1:10,000 x g,20 min,4°C;裂解缓冲液:20 mM K2HPO4,pH 7;离心2:12,000 x g,10 min,4°C
2.7 叶片瞬时转化
为研究frataxin对血红素生物合成途径的影响,构建AtFH(At4g03240)反义构建体于pCAMBIA 1302载体,并转化农杆菌GV3101菌株。按Mangano等(2014)所述并作轻微修改,对ATNSF1、atnfs1和野生型株系完全展开的莲座叶进行浸润。简言之,取5 ml含反义构建体的农杆菌GV3101过夜培养物,用含抗生素的LB培养基稀释,培养至OD600约0.3。加入100 μM乙酰丁香酮诱导毒力基因,28°C培养至OD600为0.6。农杆菌细胞于5,000 x g离心5 min收获,重悬于5 ml诱导培养基(0.1% w/v (NH4)2SO4、0.45% w/v KH2PO4、1% w/v K2HPO4、0.05% w/v柠檬酸钠、0.2% w/v蔗糖、0.5% v/v甘油、1 mM MgSO4,pH 5.7),补充抗生素和200 μM乙酰丁香酮,30°C孵育3 h。沉淀细胞用5 ml浸润培养基(10 mM MES、10 mM MgSO4,pH 5.7)洗涤,最终重悬于同一培养基并补充200 μM乙酰丁香酮,调整最终OD600约0.5。在植物叶片背面进行农杆菌浸润。用黄色枪头在叶片上轻划小伤口。用无针注射器,以手指在叶片正面托住叶片,对伤口周围表皮缓慢施加压力。浸润叶片做标记,植株留在培养箱中4天。随后用qRT-PCR确认AtFH下调。
【数据】载体:pCAMBIA 1302;农杆菌菌株:GV3101;起始培养体积:5 ml;诱导前OD600:约0.3;乙酰丁香酮诱导浓度:100 μM;诱导温度:28°C;诱导后OD600:0.6;离心:5,000 x g,5 min;诱导培养基pH:5.7;诱导培养基补充乙酰丁香酮:200 μM;诱导孵育:30°C,3 h;浸润培养基:10 mM MES、10 mM MgSO4,pH 5.7;最终OD600:约0.5;浸润后培养时间:4天
2.8 统计分析
统计分析使用至少三个独立生物学重复的数据。统计学显著差异用单因素方差分析(ANOVA)评估,随后进行……(原文此处节选结束,后续检验方法原文未详述)
【数据】生物学重复:至少3个;统计方法:单因素方差分析(ANOVA);后续检验:原文未详述
研究结果
3.1 AtNFS1突变体与过表达株系中的血红素含量及血红素途径转录水平
本实验室此前构建了AtNFS1突变体和过表达植株并表征了其表型。这些株系中若干ISC基因表达发生改变;具体而言,与野生型株系相比,AtFH和AtISD11转录水平在过表达株系中升高、在突变体植株中降低。其他研究如表型表征、代谢分析及铁硫定量也已完成(Armas et al., 2019b)。本工作聚焦血红素代谢。与野生型植株相比,AtNFS1表达改变植株的莲座叶血红素含量差异约30%,在过表达株系(ATNSF1-1和ATNSF1-2)中显著更高,在突变体(atnfs1-1和atnfs1-2)中更低(图1A)。
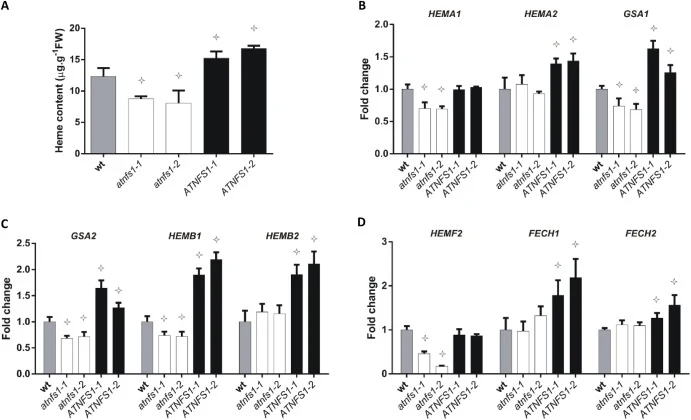
植物血红素在质体中由谷氨酸经十一步合成(Tanaka et al., 2011)。为更好理解AtNFS1表达对血红素生物合成途径的影响如何导致这些血红素含量变化,我们分析了该代谢途径中编码关键酶的若干转录本mRNA水平。我们检测了HEMA1(At1g58290)和HEMA2(At1g09940)的表达水平,这两个基因编码谷氨酰-tRNA还原酶。这些酶催化谷氨酰-tRNA生成谷氨酸-1-半醛,是四吡咯生物合成特有的第一步。我们发现HEMA1在突变体植株中下调30%,但在AtNFS1过表达株系中无显著变化。相反,HEMA2转录水平在ATNSF1-1和ATNSF1-2过表达植株中高约40%,而在atnfs1突变体株系中与野生型植株相比无显著差异(图1B)。该酶促反应是四吡咯合成的限速步骤(Tanaka et al., 2011)。GSA1(At5g63570)和GSA2(At3g48730)编码谷氨酸-1-半醛氨基转移酶,参与途径第二步中将谷氨酸-1-半醛转化为5-氨基乙酰丙酸(ALA);这两个基因的转录水平在突变体株系中降低约30%。相反,与野生型株系中的数值相比,它们在ATNFS1株系中表达增加25%至60%(图1B和C)。由于中间代谢物的毒性,5-氨基乙酰丙酸的合成也是所有植物四吡咯形成的高度调控步骤(McCormac et al., 2001)。我们还评估了两个胆色素原合酶基因HEMB1(At1g69740)和HEMB2(At1g44318)的转录水平,它们作用于途径第三步。两个基因的mRNA水平在ATNSF1-1和ATNSF1-2株系中翻倍。此外,HEMB1转录水平在atnfs1-1和atnfs1-2突变体植株中也降低约28%(图1C)。进一步,编码粪卟啉原氧化酶、参与途径第七步的HEMF2(At4g03205)表达在两个突变体株系中下调55%至80%,而在过表达株系中与野生型植株相比无显著变化(图1D)。最后,我们分析了两个铁螯合酶基因FC1(At5g26030)和FC2(At2g30390)的表达,它们催化血红素合成的最后一步。这两个基因在过表达植株中上调,FC1上调2倍,FC2上调25%至55%,但在突变体株系中与野生型相比无显著变化(图1D)。
【数据】血红素含量差异:约30%;HEMA1:突变体下调30%;HEMA2:过表达株系升高约40%;GSA1/GSA2:突变体降低约30%,过表达株系增加25%–60%;HEMB1/HEMB2:过表达株系mRNA翻倍(2倍);HEMB1:突变体降低约28%;HEMF2:突变体下调55%–80%;FC1:过表达上调2倍;FC2:过表达上调25%–55%
3.2 AtNFS1表达改变影响过氧化氢酶活性但不影响CAT基因表达
过氧化氢酶是含血红素酶,催化H2O2歧化为H2O和O2。过氧化氢酶反应速率极高且不消耗还原当量。因此,即使缺乏还原剂,它们也作为高活性酶发挥作用,因为它们催化的是歧化反应(Willekens et al., 1997)。由于血红素对其催化活性必不可少,我们检测过氧化氢酶活性,以确定与AtNFS1表达改变相关的血红素含量变化是否影响血红素依赖性酶的功能。拟南芥含三个过氧化氢酶基因:CAT2(At4g35090),编码叶片、花和角果中的主要过氧化氢酶同工型,在H2O2解毒中起主要作用;以及CAT1(At1g20630)和CAT3(At1g20620),通常丰度较低并响应不同环境条件(Yang et al., 2019)。我们测定了AtNFS1过表达和atnfs1敲低植株的总过氧化氢酶活性,并分析CAT1、CAT2和CAT3转录水平,以评估酶活性变化是否与基因表达改变相关。总过氧化氢酶活性在莲座叶中通过测定H2O2消耗确定,测定条件如材料与方法所述,其中检测到的活性主要归因于过氧化氢酶(Du et al., 2008)。我们的结果显示,与野生型植株相比,过表达植株总过氧化氢酶活性显著更高,atnfs1突变体显著更低(图2A)。具体而言,我们观察到ATNFS1株系过氧化氢酶活性增加10%至15%,而atnfs1株系降低约10%。对全部五个研究所用拟南芥株系的血红素含量(图1A)与总过氧化氢酶活性进行Spearman相关分析,显示强相关(R = 0.90,p = 4.9 × 10⁻⁴)。有趣的是,三个过氧化氢酶基因的mRNA水平在五个测试株系间无显著变化(图2B),指向血红素含量是不同株系过氧化氢酶活性变化的原因。
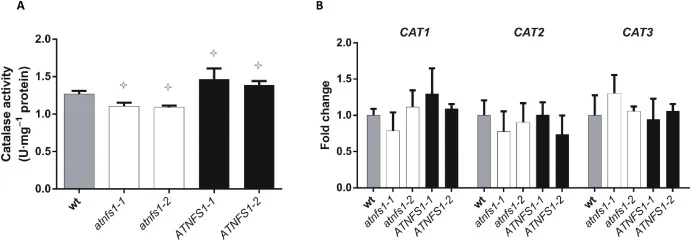
【数据】过表达株系过氧化氢酶活性增加:10%–15%;atnfs1株系降低:约10%;Spearman相关系数:R = 0.90;p值:4.9 × 10⁻⁴;CAT1/CAT2/CAT3 mRNA:五株系间无显著变化
3.3 氯化血红素恢复分离线粒体中的过氧化氢酶活性
为探究突变体株系(atnfs1-1和atnfs1-2)中观察到的过氧化氢酶活性下降是否由血红素缺乏引起,我们用分离自突变体株系的线粒体,在补充10 μM氯化血红素或10 μM原卟啉IX的条件下测定酶活性。由于已有报道氯化血红素具有内在的类过氧化氢酶活性(Grinberg et al., 1999),我们还在有或无氯化血红素条件下测定了野生型线粒体的过氧化氢酶活性作为对照。该对照实验表明,在我们的测定条件下外源氯化血红素对总过氧化氢酶活性无显著贡献。当使用分离自两个AtNFS1缺陷株系的线粒体进行测定时,与氯化血红素孵育后检测到过氧化氢酶活性几乎接近完全恢复(图3)。相反,在原卟啉IX存在下未检测到活性显著变化。综上,这些结果强烈提示血红素缺乏而非其前体是敲低株系低过氧化氢酶活性的主要原因。
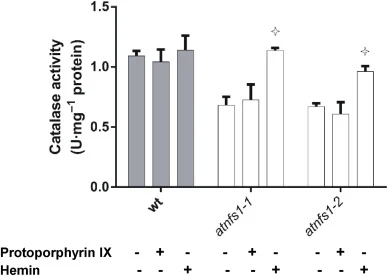
【数据】添加物浓度:10 μM氯化血红素或10 μM原卟啉IX;氯化血红素效果:过氧化氢酶活性几乎接近完全恢复;原卟啉IX效果:无显著变化
3.4 下调AtFH降低血红素含量与过氧化氢酶活性
我们此前证明,AtNFS1表达改变影响ISC线粒体途径其他基因的转录水平。具体而言,AtNFS1过表达株系AtFH表达更高,而atnsf1突变体株系frataxin表达更低(Armas et al., 2019b)。也有报道AtFH参与植物血红素生物合成(Maliandi et al., 2011),并且我们已证明AtFH具有体外铁螯合酶活性(Armas et al., 2019a)。为确定AtFH是否是导致AtNFS1表达改变株系中血红素含量变化的主要蛋白,我们通过农杆菌介导的瞬时转化,使用AtFH反义构建体(aFH)下调frataxin表达。定量实时PCR分析确认,用反义构建体转化的野生型、AtNSF1和atnsf1株系……(原文此处节选结束,后续结果原文未详述)
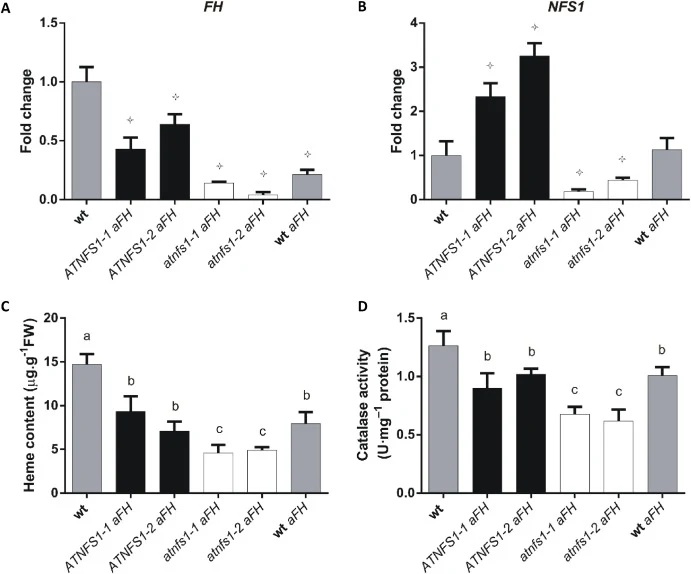
【数据】瞬时转化构建体:AtFH反义构建体(aFH);转化株系:野生型、AtNSF1、atnsf1;验证方法:qRT-PCR;具体数值:原文未详述
讨论与解读
铁参与许多基本细胞过程,如Fe-S蛋白与血红素蛋白的生物发生。参与能量代谢的类囊体与线粒体内膜电子传递复合体、乌头酸酶、琥珀酸脱氢酶以及许多定位于胞质和核内的蛋白都需要Fe-S簇才能发挥活性。另一方面,细胞色素、过氧化氢酶及某些电子传递复合体等众多蛋白需要血红素作为辅因子。在包括哺乳动物、酵母和植物在内的多种生物中,frataxin在线粒体Fe-S簇生物发生、铁稳态和血红素合成中起关键作用。本研究验证了植物中Fe-S簇与血红素生物合成途径之间存在明确联系,证明关键环节是frataxin及其与ISC簇组装机器其他成员形成的多蛋白复合体。如先前报道,frataxin在Fe-S簇和血红素生物合成中均发挥中心作用,可能通过提供铁等方式实现。此外,我们观察到AtFH具有……(原文此处节选结束,后续讨论原文未详述)
编译者解读:该研究把"铁硫簇组装"与"血红素合成"两条看似平行的途径用遗传学手段接上了线,NFS1表达量与血红素含量、过氧化氢酶活性之间约30%的定量对应关系,以及氯化血红素回补而原卟啉IX无效的线粒体实验,构成了较完整的因果链。方法上选择瞬时反义下调而非稳定敲除,适合快速验证但难以排除发育代偿。对合成生物学而言,NFS1-ISD11-FH亚复合体可作为调控血红素供给的候选模块,用于提升植物源血红素蛋白或过氧化氢酶类底盘细胞的性能;不过铁螯合酶活性归属与铁流分配机制仍未厘清,异源重构前需补足这部分定量证据。
参考来源
期刊:Plant Physiology and Biochemistry, 2026
DOI: 10.1016/j.plaphy.2026.111903
DOI: 10.1016/j.plaphy.2026.111903