来源:Metabolic engineering of Pseudomonas taiwanensis for heterologous production of myxochelin A(New Biotechnology)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
黏球菌素A是一种儿茶酚型铁载体,可抑制人5-脂氧合酶,具有抗炎与抗肿瘤潜力,但天然产量极低。本研究在稳健宿主台湾假单胞菌VLB120中建立其异源合成,从0.6 mg/L起步,经模块筛选、碳源共喂、基因过表达与前体补加,产量提升逾300倍至226.4 mg/L,并揭示了产物向结构类似物azotochelin转化的机制。
研究背景
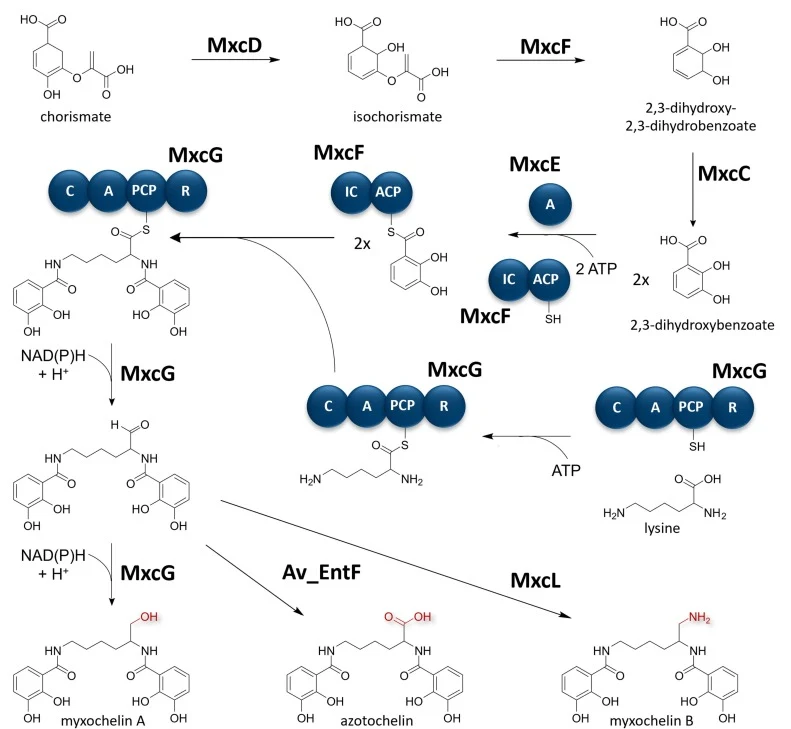
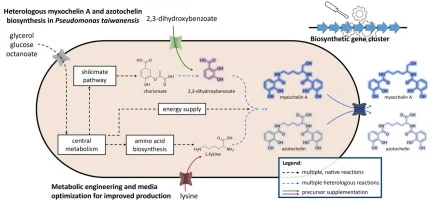
天然产物及其衍生物在医药与农业领域日益受到关注。黏球菌素类铁载体由黄色黏球菌、橙色标桩菌等黏细菌产生,其功能是帮助细胞在竞争性微生物环境中摄取铁。铁载体的铁螯合特性赋予其多种生物技术用途——可络合环境中的有毒重金属,或在农业中保护植物免受病原菌侵染、促进生长。黏球菌素A及其衍生物还被报道能强烈抑制人5-脂氧合酶,该酶是白三烯生物合成的核心,调控炎症与过敏反应,因此黏球菌素在体外表现出抗肿瘤与抗转移活性,黏球菌素A还可抑制鼠源癌细胞侵袭。黏球菌素A经非核糖体肽合成途径、由前体2,3-二羟基苯甲酸和赖氨酸缩合而成。天然产生菌产量低,限制了其应用开发,异源高产因此成为可行路线。
研究方法
2.1 培养基与培养条件
固氮菌(Azotobacter vinelandii)在30°C下培养,使用固氮菌培养基,含5 g/L葡萄糖、5 g/L甘露醇、0.1 g/L CaCl₂·2H₂O、0.1 g/L MgSO₄·7H₂O、5 mg/L Na₂MoO₄·2H₂O、0.9 g/L K₂HPO₄、0.1 g/L KH₂PO₄、0.01 g/L FeSO₄·7H₂O和5 g/L CaCO₃。固体培养基另加15 g/L琼脂。台湾假单胞菌VLB120与大肠杆菌分别于30°C和37°C培养。溶菌肉汤(LB)培养基含10 g/L胰蛋白胨、5 g/L酵母提取物、5 g/L氯化钠,适用时加15 g/L琼脂(Carl Roth)。LB培养基用于克隆操作,以及由冷冻菌种或琼脂平板接种的初始预培养,供后续生产实验使用。克隆操作、预培养或携带质粒菌株的主培养中,分别向相应培养基补加终浓度50 mg/L卡那霉素硫酸盐(Carl Roth)、100 mg/L氨苄青霉素钠盐(Carl Roth)、10 mg/L(液体)至25 mg/L(固体)庆大霉素(Carl Roth)和30 mg/L四环素盐酸盐(Carl Roth)以维持选择压力。培养大肠杆菌时,庆大霉素浓度降至10 mg/L。平板接合后,向培养基中加入终浓度25 mg/L Irgasan(Sigma Aldrich)以筛选假单胞菌。所用矿质盐培养基(MSM)改编自Hartmans等,含44.6 mM K₂HPO₄与27.2 mM NaH₂PO₄的磷酸缓冲容量、2 g/L (NH₄)₂SO₄,以及包括18 µM FeSO₄在内的微量元素。按不同浓度补加D-(+)-葡萄糖一水合物(Carl Roth)、甘油(Carl Roth)、柠檬酸(Carl Roth)、琥珀酸(Thermo Scientific)、乙酸钾(Sigma-Aldrich)或辛酸钠(Sigma-Aldrich)作为碳源。诱导nagR/PnagAa启动子系统时,向培养基中加入0.1 mM水杨酸钠(≥99.0%,Sigma-Aldrich)。2,3-二羟基苯甲酸(Sigma Aldrich)按各实验所示补加。培养基组成与遗传背景的最优筛选在System Duetz 24孔微孔板(CR1424a,EnzyScreen)中进行小规模培养,每孔装1.5 mL培养基,用三明治盖(CR1224b,EnzyScreen)密封。以葡萄糖为主培养碳源时,预培养以20 mM葡萄糖为唯一碳源。为使细胞适应甘油并缩短延滞期,相应预培养含40 mM甘油并联合2 mM葡萄糖。所有台湾假单胞菌主培养接种至OD600 0.05。为在有限培养体积下实现随时间多次取样,平行培养多组。据此,先将10 mL培养基接种,再分装至多个微孔板。System Duetz板以300 rpm、50 mm振幅振荡。为表征生产过程,将表现最佳的菌株在2 L DASGIP生物反应器(Eppendorf)中培养,装液1000 mL双倍缓冲MSM。主培养自40 mM甘油加2 mM葡萄糖的预培养接种至OD600 0.05。初始搅拌转速设为400 rpm,初始通气率60 sL/h。溶氧张力设定为30%,通过搅拌级联控制:第一级搅拌400–800 rpm(DOT控制器输出0–40%);第二级气流1–2 vvm(输出40–80%);第三级氧含量21–100%(输出80–100%)。pH设为7,通过加入2 M NaOH与2 M H₂SO₄控制。每3 h用Numera自动取样器(Securecell)取样。未过滤样品经2 × 4 mm硅胶管(VWR,228–0704)抽取,注入密闭的1.5 mL样品管(Carl Roth,NN01.1 + ND10),4°C保存至后续处理。随后,管内残留培养液冲回生物反应器。不同反应器顺序取样之间,装置用0.1 M NaOH、70%乙醇和水清洗。为考察底盘菌株pyoverdine产量的上下限,台湾假单胞菌VLB120 GRC3在BioLector XT(Beckman Coulter)中用Flowerplate培养36 h,装液1 mL。MSM预培养自LB预培养接种至OD600 0.1。主培养接种至OD600 0.1。细胞在缺铁(0 µM FeSO₄)、中等(18 µM FeSO₄)与充足(38 µM FeSO₄)铁浓度下生长,或在中等FeSO₄浓度下补加200 mg/L黏球菌素A或308 mg/L 2,3-二羟基苯甲酸。Flowerplate以1200 rpm振荡。
【数据】菌株:A. vinelandii、P. taiwanensis VLB120、E. coli;温度:30°C(A. vinelandii、P. taiwanensis)、37°C(E. coli);葡萄糖:5 g/L(固氮菌培养基)、20/30 mM(主培养);甘露醇:5 g/L;CaCl₂·2H₂O:0.1 g/L;MgSO₄·7H₂O:0.1 g/L;Na₂MoO₄·2H₂O:5 mg/L;K₂HPO₄:0.9 g/L(固氮菌)、44.6 mM(MSM);KH₂PO₄:0.1 g/L;FeSO₄·7H₂O:0.01 g/L;CaCO₃:5 g/L;琼脂:15 g/L;胰蛋白胨:10 g/L;酵母提取物:5 g/L;NaCl:5 g/L;卡那霉素:50 mg/L;氨苄青霉素:100 mg/L;庆大霉素:10–25 mg/L(大肠杆菌10 mg/L);四环素:30 mg/L;Irgasan:25 mg/L;(NH₄)₂SO₄:2 g/L;FeSO₄:18 µM(MSM)、0/18/38 µM(铁梯度实验);水杨酸钠:0.1 mM;甘油:40 mM;微孔板装液:1.5 mL;接种OD600:0.05;振荡:300 rpm、50 mm振幅;生物反应器:2 L、装液1000 mL;搅拌:400 rpm起始、400–800 rpm级联;通气:60 sL/h起始、1–2 vvm;DOT:30%;pH:7;取样间隔:3 h;Flowerplate振荡:1200 rpm;培养时间:36 h
2.2 质粒克隆与菌株构建
克隆用引物(表S1)、诊断PCR与测序引物由Eurofins genomics以未修饰寡核苷酸形式订购。基因片段扩增用Q5 High-Fidelity 2X Master Mix(New England Biolabs),诊断PCR用OneTaq Quick-Load 2X Master Mix with Standard Buffer(New England Biolabs)。模板菌落按Chomczynski与Rymaszewski方法用碱性PEG 200预裂解。所用质粒见表S2,本研究构建者的克隆细节见表S3。DNA片段用NEBuilder® HiFi DNA Assembly Master Mix(New England Biolabs)按厂商方案组装,随后转化化学感受态大肠杆菌PIR2或DH5α。质粒提取用Monarch® Plasmid Miniprep Kit(New England Biolabs)。mxcG的密码子优化按Wynands等所述用OPTIMIZER在线工具完成。缺失/整合质粒通过接合递送。为此,将大肠杆菌供体、假单胞菌受体与辅助菌株大肠杆菌HB101 pRK2013进行平板混合。向平板接合中加入提供反式转座酶的大肠杆菌DH5α λpir pTNS1,实现向受体attTn7位点的染色体整合。递送不带oriT的pJNNopt衍生质粒时,按Choi等方案进行电转化。本研究所构建与使用的菌株见表S4。
【数据】质粒:pJNNopt系列、pBG14f_FRT_Kan、pRK2013、pTNS1;抗生素:卡那霉素、氨苄青霉素、庆大霉素、四环素(浓度见2.1);菌株:E. coli PIR2、DH5α、HB101、DH5α λpir;整合位点:attTn7;原文未详述PCR程序参数
2.3 分析方法
细胞培养物光密度于600 nm(OD600)用Ultrospec 10光度计(Biochrom)测定。取出的培养样品经离心、过滤,−20°C保存,随后在配备1260 DAD WR与1260 RID的1260 Infinity II HPLC系统(Agilent Technologies)上分析。碳源定量使用Metab-AAC柱(300 × 7.8 mm,ISERA;P.N.: A1BF-A1AA0N),配Guard Cartridge Holder(ISERA,P.N.: AA13-000005)与保护柱(10 × 7.8 mm,ISERA;A1BF-A1AG0N)。分析物用5 mM H₂SO₄等度洗脱20 min,流速0.6 mL/min,温度60°C。辛酸定量及早期黏球菌素A与2,3-二羟基苯甲酸分析(图2数据)使用InfinityLab Poroshell 120 EC-C18柱(3.0 × 150 mm,2.7 μm,Agilent Technologies,P.N. 693975-02 T)配保护柱(Agilent Technologies;P.N.: 823750-911),按表S5所述梯度洗脱。后续方法开发中,黏球菌素A、azotochelin与2,3-二羟基苯甲酸的定量改用EC 100/2 Nucleoshell PFP柱(Macherey-Nagel REF 763534.20),配Column Protection System(Macherey-Nagel REF 718966)与保护柱(Macherey-Nagel REF 763538.20),40°C、按表S6梯度洗脱。此配置下,过滤样品进样前酸化至终浓度1%甲酸,促使黏球菌素A与azotochelin从铁上解离。
【数据】检测波长:600 nm(OD600);色谱柱:Metab-AAC 300 × 7.8 mm、Poroshell 120 EC-C18 3.0 × 150 mm/2.7 μm、Nucleoshell PFP EC 100/2;洗脱液:5 mM H₂SO₄;流速:0.6 mL/min;柱温:60°C(碳源)、40°C(黏球菌素/azotochelin);洗脱时间:20 min(等度);甲酸终浓度:1%;样品保存:−20°C;原文未详述表S5/S6梯度具体参数
研究结果
3.1 黏球菌素生产模块的筛选
黏球菌素的生产较为黏细菌所特有,但其前体2,3-二羟基苯甲酸与赖氨酸的合成在微生物中广泛存在。枯草芽孢杆菌的bacillibactin、大肠杆菌的enterobactin等非核糖体天然产物同样源自2,3-二羟基苯甲酸,可提供潜在的替代生产模块。为确保前体2,3-二羟基苯甲酸的充足供应,选择进入莽草酸途径通量提高的台湾假单胞菌GRC3Δ6-TYR1作为生产宿主。该菌株中实施了六个缺失(pobA、hpd、quiC、quiC1、quiC2和benABCD),通过阻断降解途径减少前体与产物损失。pykA的缺失以及TrpE(P290S)与AroF-1(P148L)的单氨基酸替换,使碳通量更多流向莽草酸途径以合成芳香化合物。此前有报道称,在该台湾假单胞菌底盘中进行异源生产时,2,3-二羟基苯甲酸产量因所用生产模块不同而存在显著差异。在此背景下,来自黄色黏球菌的mxcCDF-mtaA基因仅能实现可忽略的2,3-二羟基苯甲酸产量,而基于大肠杆菌来源基因的两个模块获得了更高滴度。因此,分别用EntC或MenF替换MxcD,同时用EntA替换MxcC。由于MxcF也是2,3-二羟基苯甲酸腺苷化所必需,故未替换,而是通过在生产模块中额外整合异分支酸酶EntB加以补充。相应基因被克隆入mini-Tn7递送载体pBG14f_FRT_Kan,以定向整合至染色体Tn7附着位点(attTn7)。该载体带有强组成型启动子(P14f)与BCD2元件,可可靠地过表达基因。除编码黏球菌素A生物合成的基因外,菌株还装备了编码相应外排泵的mxcK。为避免副产物黏球菌素B的形成,生产模块中排除了mxcL。生产实验前,通过耐受性测试进一步确认所得生产菌株的适用性。为此,将黏球菌素A以接近天然生产报道的浓度加入基础培养基(图S1)。在黏球菌素A存在下观察到的生长表明,台湾假单胞菌能够应对该儿茶酚及其相关螯合效应。黏球菌素A另一前体赖氨酸的可用性,通过缺失davB来评估,从而中断台湾假单胞菌的赖氨酸降解途径。所有菌株还携带质粒pJNNopt-mtaA,用于水杨酸诱导(nagR/PnagAa)过表达mtaA,确保MxcF与MxcG的高效翻译后修饰。所得菌株在20与30 mM葡萄糖上生长并筛选性能(图2,表S7)。
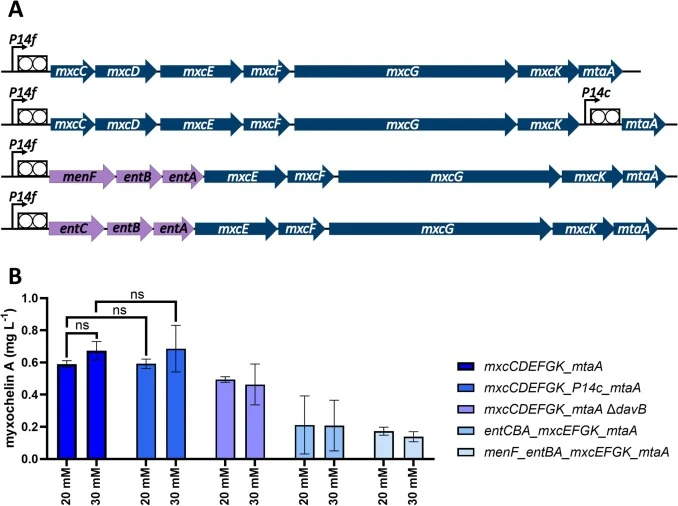
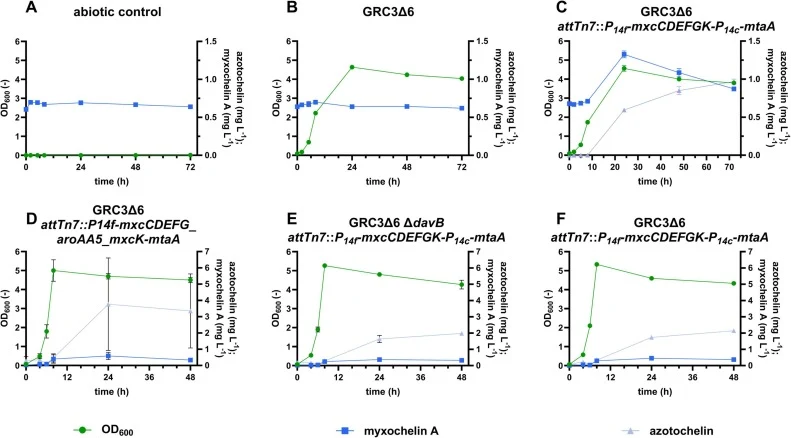
由于黏球菌素合成是相当耗能的途径,加入甲酸作为供能共底物。模块attTn7::P14f-mxcCDEFGK_mtaA最初实现0.6 ± 0.0 mg/L黏球菌素A产量。在mtaA上游整合额外合成启动子(P14c)未显著影响产量(p > 0.05),表明该菌株中MxcF与MxcG的翻译后激活并非瓶颈。所有其他旨在提高前体供应的尝试均导致黏球菌素A产量下降,attTn7::P14f-menF-entBA-mxcCDEFGK_mtaA甚至降至仅0.2 ± 0.0 mg/L。由于这些替代2,3-二羟基苯甲酸模块此前曾带来产量提升,此时前体供应似乎并非限制因素。前体向黏球菌素A的转化是高度耗能的途径。然而,提高葡萄糖供应(30而非20 mM)作为碳源与能源并未显著(p > 0.05)提升产量(≤0.7 ± 0.1 mg/L)。我们因此推测,限制在于基因表达不足,而非能量或碳源供应。据此,后续生产实验停止补加甲酸。在此背景下,生产宿主遗传背景由酪氨酸过产的GRC3Δ6-TYR1改为改造较少、生长更快的GRC3Δ6菌株,因为2,3-二羟基苯甲酸产量并非限制因素。此举旨在通过降低与芳香化合物从头合成升高相关的代谢负担,提高稳健性与基因表达。由于似乎限制的是mxc基因而非mtaA的表达水平,后续实验不再使用pJNNopt-mtaA。生产模块初始设计中,3-脱氧-D-阿拉伯庚酮糖酸7-磷酸合酶AroAA5被从基因簇中移除,因为先前所用生产宿主(GRC3Δ6-TYR1)中已存在抗反馈抑制的同源物(AroF-1P148L)。然而,众所周知基因表达可受多种因素影响,包括基因组背景,尤其对大型生物合成操纵子而言,RNA稳定性可影响异源生产模块。首批实验中,mxcC与mxcD被大肠杆菌功能相似基因替换的菌株产量较低。但遗传背景产生的非平凡极性效应可能影响基因表达。因此,为检验mxc基因簇的完整性是否有利于黏球菌素A生产,将按原始顺序mxcCDEFG_aroAA5_mxcK组合mtaA的完整基因簇与先前生产模块attTn7::P14f-mxcCDEFGK-P14c-mtaA进行比较(图3,表S7)。对同一菌株平行培养的多个样品随时间取样。此实验期间,我们观察到另一种此前未检出化合物的形成与积累。这很可能与两次实验之间为优化检测与定量而改动了HPLC分析有关。因此,该化合物很可能存在于先前样品中,只是因分析限制未被检出。产物稳定性测试显示,外源补加的黏球菌素在非生物生产条件下(图3A)或在不含黏球菌素A生物合成模块的亲本菌株培养中(图3B)均无任何不稳定。然而,所有测试生产菌株中黏球菌素A浓度在24 h后下降(图3D-F)。与非生物对照和亲本菌株相反,生产菌株中黏球菌素A在24 h后因从头合成出现瞬时峰值浓度后即下降(图3C)。仅在该培养中形成了第二种产物。起初,该额外产物与黏球菌素A同时形成,但从头合成黏球菌素A结束之后,该产物继续形成,而黏球菌素A浓度下降。这表明途径酶参与了黏球菌素A向类似化合物的转化。我们推测该相关化合物为azotochelin(图1),由固氮菌天然产生。由于无法获得azotochelin的真实标准品,我们培养固氮菌OP,并将其上清与生产菌株上清比较。依据Baars等的报道,固氮菌在充足铁供应(36 µM FeSO₄)下培养。果然,该培养中检出一个峰,其保留时间与紫外-可见光谱与生产菌株培养中未知峰相同(图S2),表明该未知……
【数据】菌株:GRC3Δ6-TYR1、GRC3Δ6、GRC3Δ6 attTn7::P14f-mxcCDEFGK-P14c-mtaA;缺失基因:pobA、hpd、quiC、quiC1、quiC2、benABCD、pykA、davB;点突变:TrpE P290S、AroF-1 P148L;葡萄糖:20/30 mM;黏球菌素A产量:0.6 ± 0.0 mg/L(初始模块)、0.2 ± 0.0 mg/L(menF-entBA模块)、≤0.7 ± 0.1 mg/L(30 mM葡萄糖);统计显著性:p > 0.05;甲酸:作为供能共底物(原文未详述浓度);固氮菌铁浓度:36 µM FeSO₄;取样时间点:24 h;诱导剂:水杨酸(0.1 mM,见2.1)
3.2 黏球菌素A向azotochelin的转化及随时间变化的产量
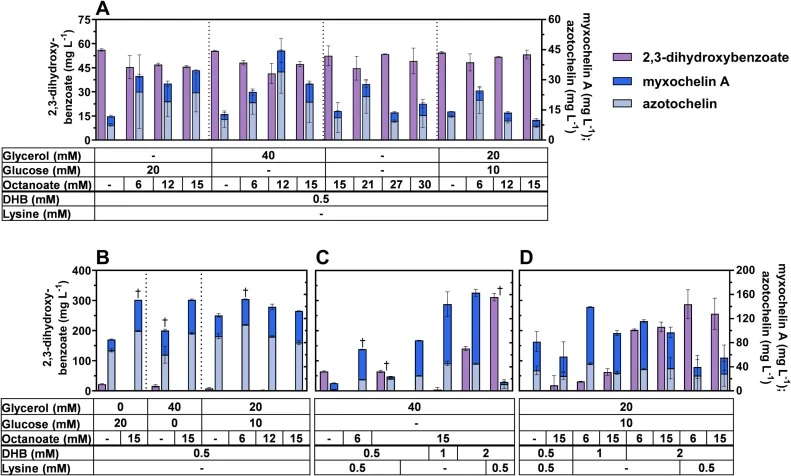
3.3 不同碳源供应对从头合成黏球菌素A与azotochelin的影响
3.4 额外过表达mxcGopt与mxcEF对黏球菌素A和azotochelin产量的影响
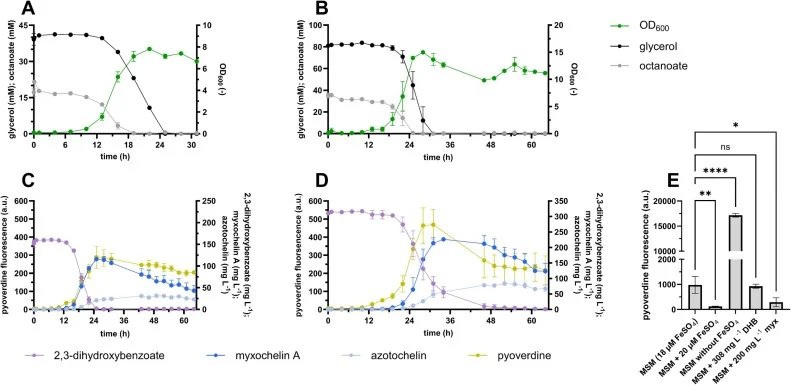
3.5 补加2,3-二羟基苯甲酸对产量的提升及补料分批发酵
讨论与解读
本研究在台湾假单胞菌VLB120中成功建立黏球菌素A的异源生产,通过菌株与培养基优化及培养规模放大至罐式发酵器,产量由0.6 mg/L逐步提升至226.4 ± 1.3 mg/L。该产量显著超过橙色标桩菌等天然产生菌,且优势在于使用了确定成分的矿质培养基。由于出现前体限制,后续聚焦提高2,3-二羟基苯甲酸从头合成的策略可能有利,尽管也可能对生物转化产生负面影响。为此,menF-entBA或其他2,3-二羟基苯甲酸生产模块可从独立位点额外过表达,而不打断黏球菌素A生产模块的完整性。此外,将水杨酸诱导的nagR/PnagAa替换为组成型启动子可摆脱对水杨酸的依赖——否则水杨酸可能被掺入而替代2,3-二羟基苯甲酸。除黏球菌素A外,还检出经间接鉴定为azotochelin的副产物,其很可能由宿主天然醛氧化酶作用于黏球菌素A合成中的醛中间体衍生而来。进一步鉴定与表征相关酶有助于优化生产。
编译者解读:该工作示范了"底盘选择—模块比较—副反应追踪—前体补加"的经典代谢工程闭环。以产量为导向的逐级优化固然有效,但azotochelin的意外生成提示:异源途径与宿主天然酶系(醛氧化酶)的交叉反应会持续分流产物,仅靠补前体难以根治。若能在合成生物学层面敲除相关醛氧化酶或重构释放机制,产物专一性与碳得率仍有提升空间;同时,产量对培养时间的敏感性也提醒下游工艺需匹配快速分离。
参考来源
期刊:New Biotechnology, 2026
DOI: 10.1016/j.nbt.2026.09.005
DOI: 10.1016/j.nbt.2026.09.005