来源:Integrated flavoromics, untargeted metabolomics, and microbial community analyses reveal the effects of Lactiplantibacillus plantarum and Saccharomyces cerevisiae on the flavour quality of Platycodon grandiflorus pickles(Food Research International)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
桔梗根是兼具保健价值的传统腌制原料,自然发酵却常伴随周期长、品质不稳与亚硝酸盐风险。本研究以未接种原料(UN)为对照,系统比较自然发酵(NF)、单接植物乳植杆菌(LP)、单接酿酒酵母(SA)及双菌共接种(LS)五种处理,整合理化指标、非靶向代谢组、GC-IMS挥发性指纹、微生物群落与Spearman关联网络,锁定5条关键差异代谢通路与72种挥发性物质,并证明共接种组在酯香、鲜味与低不良气味上得分最高。
研究背景
桔梗(Platycodon grandiflorus)为桔梗科多年生草本,其根在我国及周边国家长期兼作中药与食材,含皂苷、黄酮、酚酸等活性成分,具有降压、降脂、抗动脉粥样硬化与抗炎等药理报道。在传统韩式与中式饮食中,桔梗根常被腌制成泡菜,以脆爽、微苦和保健属性著称。传统腌渍依赖原料表面微生物的自然发酵,不额外添加菌种。操作虽简单,弊端却明显:发酵周期长、原料携带腐败菌风险、批次品质不一、缺乏标准化操作规范,难以进行质量管理。因此,接种筛选过的发酵剂进行可控发酵,逐渐被视为同时标准化品质、提升安全性与改善风味的可行路径。乳酸菌是其中研究最多的一类,而乳酸菌与酵母的协同组合能否在桔梗这类特色原料上复现优势,正是本研究切入的问题。
研究方法
2.1 化学品与发酵剂
桔梗干燥根购自中国安徽省太和县李兴镇当地农贸市场。植物乳植杆菌(L. plantarum)JYLP-375 获自中科嘉亿生物工程有限公司(中国廊坊)。酿酒酵母(S. cerevisiae)L13 获自 LAMOTHE-ABIET 有限公司(法国 Canejan)。MRS 肉汤购自广东环凯微生物科技有限公司(中国广东),YPD 肉汤购自青岛海博生物技术有限公司(中国青岛)。其余试剂均购自上海阿拉丁试剂有限公司(中国上海)。
【数据】菌株:L. plantarum JYLP-375、S. cerevisiae L13;培养基:MRS 肉汤、YPD 肉汤;试剂来源:阿拉丁试剂;原料产地:安徽太和县李兴镇;其余参数:原文未详述
2.2 样品制备与采集
将干燥桔梗根浸入蒸馏水中 3 h 复水。植物乳植杆菌 JYLP-375 于 MRS 肉汤中 37 °C 培养 12 h,酿酒酵母 L13 于 YPD 肉汤中 28 °C 培养 12 h。发酵前,活化的植物乳植杆菌与酿酒酵母细胞各用无菌水洗涤两次,重悬,并经涂布平板法测定,分别调整至终浓度 1 × 10⁹ CFU/mL 与 1.2 × 10⁸ CFU/mL。配制盐水:将 20 g NaCl 与 20 g 葡萄糖溶于 500 mL 去离子水。将复水后的桔梗根(200 g)与盐水按 1:2.5(m/v)比例装入传统陶瓷泡菜坛。发酵设五个处理:(i)不接种自然发酵(NF);(ii)植物乳植杆菌单菌(LP);(iii)酿酒酵母单菌(SA);(iv)二者共培养(LS)。LP 与 SA 各按盐水体积(500 mL)的 6%(v/v)接种。LS 处理中,两种悬液按 1:1 体积比混合(各 3%,v/v,合计 6%,v/v),使三个接种处理的总接种量均为 6%(v/v)。所有坛密封,20 °C 发酵 7 d。理化性质分析样品于 0、1、3、5、7 d 采集,本研究其他分析仅于 0 d 与 7 d 采集。所有样品于 −40 °C 保存至分析。
【数据】复水时间:3 h;L. plantarum 培养:MRS、37 °C、12 h;S. cerevisiae 培养:YPD、28 °C、12 h;菌悬液浓度:1 × 10⁹ CFU/mL(LP)、1.2 × 10⁸ CFU/mL(SA);盐水配方:20 g NaCl + 20 g 葡萄糖/500 mL 去离子水;料液比:1:2.5(m/v);原料用量:200 g;接种量:6%(v/v),LS 为各 3%(v/v);发酵温度:20 °C;发酵时间:7 d;取样点:0、1、3、5、7 d(理化)、0 与 7 d(其他);保存温度:−40 °C
2.3 理化性质分析
盐水可溶性固形物含量(SSC)用数字折光仪(TD-35,北京金科利达电子科技有限公司)测定。还原糖含量采用 3,5-二硝基水杨酸(DNS)法分析;pH 与可滴定酸含量分别用 pH 计(PHS-25,上海雷磁仪器有限公司)测定和参照 Wang 等(2024)的酸碱滴定法测定。氨基酸态氮(AAN)含量按 GB 5009.235-2016 采用甲醛滴定法测定。亚硝酸盐含量使用检测试剂盒(上海源叶生物科技有限公司)测定。
【数据】仪器:TD-35 折光仪、PHS-25 pH 计;还原糖方法:DNS 法;AAN 方法:甲醛滴定法(GB 5009.235-2016);亚硝酸盐:检测试剂盒;温度/时间/转速:原文未详述
2.4 LC-MS 非挥发性化合物分析
非挥发性代谢组谱在杭州联川生物技术有限公司使用 UHPLC-Q Exactive HF-X 系统(Thermo Fisher Scientific,美国)进行 LC-MS/MS 分析,参照 Xiong 等(2026)的方案。简言之,约 100 mg 冻干桔梗泡菜在 400 μL 含 0.02 mg/mL L-2-氯苯丙氨酸(内标)的 80%(v/v)甲醇中匀浆。上述物料在 −10 °C、50 Hz 下于冷冻研磨机中研磨 6 min。随后在 5 °C、40 kHz 下超声提取 30 min,再冷却至 −20 °C 保持 30 min。最后于 4 °C、13,000 ×g 离心 15 min。取上清液进样 LC-MS/MS。QC 样品由各提取液取 20 μL 等量混合制备,每隔 5–15 次分析进样观察系统稳定性。
【数据】样品量:约 100 mg 冻干样;提取液:400 μL 80%(v/v)甲醇 + 0.02 mg/mL L-2-氯苯丙氨酸;研磨:−10 °C、50 Hz、6 min;超声:5 °C、40 kHz、30 min;冷却:−20 °C、30 min;离心:13,000 ×g、4 °C、15 min;QC:每样 20 μL 混合,每 5–15 针监测;仪器:UHPLC-Q Exactive HF-X
2.5 GC-IMS 挥发性化合物分析
挥发性有机化合物(VOCs)使用 FlavourSpec® 仪器(德国 Dortmund)分析,对 Yang、Yao 等(2025)方法作轻微修改。每份样品取 1.0 g 加入 20 mL 顶空瓶,55 °C 加热 15 min,500 r/min 振荡,本实验三次重复测定。顶空气体(500 μL)于 80 °C 以不分流模式进样。分离在 MXT-WAX 柱(30 m × 0.53 mm × 1.0 μm,Restek,美国)上完成,载气为高纯氮(≥99.999%):初始流速 2.0 mL/min 保持 2 min,8 min 内线性升至 10.0 mL/min,再于 10 min 内升至 100.0 mL/min,保持 10 min(总计 30 min)。柱温 60 °C。相对气味活度值(ROAV)按 ROAV = Ci/Ti 计算,其中 Ci 为 GC-IMS 所得化合物相对含量(%),Ti 为其水中气味阈值(μg/kg),参照 Lin 等(2025)。ROAV ≥ 1 的组分视为关键气味活性物质。
【数据】样品量:1.0 g;顶空瓶:20 mL;加热:55 °C、15 min、500 r/min;进样:500 μL、80 °C、不分流;色谱柱:MXT-WAX(30 m × 0.53 mm × 1.0 μm);载气:氮气 ≥99.999%;流速程序:2.0 mL/min 2 min → 10.0 mL/min(8 min)→ 100.0 mL/min(10 min)→ 保持 10 min,共 30 min;柱温:60 °C;重复:3 次;ROAV 阈值:≥1
2.6 微生物群落分析
总基因组 DNA 采用 CTAB 法从盐水中提取。使用 TruSeq Nano DNA Library Preparation Kit(Illumina,美国)构建 DNA 文库,随后在杭州联川生物技术有限公司的 Illumina NovaSeq 6000 平台上进行 PE150 测序。Fastp(v0.23.4)用于去除 reads 中的接头污染与低质量碱基。剩余 reads 由 MEGAHIT(v1.2.9)从头组装,用于微生物功能与分类注释。MetaGeneMark(v3.2.6)预测组装 contigs 的编码区(CDS),并用 MMseq2(v15-6f452)聚类 CDS 序列获得 unigenes。DIAMOND(v2.1.13)基于 NR 数据库进行分类分析。差异丰度物种用 Wilcoxon 检验鉴定(P < 0.05,|log2 倍数变化| > 1)。
【数据】DNA 提取:CTAB 法;建库试剂盒:TruSeq Nano DNA Library Preparation Kit;平台:Illumina NovaSeq 6000,PE150;软件版本:Fastp v0.23.4、MEGAHIT v1.2.9、MetaGeneMark v3.2.6、MMseq2 v15-6f452、DIAMOND v2.1.13;差异物种标准:Wilcoxon P < 0.05、|log2FC| > 1
2.7 感官分析
感官评价参照 Min 等(2025)并作轻微修改,采用随机单盲设计。样品被赋予随机三位数字代码,随后以随机顺序呈递给 10 名受训评价员(5 男 5 女,22–30 岁),感官评价室温度维持 22 ± 1 °C。四类属性为色泽、质地(硬度与脆度)、滋味(酸度、鲜味与咸味)和气味(总体香气与不良气味)。评价后,评价员用蒸馏水漱口并食用原味饼干以重置味蕾。每项属性按 1–9 分评分(1 = 极弱,9 = 极强)。对于不良气味,分数越高表示气味越强、品质越低。
【数据】评价员:10 人(5 男 5 女,22–30 岁);室温室温:22 ± 1 °C;评分范围:1–9 分;设计:随机单盲、三位数字编码;属性:色泽、质地(硬度/脆度)、滋味(酸度/鲜味/咸味)、气味(总体香气/不良气味);重复:原文未详述
2.8 统计分析
除非靶向代谢组学外,所有分析均设三个生物学重复,非靶向代谢组学设六个生物学重复。所有情况下均以独立发酵坛作为生物学重复。数据以均值 ± SD 表示。使用 SPSS 27.0(IBM Corp.,美国)进行统计分析,采用单因素方差分析与 Tukey 事后检验(p < 0.05)。折线图使用 Origin 2024(OriginLab,美国)生成。Omic Studio 用于构建热图并执行 PLS-DA。KEGG 数据库用于查找差异代谢物的代谢通路,并对这些 KEGG 通路进行拓扑分析。Spearman 秩相关用于检验微生物类群与代谢物之间的关联,多重检验采用 Benjamini-Hochberg FDR 校正。相关结果仅作为关联模式报告,不作为因果证据解释。
【数据】重复数:3 个生物学重复(非代谢组)、6 个(非靶向代谢组);统计软件:SPSS 27.0;检验:单因素 ANOVA + Tukey(p < 0.05);绘图:Origin 2024;多变量:Omic Studio(热图、PLS-DA);通路库:KEGG;相关:Spearman + Benjamini-Hochberg FDR;数据表示:均值 ± SD
研究结果
3.1 桔梗泡菜理化指标的变化
发酵产物理化性质的变化,如 SSC、还原糖、pH、可滴定酸与 AAN 含量,示于图 1(A–F)。发酵开始时 SSC 约为 7.0%–7.8%,随后略有下降(图 1A)。至第 3 天,接种组的 SSC 开始逐渐下降。SA 组降幅更大,至发酵结束时降至 5.6%。还原糖作为可溶性糖的主要形式,对 SSC 贡献显著(Nguyen & Nguyen, 2025)。因此,还原糖的变化趋势与 SSC 类似。如图 1B 所示,所有组的还原糖浓度在发酵过程中逐渐下降。NF 组残余还原糖水平始终最高,LP、SA 与 LS 消耗更快。至第 7 天,LP、SA 与 LS 的还原糖浓度均低于 5 g/L,且显著低于 NF(p < 0.05)。快速消耗表明发酵剂代谢速率提高。SA 中较低的 SSC 与残糖表明,酿酒酵母的底物消耗速率快于植物乳植杆菌(Ngwenya et al., 2023)。有趣的是,LS 的 SSC 与还原糖残留水平均高于 SA(图 1A–B),提示共接种可能导致种间竞争与生长抑制(Yu et al., 2025)。酸度是泡菜风味的典型特征(Wang et al., 2022)。四组 pH 均呈下降趋势(图 1C),前三天降幅显著。发酵结束时 LP 的 pH 最低,其次为 NF,LS 与 SA 的 pH 相对较高。这一差异源于植物乳植杆菌的产酸能力,有机酸因此快速生成(Xiong et al., 2024)。SA 的 pH 下降较慢,与酵母发酵偏向产酯而非产酸相符。可滴定酸含量方面,四组均呈上升趋势(图 1D)。有意思的是,NF 发酵结束时总酸最高,其次为 LP、LS 与 SA。pH 下降并未伴随可滴定酸的严格成比例上升,这可能反映各组发酵过程中产生的有机酸种类存在差异(Thierry et al., 2023)。AAN 含量是蛋白质降解与风味前体形成的典型指标(Lin et al., 2022),在所有组中均下降(图 1E)。LP 在第 3 天 AAN 值最低,至第 7 天降至约 9.0 mg/100 g。NF 与 SA 的 AAN 浓度则相对较高。因此,LP 的快速酸化可能抑制了内源蛋白酶或微生物蛋白酶的活性,减少了蛋白质水解(Luo et al., 2023)。另一种解释是,接种的植物乳植杆菌可能以游离氨基酸作为唯一氮源生长,从而造成所观察到的耗竭。亚硝酸盐是腌制品中代表性有毒物质,也用于评估发酵蔬菜的安全性(Tong et al., 2026)。根据最新中国食品安全国家标准(GB2762-2022),发酵蔬菜中亚硝酸盐上限为 20 mg/kg。如图 1F 所示,四组在整个发酵期间亚硝酸盐浓度均在安全范围内。NF 组与 LP 组第 3 天的亚硝酸盐浓度分别约为 2.8 mg/kg 与 2.6 mg/kg。至第 7 天,所有接种组的亚硝酸盐均低于 1.5 mg/kg,LP 残留量最低。快速酸化与发酵剂优势伴随硝酸盐还原菌受到抑制,与本处观察到的较低亚硝酸盐积累一致(Song et al., 2021)。
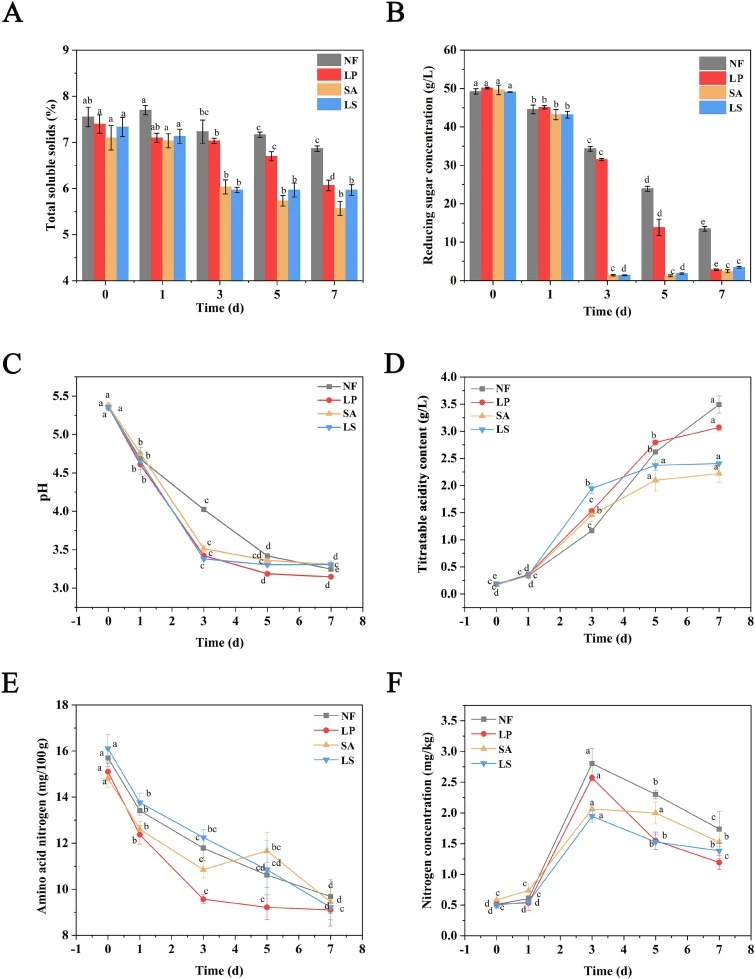
【数据】初始 SSC:7.0%–7.8%;SA 终点 SSC:5.6%;第 7 天还原糖:LP/SA/LS 均 < 5 g/L,显著低于 NF(p < 0.05);pH 最低组:LP;第 3 天 AAN 最低组:LP,第 7 天约 9.0 mg/100 g;亚硝酸盐上限:20 mg/kg(GB2762-2022);第 3 天亚硝酸盐:NF 约 2.8 mg/kg、LP 约 2.6 mg/kg;第 7 天接种组亚硝酸盐:< 1.5 mg/kg
3.2 UHPLC-MS/MS 非靶向代谢组学分析
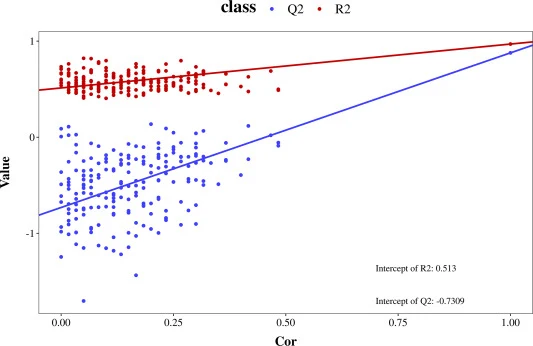
发酵后代谢物的变化为发酵桔梗泡菜的风味变化提供了基本原因。UHPLC-MS/MS 非靶向代谢组学在 18 个亚类中鉴定出 1489 种代谢物,其中有机杂环化合物(28.8%)、有机酸及其衍生物(16.7%)与类脂分子(16.7%)最为丰富。另外两个相对较大的类群是苯环型化合物(10.9%)与有机氧化合物(10.6%)(图 2A)。有机杂环化合物的丰度可能源于桔梗富含多种含氮化合物(如生物碱、皂苷)作为前体(Shi et al., 2024)。研究表明,发酵桔梗中的微生物代谢功能强,能高效地将这些前体转化为各种杂环化合物(Zhao et al., 2026b)。PLS-DA 用于考察不同发酵条件下的代谢变化。如 PLS-DA 得分图所示(图 2B),四个处理组在四个象限中良好分离,可依据发酵剂接种情况相互区分。UN 组明显位于第三象限,发酵对代谢谱产生了影响。LP 聚集于第三象限靠近 UN 处,但沿成分 2 明显分离。因此,植物乳植杆菌发酵诱导了显著的代谢改变,却未完全丧失原料特征。NF 位于第一象限,SA 与 LS 在第四象限彼此接近。因此,两种接种产生了相似的代谢响应。由此可以得出结论:发酵剂类型影响代谢组成。置换检验(n = 200)用于确定模型稳定性;Q2 截距为 −0.7309(< 0),不存在过拟合或预测性能不佳(图 S1)。
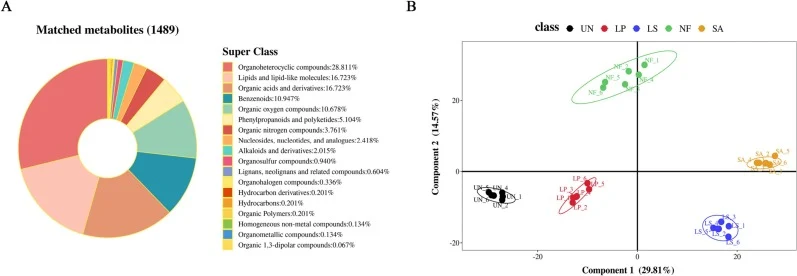
【数据】代谢物总数:1489 种,18 个亚类;有机杂环化合物:28.8%;有机酸及衍生物:16.7%;类脂分子:16.7%;苯环型化合物:10.9%;有机氧化合物:10.6%;置换检验:n = 200,Q2 截距 = −0.7309
3.3 差异代谢物谱
火山图分析显示差异代谢物的总体分布,如图 3 所示。筛选阈值采用 FC > 2、p < 0.05 与 VIP > 1。共鉴定出差异代谢物:NF vs. UN 324 种(229 上调、95 下调),LP vs. UN 326 种(225 上调、101 下调),SA vs. UN 460 种(272 上调、188 下调),LS vs. UN 413 种(192 上调、221 下调)。SA 差异代谢物数量最多,相对 UN 占总数的 30.89%,提示代谢活性显著更高,可归因于酿酒酵母的大量增殖。不同发酵方式下代谢物的类别结果见表 S1。主要差异代谢物为有机杂环化合物、有机酸及其衍生物与类脂分子。它们作为非挥发性风味组分及挥发性香气化合物的重要前体发挥作用(Liu et al., 2023)。
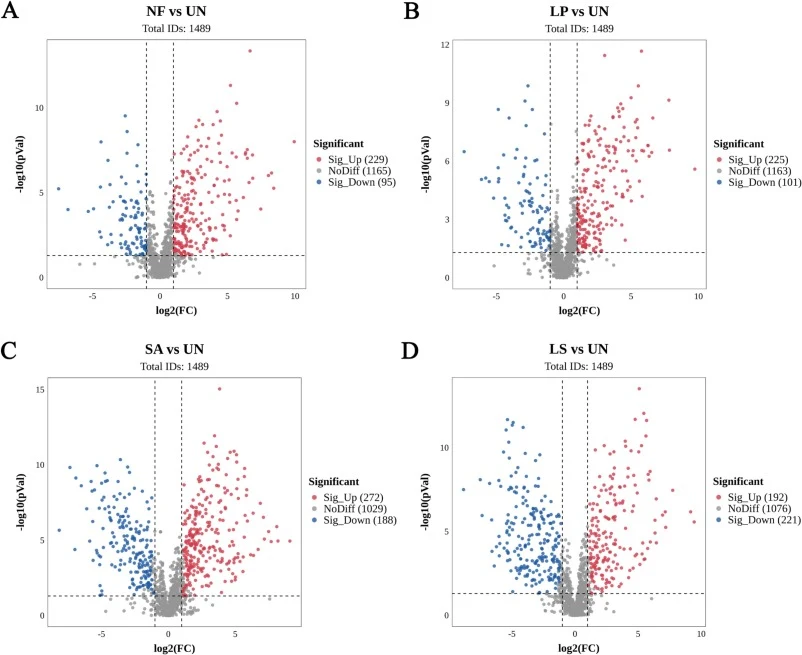
【数据】筛选阈值:FC > 2、p < 0.05、VIP > 1;NF vs. UN:324 种(229 上调/95 下调);LP vs. UN:326 种(225 上调/101 下调);SA vs. UN:460 种(272 上调/188 下调);LS vs. UN:413 种(192 上调/221 下调);SA 占比:30.89%
#### 3.3.1 有机杂环化合物
有机杂环化合物是所有发酵处理中的主要差异代谢物,微生物对氨基酸与核苷酸代谢进行了复杂的重构(Hsu et al., 2025)。嘌呤代谢网络显著改变,腺嘌呤在 NF 中几乎缺失,黄嘌呤在所有发酵样品中急剧积累,表明黄嘌呤氧化酶介导的分解代谢被激活(Wang, Li, et al., 2025)。同时,酵母驱动的色醇生物合成产生的一些风味活性代谢物显著增加,不良气味化合物 2-甲基吲哚在所有组中均减少。甜味、焦糖样的呋喃酮类,如呋喃酮 A 与 4-甲氧基-2(5H)-呋喃酮,显著减少,尤其在含酵母的组(LS 与 SA)中,可能源于微生物对前体糖的消耗。含硫杂环呈现菌株特异性轨迹:噻吩衍生物在 LP 与 LS 中显著增加,1,2-二……
【数据】嘌呤网络:腺嘌呤在 NF 几乎缺失、黄嘌呤在全部发酵样中急剧积累;2-甲基吲哚:所有组均减少;呋喃酮 A 与 4-甲氧基-2(5H)-呋喃酮:显著减少,LS/SA 尤甚;噻吩衍生物:LP 与 LS 显著增加;原文节选在此处中断,后续参数未详述
3.4 差异代谢物代谢通路分析
对差异代谢物进行 KEGG 通路富集与整合分析,结果示于图 4。富集分析图(图 4A)与五条主要代谢通路的整合分析(图 4B)共同指向五条代谢分化主通路:丙氨酸、天冬氨酸与谷氨酸代谢;丁酸代谢;精氨酸生物合成;嘌呤代谢;β-丙氨酸代谢。这些通路与氨基酸转化、有机酸生成及含氮前体代谢密切相关,构成发酵剂驱动风味差异的代谢骨架。
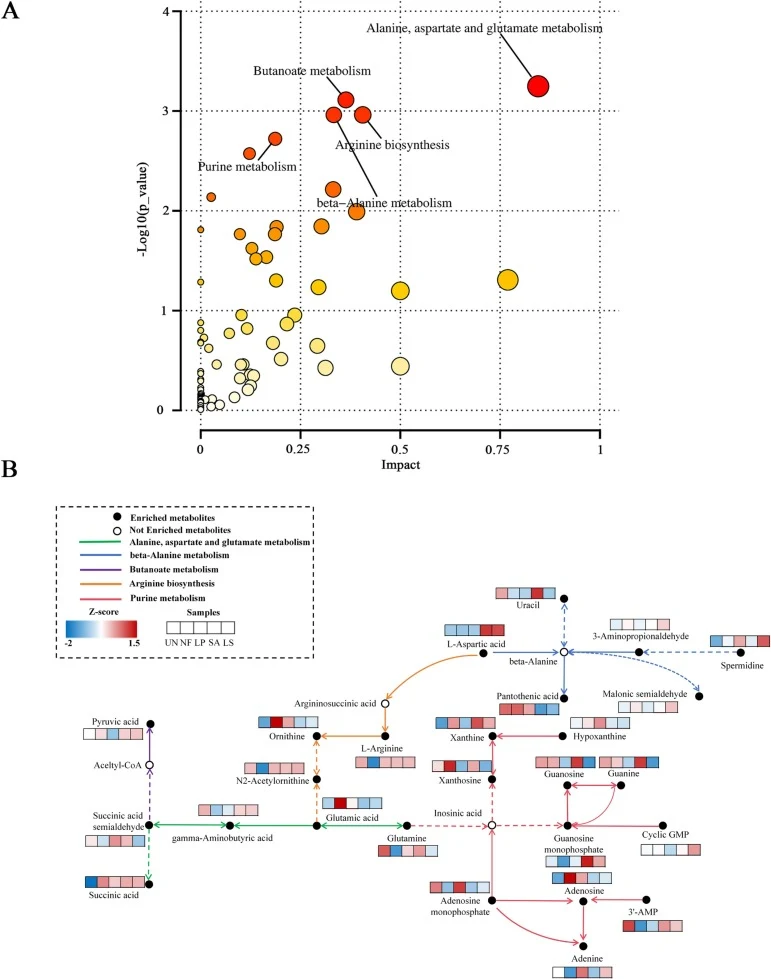
【数据】差异代谢通路数:5 条;通路名称:丙氨酸/天冬氨酸/谷氨酸代谢、丁酸代谢、精氨酸生物合成、嘌呤代谢、β-丙氨酸代谢;富集阈值:原文未详述
3.5 挥发性化合物组成与 PCA
GC-IMS 共检测到 72 种挥发性化合物。挥发性有机化合物的组成及主成分分析(PCA)示于图 5。不同发酵方式下挥发性组分的整体分布存在明显差异,含酵母的 SA 与 LS 组积累了大量果香型乙酯类物质。
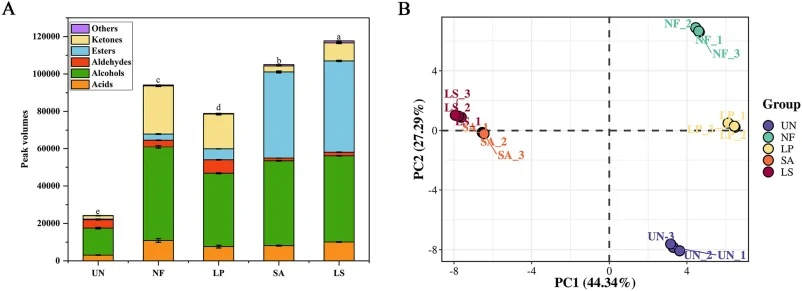
【数据】挥发性化合物总数:72 种;分析方法:GC-IMS + PCA;乙酯富集组:SA、LS;具体 PCA 方差贡献率:原文未详述
3.6 不同发酵方式下 VOC 含量的变化
不同发酵方式下桔梗泡菜挥发性有机化合物(VOC)含量的变化示于图 6。(A)二维(2D)GC-IMS 色谱图。(B)以未发酵桔梗为参比的二维差异色谱图。(C)VOCs 指纹色谱图,颜色强度反映信号强弱。
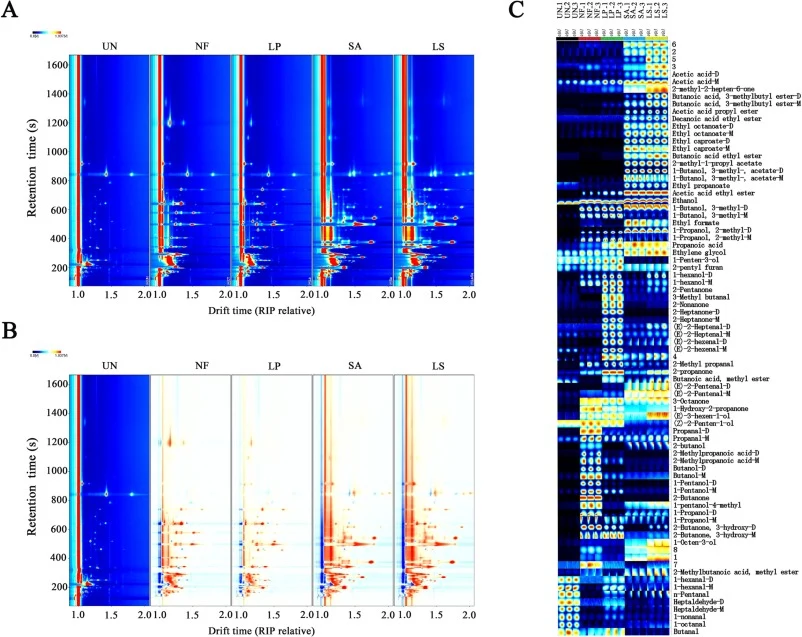
【数据】检测化合物:72 种 VOC;图谱类型:2D GC-IMS 色谱、差异色谱、指纹图谱;参比样:未发酵桔梗;具体化合物含量数值:原文节选未详述
3.7 微生物群落相对丰度比较
不同方式发酵桔梗泡菜的微生物相对丰度比较示于图 7。(A)门水平细菌相对丰度;(B)属水平细菌相对丰度;(C)门水平真菌相对丰度;(D)属水平真菌相对丰度。共接种伴随腐败相关肠杆菌科与霉菌相对丰度降低,以及乳植杆菌属与酵母属相对丰度升高。
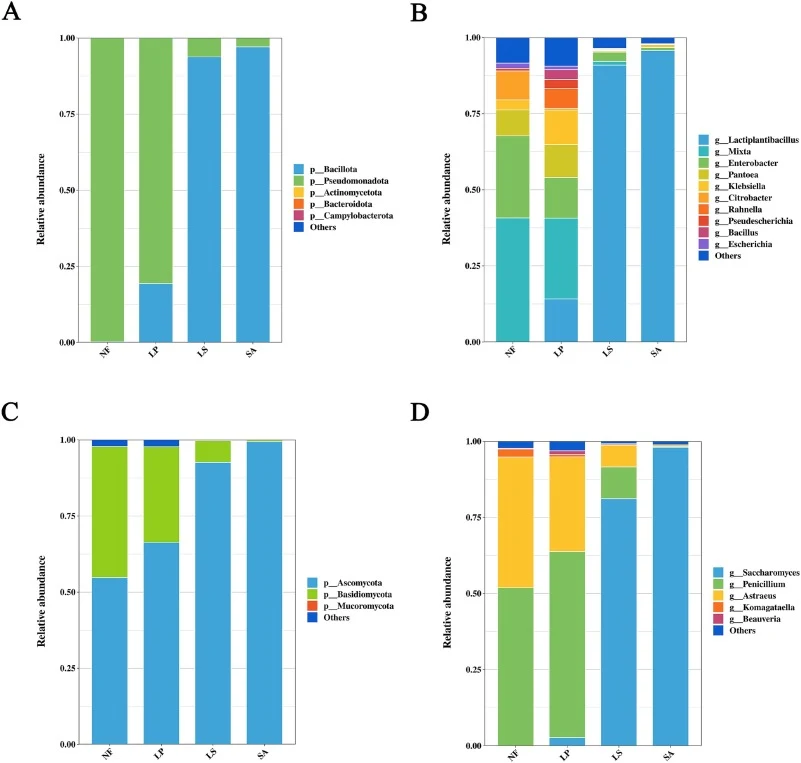
【数据】共接种组:肠杆菌科与霉菌相对丰度降低;乳植杆菌属与酵母属相对丰度升高;具体丰度百分比:原文节选未详述
3.8 微生物群落、VOCs 与代谢物的关联网络
桔梗泡菜微生物群落、VOCs 与代谢物之间的关联网络示于图 8。相关分析基于 Spearman 相关系数(|r| > 0.5,p < 0.05)。红色边表示正相关,蓝色边表示负相关。节点颜色与形状区分不同类群。Spearman 相关分析表明,乳植杆菌属与酵母属同酯类及鲜味代谢物正相关,而自然发酵富集的土著肠道细菌则与不良气味醛类相关。
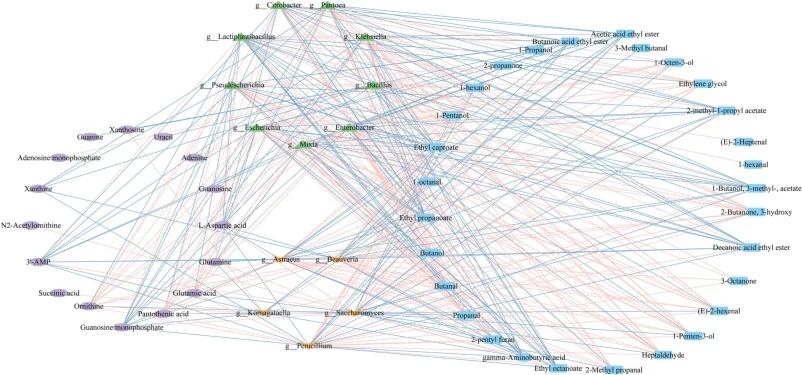
【数据】相关系数阈值:|r| > 0.5;显著性:p < 0.05;正相关:红边;负相关:蓝边;关键关联:乳植杆菌属/酵母属—酯类与鲜味代谢物正相关;肠杆菌类—不良气味醛类相关
3.9 感官评价
UN、NF、LP、SA 与 LS 的感官属性轮廓示于图 9。数据为三次独立实验的平均值。LS 组在总体香气与鲜味上得分最高,不良气味强度最低,并保持了脆度。
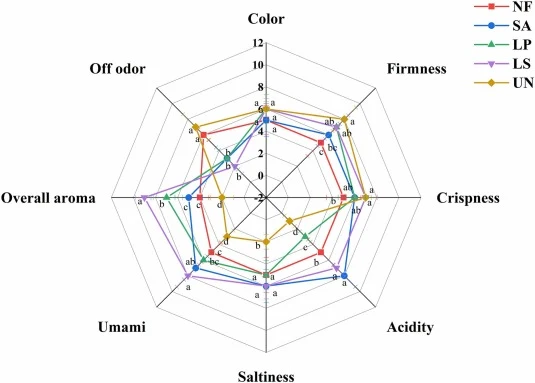
【数据】评价组数:5 组(UN、NF、LP、SA、LS);重复:3 次独立实验;最高分项:LS 的总体香气与鲜味;最低分项:LS 的不良气味强度;评分尺度:1–9 分
讨论与解读
本研究显示,与不受控的自然发酵相比,定型发酵剂接种伴随桔梗泡菜理化性质、代谢物谱、挥发性香气与微生物群落的系统性变化。单接植物乳植杆菌伴随 pH 与亚硝酸盐更快速下降,与安全性改善一致;单接酿酒酵母伴随果香型乙酯的显著积累。植物乳植杆菌与酿酒酵母共接种兼具两株单菌的特征,有机酸、呈味氨基酸与酯类处于中高水平,并伴随肠杆菌科及青霉等丝状真菌丰度降低。微生物—代谢物关联分析进一步表明,两株发酵剂是与理想风味组分关联最强的类群,而自然发酵富集的微生物则与青草味不良醛类相关。这些化学与微生物差异得到感官评价印证:LS 泡菜总体香气与鲜味得分最高,保持脆度,且在发酵处理中不良气味强度最低。综合来看,植物乳植杆菌 JYLP-375 与酿酒酵母 L13 共接种与更优的风味相关化学与感官表现相关联。
编译者解读:该研究的亮点在于用“理化—代谢组—VOC—菌群—感官”五层数据把接种效果落到具体分子上,乙酯与鲜味代谢物的正相关、肠杆菌与不良醛的关联都给出了可检验的靶点。方法学上,GC-IMS 指纹图谱与 ROAV 结合适合快速筛查关键气味物,成本低于全二维 GC-MS。局限也明显:关联分析仅为相关性,未做因果验证;单一菌株组合、单一发酵温度,结论外推需谨慎。对合成生物学而言,这组数据可作为设计共培养体系的基线——若要进一步稳定风味,可考虑对酵母的酯合成途径或乳酸菌的氨基酸代谢节点做定向改造。
参考来源
期刊:Food Research International, 2026
DOI: 10.1016/j.foodres.2026.121170
DOI: 10.1016/j.foodres.2026.121170