来源:Peptide–copper co-assembled metalloenzyme mimics with superior laccase-like activity for efficient aflatoxin B₁ degradation(Colloids and Surfaces B: Biointerfaces)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
黄曲霉毒素B₁是强致癌物,传统物理化学脱毒方法存在效率低、破坏食品品质等问题。本研究受天然漆酶多铜活性中心启发,将组氨酸、半胱氨酸和甲硫氨酸嵌入自组装LK肽骨架,与Cu²⁺协同共组装形成肽–铜胶体纳米组装体。优化后的P1-Cu²⁺模拟物催化效率kcat/Km达83.24 M⁻¹ s⁻¹,优于天然漆酶,可在90分钟内完全降解AFB₁,并在真实谷物和坚果样品中把残留量降至欧盟限量以下。
研究背景
黄曲霉毒素是污染食品和饲料的致癌次级代谢产物。联合国粮农组织统计显示,霉菌毒素污染每年造成全球高达25%的粮食损失。在已鉴定的近400种霉菌毒素中,AFB₁因强致突变性和肝毒性尤为突出,被国际癌症研究机构列为1类致癌物。全球范围内黄曲霉毒素的广泛发生对公共卫生和农业可持续性构成显著风险。
生物降解法近年来成为霉菌毒素控制的有前景策略。与紫外线照射、吸附等物理技术以及臭氧处理、碱处理等化学方法相比,酶法降解效率更高、能耗更低、环境相容性更好,对食品品质的不良影响也更小。漆酶作为一种多铜氧化酶,已被证明可作用于AFB₁、AFB₂、AFG₁、AFG₂等主要黄曲霉毒素,通过断裂双呋喃环和香豆素环等毒性结构基序,生成毒性降低或可忽略的产物。但天然漆酶成本高、稳定性差,限制了其广泛应用。本研究由此出发,以仿生界面共组装策略构建高性能金属酶模拟物,试图在催化效率与环境耐受性上同时超越天然酶。
研究方法
原文"材料与方法"部分注明:材料与方法在支持信息中详细描述(The materials and methods were described in detail in the Supporting Information)。因此本节节选未包含具体的分步操作、试剂用量、温度时间等实验参数,以下仅就原文可见的设计与表征逻辑作忠实转述,具体参数原文未详述。
在模拟物设计上,研究将天然漆酶活性位点的关键残基——组氨酸(H)、半胱氨酸(C)和甲硫氨酸(M)——引入肽序列,以建立Cu²⁺配位环境。活性残基的排列与数量(尤其是组氨酸)经过精心设计,因为它们既决定超分子纳米结构的形成,也决定酶模拟物后续的催化效能。此外,序列LKLKLKL(极性赖氨酸K与非极性亮氨酸L交替的自组装多肽)与催化组件相连,以形成高度有序的超分子结构并优化催化性能。所有设计肽的N端和C端分别用乙酰基和甲酰胺基封端,以消除带电端基之间不利的静电相互作用、稳定结构。为同时满足形成催化铜中心与组装稳定有序纳米结构的双重需求,共设计了六种Cu²⁺结合肽用于构建类漆酶金属酶模拟物(表S1和图S1)。
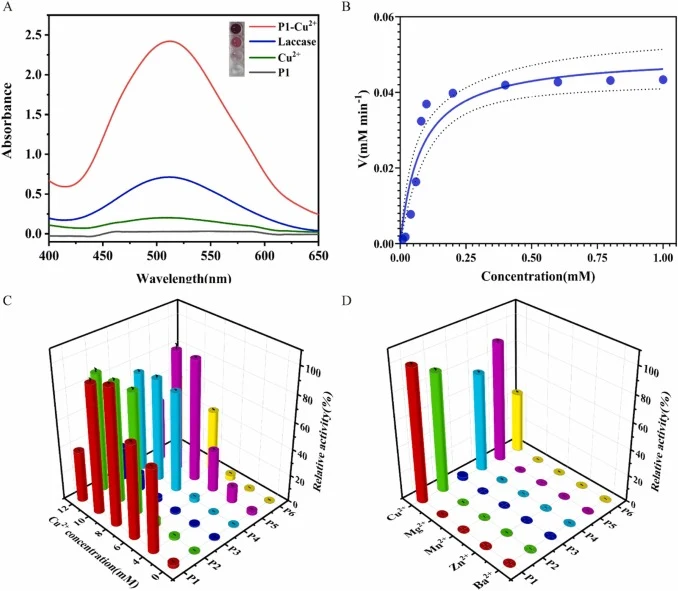
漆酶样活性采用标准显色底物2,4-二氯苯酚(2,4-DP)和4-氨基安替比林(4-AP)测定。反应中2,4-DP被氧化为苯氧自由基,随后与4-AP偶联生成红色醌亚胺产物,通过测定510 nm吸光度定量(图1A和图S2)。
【数据】肽种类:6种Cu²⁺结合肽(P1–P6);自组装序列:LKLKLKL;封端基团:N端乙酰基、C端甲酰胺基;底物:2,4-DP/4-AP;检测波长:510 nm;材料与方法细节:原文未详述(见支持信息)
结构表征方面,采用H1 NMR、圆二色谱(CD)和紫外分光光度法研究肽的二级结构与自组装程度;采用刚果红结合实验考察Cu²⁺对肽自组装结构的影响;采用透射电镜(TEM)表征Cu²⁺诱导组装前后肽的形貌变化。针对活性最高的P1-Cu²⁺模拟物,进一步开展等温滴定量热(ITC)、傅里叶变换红外光谱(FTIR)、H1 NMR、X射线光电子能谱(XPS)和电子顺磁共振(EPR)等综合结构表征,以解析构效关系。原文对上述表征的具体操作参数(样品浓度、扫描范围、滴定次数、温度等)未在节选中详述。
【数据】表征手段:CD、TEM、刚果红结合实验、ITC、FTIR、H1 NMR、XPS、EPR;具体操作参数:原文未详述
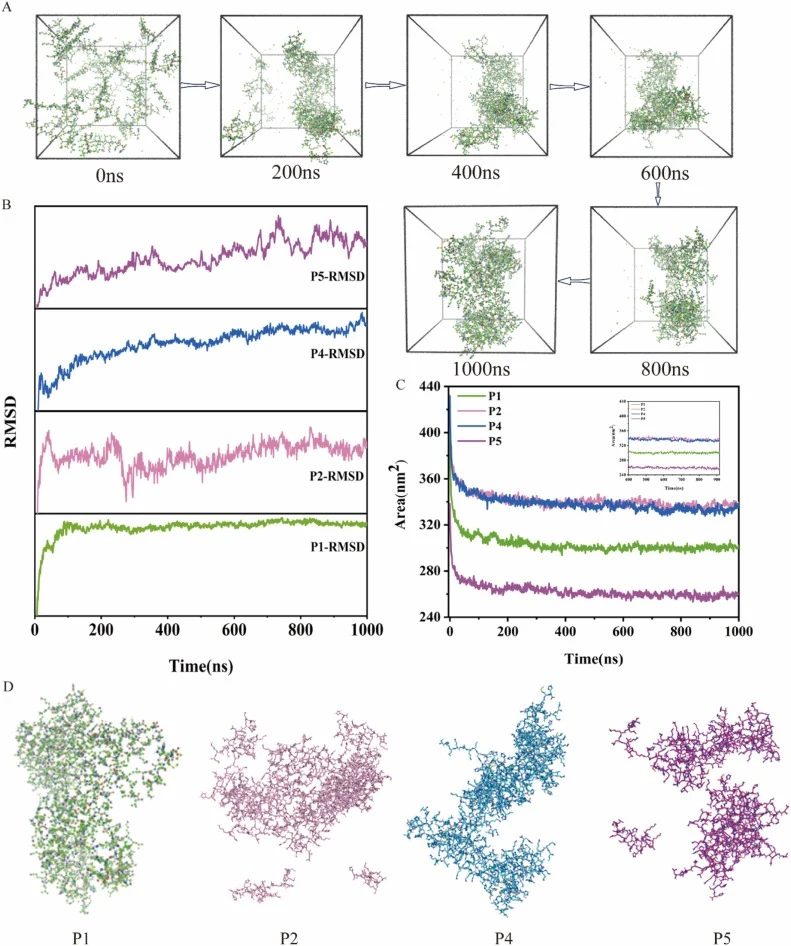
在分子层面,原文采用分子动力学模拟捕捉肽自组装过程,计算均方根偏差(RMSD)与溶剂可及表面积变化,并获得1000 ns模拟下的金属酶模拟物构象。
【数据】模拟时长:1000 ns;输出量:RMSD、溶剂可及表面积、构象快照;力场与溶剂参数:原文未详述
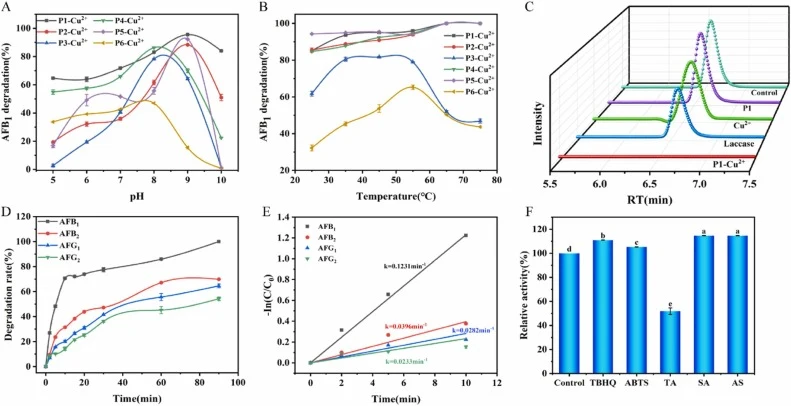
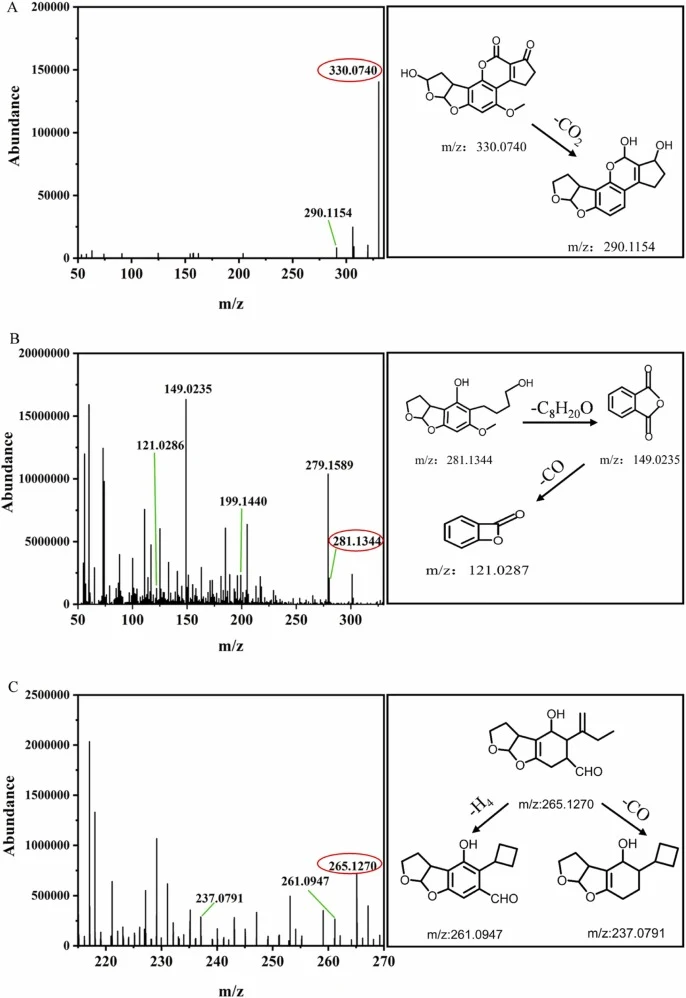
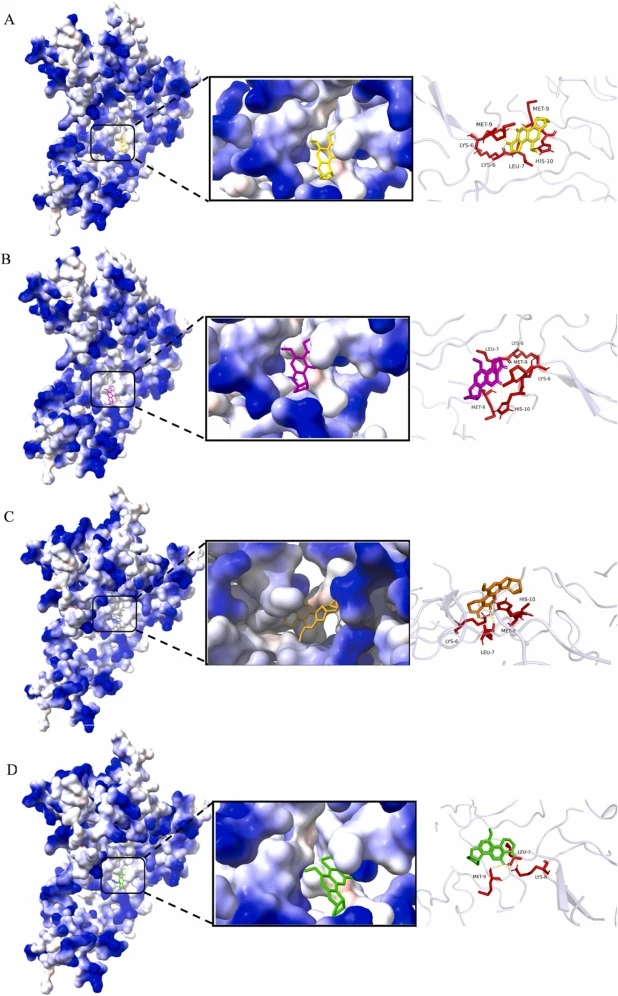
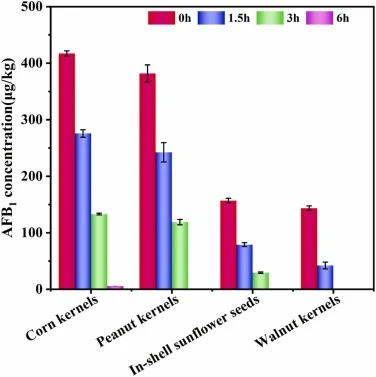
降解性能评价方面,考察pH与温度对肽基金属酶模拟物降解AFB₁的影响(37 °C、90 min条件及最优pH下90 min条件),并以液相色谱分析P1-Cu²⁺及漆酶催化后的AFB₁降解残留;以质谱鉴定降解产物并解析主要离子碎裂途径;以分子对接/相互作用模型分析AFB₁、AFB₂、AFG₁、AFG₂与金属酶模拟物的结合模式;最后在受污染食品样品中评价模拟物对AFB₁的去除效果。
【数据】降解评价温度:37 °C;降解时间:90 min;分析手段:液相色谱、质谱、相互作用建模、食品基质去除实验;缓冲液与底物浓度:原文未详述
研究结果
类漆酶活性金属酶模拟物的设计
肽基超分子催化剂的设计旨在复制天然酶活性位点的化学架构。在天然漆酶中,催化活性与铜中心及周围配体的空间排布密切相关,因此重建铜结合环境对开发肽基漆酶模拟物至关重要。为此,研究将天然漆酶活性位点的关键残基组氨酸(H)、半胱氨酸(C)和甲硫氨酸(M)引入肽序列以建立Cu²⁺配位环境。活性残基的排列与数量(尤其是组氨酸)经过精心设计,因为它们不仅决定超分子纳米结构的形成,也决定酶模拟物后续的催化效能。此外,极性赖氨酸(K)与非极性亮氨酸(L)交替的自组装多肽序列LKLKLKL与催化组件相连,以形成高度有序的超分子结构并优化催化性能。所有设计肽的N端和C端分别以乙酰基和甲酰胺基封端,以消除带电端基之间不利的静电相互作用、稳定结构。为满足形成催化铜中心与组装稳定有序纳米结构的双重需求,共设计了六种Cu²⁺结合肽用于构建类漆酶金属酶模拟物(表S1和图S1)。
【数据】设计肽数量:6种;关键残基:His、Cys、Met;自组装序列:LKLKLKL;封端:乙酰基/甲酰胺基;序列详情:见表S1
漆酶样活性以标准显色底物2,4-二氯苯酚(2,4-DP)和4-氨基安替比林(4-AP)测定。该反应中2,4-DP被氧化为苯氧自由基,继而与4-AP偶联形成红色醌亚胺产物,通过510 nm吸光度定量(图1A和图S2)。所有肽在无Cu²⁺时活性可忽略,加入Cu²⁺后则表现出显著活性,证实Cu²⁺是必需的氧化还原中心(图1C)。肽基金属酶模拟物的氧化活性随Cu²⁺浓度升高而增强,并在肽:Cu²⁺摩尔比1:2时达到峰值,提示明确的铜配位环境是催化活性最大化的关键。其中,P1-Cu²⁺金属酶模拟物催化活性最高(图S3),遵循典型米氏动力学,kcat/Km为83.24 M⁻¹ s⁻¹(图1B、图S4和表S2)——该值高于天然漆酶及此前报道的体系。催化性能的提升可能归因于His/Cys/Met残基的协同配位与Lys/Leu交替序列,后者可能产生了更易接近的Cu²⁺活性中心并促进底物结合与富集。研究进一步证实P1-Cu²⁺的催化活性依赖氧气:去除O₂抑制产物生成,重新引入O₂则恢复生成(图S5)。在测试的金属离子(Mg²⁺、Mn²⁺、Zn²⁺、Ba²⁺)中,Cu²⁺赋予的活性最高,凸显其在形成活性中心中的关键作用(图1D)。
【数据】底物:2,4-DP/4-AP;检测波长:510 nm;肽:Cu²⁺摩尔比:1:2;kcat/Km:83.24 M⁻¹ s⁻¹;对照金属离子:Mg²⁺、Mn²⁺、Zn²⁺、Ba²⁺;最活跃模拟物:P1-Cu²⁺
金属酶模拟物的表征
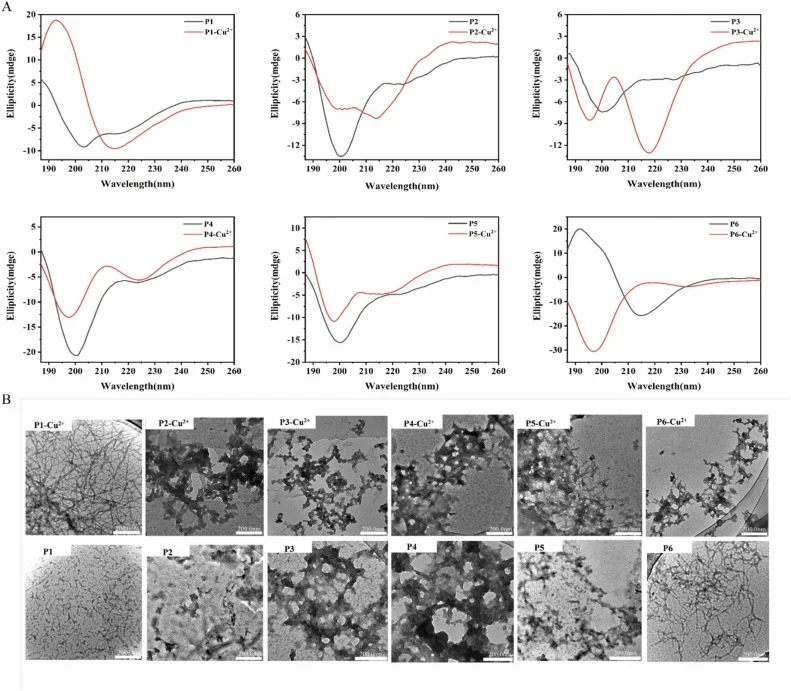
超分子自组装体的结构对其性质与功能极为重要,尤其对肽基酶模拟物的催化活性而言。因此研究采用H1 NMR、CD光谱和紫外分光光度法研究肽的二级结构与自组装程度。如图2A所示,肽-Cu²⁺复合物的CD光谱与肽单独自组装时明显不同,表明铜离子在组装结构中作用显著。具体而言,除肽P6外,所有肽与铜离子共组装后在210–220 nm附近呈现强的β-折叠二级结构特征峰,而单独自组装的肽在200 nm附近呈现无规卷曲特征峰。这种序列依赖的CD变化提示Cu²⁺结合在不同肽中诱导了不同的局部配位模式与主链重排。在设计序列中,肽P1和P6结合Cu²⁺后结构变化最为显著,但差异在于:P1从无规卷曲转变为β-折叠,而P6与Cu²⁺共孵育后则由β-折叠转变为无规卷曲。P6 N端额外引入的His残基提高了局部配位密度,使Cu²⁺优先形成局部螯合而非促进有序的链间堆叠,结果P6-Cu²⁺复合物采取无规卷曲构象而非有序组装,活性因而较低。
【数据】CD特征峰:β-折叠210–220 nm、无规卷曲200 nm;结构转变:P1无规卷曲→β-折叠、P6 β-折叠→无规卷曲;最显著变化肽:P1、P6
为进一步研究Cu²⁺对肽自组装结构的影响,进行了刚果红结合实验。除肽P6吸光度下降外,加入Cu²⁺使其余所有CR染色的Cu²⁺结合肽在545 nm处吸光度增强(图S6),提示Cu²⁺诱导的结构改变。此外,P1-Cu²⁺信号最强(图S7),与其最高的有序自组装程度相一致。透射电镜进一步表征了Cu²⁺诱导组装前后肽的形貌变化。图2B显示,与肽单独存在相比,Cu²⁺配位显著增强了肽P1–P5的自组装。P1-Cu²⁺形成有序的淀粉样纤维(20–40 nm),而P6-Cu²⁺则呈现无序聚集体。这些TEM观察与前述CD及刚果红染色结果一致,凸显Cu²⁺在促进有序结构排布、进而影响催化活性中的关键作用。常规负染可能在TEM成像中引入干燥或染色相关伪影;尽管已检查多个独立染色铜网与区域以确保重现性,未来采用冷冻电镜或其他原位技术验证天然水合形貌仍有益处。
【数据】刚果红检测波长:545 nm;P1-Cu²⁺纤维直径:20–40 nm;形貌:P1–P5有序增强、P6无序聚集体
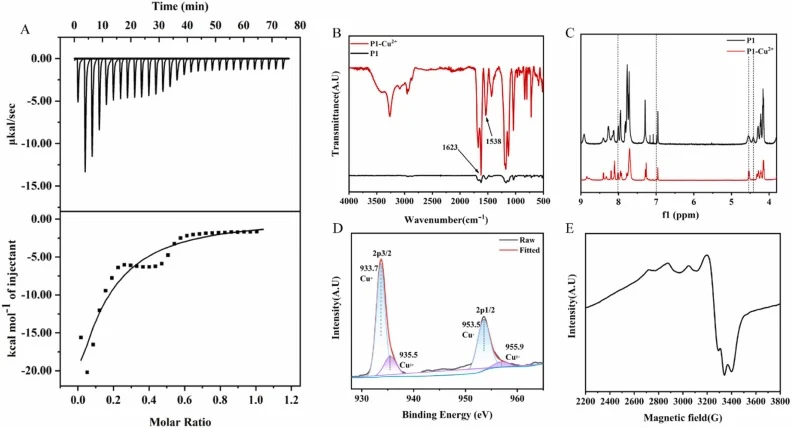
鉴于P1-Cu²⁺金属酶模拟物类漆酶活性最高,研究对其开展综合结构表征以探究构效关系。ITC分析证实肽P1与Cu²⁺之间的配位相互作用,表观结合常数Ka = (7.65 ± 0.42) × 10³ M⁻¹(图3A)。拟合热力学参数为ΔH = (−1.01 ± 0.09) × 10⁴ cal mol⁻¹、ΔS = −15.84 ± 2.13 cal mol⁻¹ deg⁻¹、n = 0.97 ± 0.03,进一步支持Cu²⁺-肽配位复合物的形成。FTIR揭示反平行β-折叠特征及涉及组氨酸的Cu–N配位,包括约1623和约1537 cm⁻¹处的谱带以及约418 cm⁻¹处的Cu–N振动(图3B和图S8)。H1 NMR谱显示,加入Cu²⁺后由于顺磁弛豫增强(PRE),谱线显著增宽,相应共振信号线宽增加(图3C和图S9)。具体而言,咪唑(Cε-H,约7.1 ppm;Cδ-H,约8.1 ppm)与半胱氨酸(Cα-H,约4.6 ppm;Cβ-H,约2.9 ppm)的共振信号在加入Cu²⁺后显著增宽且强度下降。这些结果提示组氨酸、半胱氨酸和甲硫氨酸残基直接参与配位Cu²⁺。相比之下,1.8–1.9 ppm区域的表观变化更保守地归因于Cu²⁺诱导的构象重排与再分布。
【数据】Ka:(7.65 ± 0.42) × 10³ M⁻¹;ΔH:(−1.01 ± 0.09) × 10⁴ cal mol⁻¹;ΔS:−15.84 ± 2.13 cal mol⁻¹ deg⁻¹;n:0.97 ± 0.03;FTIR谱带:约1623、约1537、约418 cm⁻¹;NMR位移:咪唑Cε-H约7.1 ppm、Cδ-H约8.1 ppm,Cys Cα-H约4.6 ppm、Cβ-H约2.9 ppm
(原文结果节选至此结束,后续降解性能、产物鉴定与食品基质应用数据未在提供的节选中出现,故不在此展开。)
讨论与解读
本研究受天然漆酶结构与功能特征启发,成功开发出具有黄曲霉毒素降解活性的肽基金属酶模拟物。设计肽将组氨酸、半胱氨酸和甲硫氨酸等酶活性位点嵌入自组装LK骨架,与铜离子共组装形成模拟天然活性位点的高级结构;该仿生结构通过TEM、CD、EPR、UV-vis等物理化学表征与分子模拟相结合的综合手段得到确认。模拟物可有效降解AFB₁、AFB₂、AFG₁和AFG₂四种主要黄曲霉毒素,其中对AFB₁效率最高。与天然漆酶相比,模拟物AFB₁降解效率更优,热稳定性和pH稳定性增强,可在宽操作范围内有效工作。在全部四种受试食品基质中,模拟物均高效降解AFB₁,证实其在复杂真实样品中的有效性。这些结果共同表明,该金属酶模拟物是一类有前景的生物催化剂,可用于食品安全与农业领域的工业规模应用。
编译者解读:该工作的巧妙之处在于用短肽而非蛋白质骨架重建铜中心——序列仅7个残基加封端,成本与稳定性优势天然优于发酵制备的漆酶。CD与ITC数据把"配位密度过高反而破坏有序组装"这一反直觉现象讲清楚了(P6的His增量导致无规卷曲),为后续肽序列理性设计提供了可操作的负样本。局限在于方法细节置于支持信息,且降解产物毒理仅停留在细胞层面;从合成生物学应用看,若能把该肽模块接入微生物表面展示或底盘细胞分泌表达,才更接近田间与储粮场景的规模化脱毒。
参考来源
期刊:Colloids and Surfaces B: Biointerfaces, 2026
DOI: 10.1016/j.colsurfb.2026.115917
DOI: 10.1016/j.colsurfb.2026.115917