来源:Convenient and sensitive detection of viable Escherichia coli employing a sequential reaction between antibody-enzyme complexes(Biosensors and Bioelectronics)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
如何在食品与水体现场快速判断大肠杆菌是否"活着"?日本研究团队提出PULSERAA传感体系:把抗脂多糖scFv与葡萄糖氧化酶通过SpyCatcher/SpyTag连接,再配合HRP标记的抗OmpC抗体,两种抗体-酶复合物只有在完整菌体表面彼此靠近时才产生化学发光。无需洗涤分离,混匀即可检测,1–10⁴ CFU mL⁻¹范围内信号与对数菌浓近似线性,并可区分活菌与死菌。
研究背景
大肠杆菌既是食源性疾病的主要致病菌之一,也是饮用水与环境水体粪便污染的指示菌。产志贺毒素大肠杆菌据报道仅需10–100 CFU即可引发感染,因此准确量化"活菌"而非总细胞数至关重要——死细胞与细胞碎片不构成感染风险。若把死细胞计入,会高估风险,导致不必要的产品销毁或设施停产;反之则可能低估真实危害。面向食品生产现场、医疗和水务基础设施,检测方法必须同时满足现场适用、快速周转和活菌选择性三条要求。
培养法仍是活菌判定的金标准,直接依赖活细胞在平板上生长成菌落的能力,但通常需要2–3天才能完成风险评估。PCR类方法虽快,却难以区分活死细胞,且依赖专门设备。现有均相检测策略多需洗涤与分离步骤,操作繁琐。研究团队由此提出:能否利用抗体-酶复合物在完整菌体表面的"邻近协同",让化学发光信号本身成为活菌存在的判据?基于此,作者构建了PULSERAA(sequential reaction-based assay)体系,以抗LPS单链抗体-葡萄糖氧化酶复合物为供体、HRP标记抗OmpC IgG为受体,两者同时结合于完整大肠杆菌表面时,GOx产生的H₂O₂被邻近HRP就地消耗并触发化学发光。
研究方法
2.1 表达载体的构建
为构建抗LPS scFv的表达载体,依据专利US5858728A(Gram et al., 1999)中描述的亲本Fab格式序列(克隆:WN1 222-5)设计氨基酸序列。随后合成经密码子优化的基因,并通过限制酶消化与连接过程插入T7启动子型载体。将ST(SpyTag)基因融合至scFv的C端。将SC(SpyCatcher)基因融合至源自黑曲霉(Aspergillus niger)的GOx的C端。
【数据】载体类型:T7启动子型载体;融合位置:ST融合于scFv C端,SC融合于GOx C端;序列来源:专利US5858728A克隆WN1 222-5;限制酶与连接参数:原文未详述
2.2 蛋白的重组生产
抗LPS scFv-ST使用大肠杆菌BL21(DE3)菌株制备。培养条件与既往工作相同(Miura et al., 2024b)。通过4800 × g离心20 min获得湿菌体,并重悬于磷酸盐缓冲液(PBS)(pH 8.0)中。细胞经超声破碎,再以15,000 × g离心20 min获得不溶性组分。scFv由不溶性组分按已报道的复性方案经若干修改后制备(Asano et al., 2002, 2006)。简言之,将不溶性组分溶解于含6 M盐酸胍(Nippon Carbide Industries Co. Inc., Tokyo, Japan)的PBS(pH 8.0)中。15,000 × g离心30 min后,溶解组分使用Ni Sepharose 6 Fast Flow(Cytiva, Tokyo, Japan)纯化。为去除胍,纯化组分在4 °C下对含0.5 M L-精氨酸(Nacalai tesque, Kyoto, Japan)的PBS(pH 8.0)透析两次,随后在4 °C下对PBS(pH 6.5)透析两次。所得复性样品进一步使用Superdex 200 Increase 10/300 GL(Cytiva)以含200 mM NaCl的PBS(pH 6.5)纯化。SC-GOx(SC融合至GOx N端)在大肠杆菌BL21(DE3)菌株中表达,并按先前所述方法复性(Okurita et al., 2018)。
【数据】菌株:E. coli BL21(DE3);离心条件:4800 × g、20 min;破碎后离心:15,000 × g、20 min;溶解剂:6 M盐酸胍;纯化介质:Ni Sepharose 6 Fast Flow、Superdex 200 Increase 10/300 GL;透析:4 °C、0.5 M L-精氨酸/PBS(pH 8.0)两次、PBS(pH 6.5)两次;SEC缓冲液:PBS(pH 6.5)+ 200 mM NaCl;培养条件:原文未详述(同Miura et al., 2024b)
2.3 目标细菌的制备
大肠杆菌DH5α菌株培养物在LB培养基中于37 °C振荡培养18 h。离心收集细菌细胞,并用PBS洗涤三次以置换培养基。随后,将100 μL稀释后的大肠杆菌溶液涂布于LB琼脂平板。37 °C培养18 h后,通过计数平板上的菌落数,计算每mL细菌的菌落数。
【数据】菌株:E. coli DH5α;培养基:LB;温度:37 °C;时间:18 h;涂布体积:100 μL;洗涤:PBS三次
2.4 流式细胞术结合能力分析
使用流式细胞术评价抗体的结合能力。约5.0 × 10⁵个细胞稀释于PBS中,与20 pmol抗体在冰上孵育30 min。用PBS洗涤两次后,细胞与藻红蛋白标记的抗his标签抗体(Abcam, Cambridge, UK)在冰上孵育30 min,再用PBS洗涤两次。最后加入500 μL PBS并充分悬浮,使用流式细胞仪(BD Accuri C6; Becton Dickinson, San Jose, CA, USA)分析染色细胞。
【数据】细胞数:约5.0 × 10⁵;抗体量:20 pmol;孵育:冰上、30 min;洗涤:PBS两次;检测抗体:PE-抗his标签抗体;终体积:500 μL;仪器:BD Accuri C6
2.5 scFv-GOx的制备
为制备scFv-GOx,将10 μM ST融合scFv与5 μM SC-GOx混合,于4 °C孵育过夜。加入由125 mM Tris-HCl、4%十二烷基硫酸钠、20%甘油、3.1%二硫苏糖醇和0.01%溴酚蓝组成的上样缓冲液(pH 6.8),并于95 °C煮沸10 min后,在还原条件下通过十二烷基硫酸钠-聚丙烯酰胺凝胶电泳(SDS-PAGE)确认scFv-GOx的形成。
【数据】scFv浓度:10 μM;SC-GOx浓度:5 μM;孵育:4 °C、过夜;上样缓冲液:125 mM Tris-HCl、4% SDS、20%甘油、3.1% DTT、0.01%溴酚蓝(pH 6.8);变性:95 °C、10 min
2.6 酶活性分析
SC融合GOx与scFv-GOx的酶活性通过监测过氧化氢的生成来测定,反应体系含1.5 mM 4-氨基安替比林(fujifilm wako pure chemical corporation, osaka, japan)、1.5 mM N-乙基-N-(2-羟基-3-磺丙基)-3-甲基苯胺(Dojindo Laboratories, Kumamoto, Japan)和2 U HRP(Sigma-Aldrich, St. Louis, MO, USA),溶于20 mM磷酸缓冲液(pH 7.0)。在此条件下生成醌亚胺染料,于555 nm测定吸光度并计算酶活性。
【数据】4-氨基安替比林:1.5 mM;N-乙基-N-(2-羟基-3-磺丙基)-3-甲基苯胺:1.5 mM;HRP:2 U;缓冲液:20 mM磷酸缓冲液(pH 7.0);检测波长:555 nm
2.7 使用PULSERAA的均相细菌检测
为检测大肠杆菌,用PBS稀释制备42 ng mL⁻¹的HRP-抗OmpC IgG(Cusabio, Houston, USA)和1 μM scFv-GOx。各组分等量混合于96孔低蛋白结合LBS OptiPlate-96(Revvity Inc., Waltham, MA, USA)中。将各浓度的大肠杆菌加标至混合溶液中,于25 °C孵育。随后加入补充有200 mM葡萄糖和24 ng mL⁻¹过氧化氢酶的BM Chemiluminescence ELISA Substrates (POD)(Roche, Basel, Switzerland)的Solution A,并立即使用Varioskan Flash(Thermo Fisher Scientific)测定化学发光。
【数据】HRP-抗OmpC IgG:42 ng mL⁻¹;scFv-GOx:1 μM;孵育温度:25 °C;葡萄糖:200 mM;过氧化氢酶:24 ng mL⁻¹;底物:BM Chemiluminescence ELISA Substrates (POD) Solution A;仪器:Varioskan Flash;孵育时间:原文未详述
2.8 统计分析
统计分析使用MATLAB R2025b(Mathworks, Natick, MA, USA)进行。结果显著性通过单因素方差分析(ANOVA)及随后的Tukey多重比较检验分析。p < 0.05时认为差异具有统计学显著性。
【数据】软件:MATLAB R2025b;检验方法:单因素ANOVA + Tukey多重比较;显著性阈值:p < 0.05
研究结果
3.1 传感元件的制备与功能评价
选择大肠杆菌表面的LPS作为检测靶标。细菌样品基本按已描述方法制备(Cao et al., 2023)。依照既往报道,将ST融合至scFv的C端。由于培养上清产量低,scFv-ST通过复性获得,并经尺寸排阻色谱纯化。SDS-PAGE分析结果显示,在scFv-ST理论分子量处观察到清晰条带,表明获得了高纯度的scFv-ST,产量为0.9 mg L⁻¹培养液。为评价抗原结合能力,进行了流式细胞术。与对照(PBS)相比,孵育scFv-ST时峰发生位移且荧光强度增加。该结果表明scFv-ST结合于大肠杆菌(图S1)。
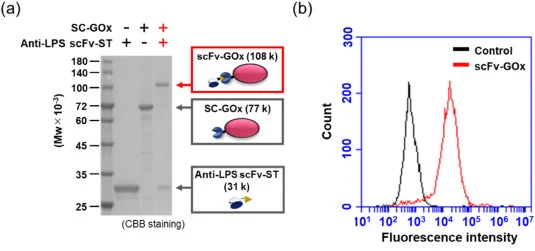
接下来,将SC-GOx与scFv-ST混合并于4 °C孵育过夜。SDS-PAGE分析显示,孵育后各组分对应条带消失,scFv-GOx条带清晰可见。这些结果表明scFv-GOx经由SC/ST反应形成(图1a)。随后通过流式细胞术评估scFv-GOx的结合能力与酶活性。结果,scFv-GOx显示出荧光峰位移(图1b)。酶活性分析表明其氧化酶活性与SC-GOx相当(表S1)。这些结果证明两种功能在scFv-GOx构建体中均得以保留。综上,这些结果为用HRP-IgG组装PULSERAA检测提供了经过验证的基础。
【数据】scFv-ST产量:0.9 mg L⁻¹培养液;孵育:4 °C、过夜;流式细胞术:荧光峰位移(scFv-ST与scFv-GOx均阳性);酶活性:与SC-GOx相当(表S1,具体数值原文未详述);SDS-PAGE:理论分子量处清晰条带
3.2 大肠杆菌的检测
我们将PULSERAA体系应用于大肠杆菌检测。如图2a所示,化学发光随大肠杆菌浓度增加而增强,在高达约10⁴ CFU mL⁻¹范围内呈现清晰的剂量依赖响应。然而在更高浓度下,响应不再增加,反而呈平台样行为,并在10⁷ CFU mL⁻¹处观察到下降(图S2)。该行为可能归因于高细菌浓度下每细胞可用的抗体-酶复合物数量减少,导致有效的GOx–HRP邻近事件减少。此外,酶在细菌表面的过度拥挤可能阻碍底物扩散并降低催化效率(Diamanti et al., 2021),而在高浓度细胞悬液中,发射光可能被部分遮蔽,导致信号被低估(Mutschlechner et al., 2024)。在1.0–10⁴ CFU mL⁻¹范围内,响应相对于log(CFU mL⁻¹)近似线性。
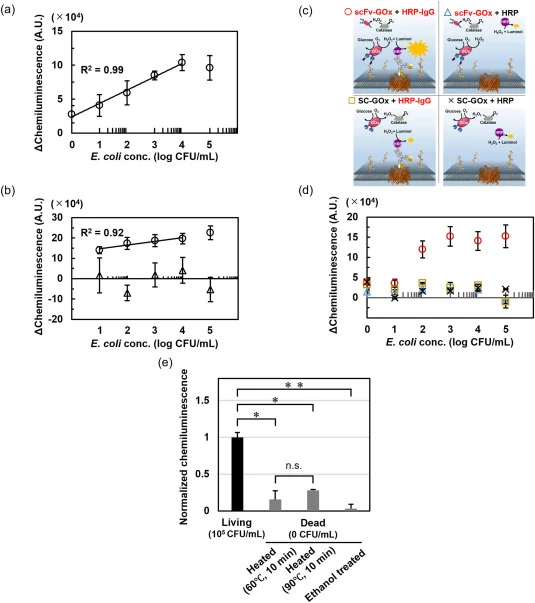
为验证检测的特异性,我们将scFv-ST替换为靶向无关抗原——严重急性呼吸综合征冠状病毒2(SARS-CoV-2)表面蛋白的scFv,并保持HRP标记抗OmpC抗体作为受体进行PULSERAA。正如预期,该条件下未观察到化学发光信号(图2b),表明信号产生需要特异性识别LPS。由于ΔChemiluminescence定义为样品信号减去空白信号,当两信号几乎相同时可观察到轻微负值。此外,在使用抗SARS-CoV-2 scFv-GOx的对照条件下,抗体-酶复合物不与大肠杆菌表面结合,大部分游离于溶液中。因此,所测信号更易受与细菌表面酶邻近无关的背景反应影响,ΔChemiluminescence值在零附近波动。
我们还使用非靶标微生物验证了检测特异性。约10⁵ CFU mL⁻¹的ClearColi BL21(DE3)(LPS结构修饰的大肠杆菌菌株)和约10⁵ CFU mL⁻¹的革兰氏阳性菌地衣芽孢杆菌(Bacillus licheniformis)的化学发光信号,均大幅低于相同浓度的大肠杆菌(图S3),表明该检测优先响应大肠杆菌,并依赖于靶细胞上基于LPS的顺序酶促反应。此外,为评估该检测在食品基质中的适用性,使用99%(v/v)商业牛奶(大肠杆菌检测方法常用基质,Cui et al., 2024; Fang et al., 2024; Pang et al., 2024; Zhang et al., 2020; Zhong et al., 2019)进行了检测。在牛奶样品与加标约10⁵ CFU mL⁻¹大肠杆菌的样品之间,观察到化学发光信号的明显差异(图S4)。牛奶中的化学发光强度低于PBS中。这可能由牛奶成分对抗体结合、酶促反应或传质的基质效应引起。重要的是,即使在该条件下,仍可清晰区分大肠杆菌的存在与否。这些结果支持本方法在食品基质中的适用性及其用于食品安全监测的潜力。
接下来,为检验检测原理是否依赖于GOx与HRP之间抗体介导的邻近依赖协同酶促级联反应,我们在缺少供体和/或受体的条件下进行了检测(图2c)。这些条件下未检测到化学发光,仅当两种酶均与抗体偶联时才出现信号(图2d),表明用于大肠杆菌检测的PULSERAA通过需要GOx与HRP在大肠杆菌表面邻近效应的级联反应产生信号。这也可由获得足以检测的信号所需的时间来印证——该时间要求供体与受体处于紧密邻近(图S5)。通过优化条件(如抗体克隆组合)以在更短时间内获得足够信号,可缩短检测时间。
我们最后处理了该系统能否区分活菌与死菌这一关键问题。如图2e所示,经热或乙醇处理的大肠杆菌仅观察到低化学发光信号,而活菌产生清晰信号。在活细胞中,外膜维持着密集排列的LPS与OmpC,使scFv-GOx与HRP标记抗体能够邻近结合。相反,死细胞丧失膜完整性与表面抗原密度(Ferraro and Finkel, 2019; Hitchener and Egan, 1977),阻止了酶之间的充分邻近。需注意,60 °C与90 °C处理组之间无显著差异。因此,PULSERAA仅在细胞表面结构完整性得以保持时发出信号,从而能够选择性检测活细胞。
常规与近期的大肠杆菌检测方法以及PULSERAA总结于表S2。PULSERAA表现出高灵敏度,考虑独立实验间变异时,计算得到的LOD为1.7至32 CFU mL⁻¹,并可在需要时于1 h或更短时间内完成检测。重要的是,它能选择性检测活细胞,从而在更短时间内克服PCR/qPCR与培养法的局限。此外,由于化学发光作为输出信号,该系统原则上可适配简易检测器以及基于ATP的发光仪或智能手机摄像头,用于现场应用。因此,PULSERAA保留了常规方法的活菌选择性,同时实现了实际使用所需的快速性与便携性。
【数据】线性范围:1.0–10⁴ CFU mL⁻¹(对log CFU mL⁻¹近似线性);平台/下降:约10⁴ CFU mL⁻¹以上平台,10⁷ CFU mL⁻¹下降;LOD:1.7–32 CFU mL⁻¹;检测时间:≤1 h;牛奶基质:99%(v/v);非靶标浓度:约10⁵ CFU mL⁻¹(ClearColi BL21(DE3)、B. licheniformis);死菌处理:热(60 °C、90 °C)或乙醇;显著性:60 °C与90 °C组间无显著差异
讨论与解读
本工作将PULSERAA应用于活大肠杆菌检测。该系统整合了常规方法的可靠性与活菌判别能力,以及新方法的现场适用性。检测已在牛奶这一食品基质中证明可行,支持其用于食品样品。未来工作应评估环境水体与食品样品等复杂基质的影响,以及在其他致病菌中的应用。展示这些能力将确立PULSERAA作为食品安全与公共卫生现场检测有力平台的定位。
编译者解读:PULSERAA的巧妙之处在于把"活菌"判据交给了空间邻近——膜完整则LPS/OmpC密集,两种抗体-酶复合物才能靠得够近,级联发光才成立。均相免洗、1小时内出结果、LOD低至个位数CFU,对现场快检很有吸引力。局限也明显:高菌浓信号平台化甚至回落,牛奶基质信号减弱,说明定量上限与复杂基质适应性仍需打磨;供体-受体配对依赖抗体克隆组合,换靶菌时要重新筛选。整体看,这是把蛋白邻近标记思路移植到微生物检测的一次务实尝试。
参考来源
期刊:Biosensors and Bioelectronics, 2026
DOI: 10.1016/j.bios.2026.118810
DOI: 10.1016/j.bios.2026.118810