来源:Modulation of Thai arabica coffee cupping profiles using Saccharomyces cerevisiae and Pichia spp. Fermentation(Journal of Agriculture and Food Research)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
泰国北部阿拉比卡咖啡长期停留在商用级别,风味平淡。本研究用从当地自然发酵咖啡果胶中分离的酿酒酵母(Saccharomyces cerevisiae)与毕赤酵母(Pichia spp.)做控温浸没发酵,比较 15°C 与 25°C、24–96 h 的处理组合。酿酒酵母在 15°C、96 h 条件下把杯测分数推到 81.50 分,进入精品级别;毕赤酵母则偏向酯类富集。研究把微生物群落动态、果胶降解、糖耗、挥发性物质谱与感官评分串成一条完整证据链。
研究背景
咖啡的后处理,尤其是发酵阶段,直接决定终产品的理化组成与感官品质。发酵不只是脱除果胶的传统工序,它同时是一个代谢"预加载"阶段——挥发性风味物质在此生成,风味的均一性也在此被塑造,这些正是精品咖啡的核心要素。咖啡果为微生物提供了糖、有机酸与果胶类物质的丰富基质,内源酶与微生物代谢把这些底物转化为乙醇和乳酸、乙酸、琥珀酸等有机酸,构成杯中风味的复杂基底。咖啡发酵生态系统是酵母、乳酸菌(LAB)与醋酸菌(AAB)组成的动态菌群联合体,它们分泌果胶酶、纤维素酶与蛋白酶,推动果胶降解并加速干燥;微生物代谢物同时向豆内扩散,修饰生化前体。本研究以泰国清莱 Doi Chang 产区的阿拉比卡咖啡为对象,用本土分离酵母进行可控浸没发酵,考察温度与时间对理化指标、微生物演替、微观结构、挥发性组分及杯测表现的调控作用。
研究方法
2.1 样品制备
阿拉比卡咖啡果(Coffea arabica L.)采自泰国清莱 Doi Chang。采收后先经浮选去除杂质与低密度果实,随后在 5°C 下冷稳定 12 h。果实脱皮后进入浸没发酵处理。采用三种发酵方式脱除果胶层。第一,接种发酵在控温条件下进行:4 kg 脱皮咖啡豆与 25 mL 酿酒酵母(1.0 × 10⁸ CFU/mL)菌悬液及 5 L 水混合。第二,25 mL 毕赤酵母(1.0 × 10⁸ CFU/mL)菌悬液与 5 L 水混合,咖啡豆浸没其中。第三,自然发酵(对照),不添加任何菌悬液。全部处理在 15°C 与 25°C 下分别调控 24、48、72 与 96 h。
本土酵母菌株(毕赤酵母与酿酒酵母)从泰国清莱 Doi Chang 咖啡加工农场采集的自然发酵阿拉比卡咖啡果胶中分离。取发酵咖啡果胶样品 10 g,在 90 mL 0.85%(w/v)氯化钠(原文写作 NaCl₂)中匀质化。制备十倍系列稀释(10⁻¹ 至 10⁻⁶),取 0.1 mL 涂布于添加 100 μg/mL 氯霉素以抑制细菌生长的酵母浸出粉胨葡萄糖(YPD)琼脂平板。平板在 30°C 培养 48–72 h。挑取形态独特的单菌落,转接至 50 mL YPD 肉汤,30°C 培养 24 h。随后对酵母培养物用 CTAB 法提取 DNA。DNA 样品保存于 −20°C 待鉴定。分子鉴定按商用酵母 DNA 提取试剂盒说明书提取基因组 DNA。用通用引物 NL1 与 NL4 扩增 26S rRNA 基因 D1/D2 结构域,并用引物 ITS1 与 ITS4 扩增内转录间隔区(ITS)。PCR 扩增的热循环条件为:95°C 初始变性 5 min;35 个循环的 94°C 30 s、55°C 45 s、72°C 1 min;随后 72°C 终延伸 7 min。纯化后的 PCR 产物经 Sanger 测序。所得核苷酸序列用 BLASTn 比对 NCBI GenBank 数据库。依据与已验证参考模式菌株 ≥99% 的序列相似性判定种/属级分类。所得序列提交 NCBI GenBank,登录号为 KX538801.1(毕赤酵母)与 CP033481.1(酿酒酵母)。
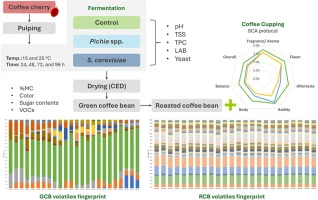
发酵结束后,带壳豆彻底水洗并转入控环境干燥(CED)室 10–13 天,直至水分含量稳定在 9–10%。经三个月陈化以稳定化学前体后,脱壳并分拣缺陷豆。最后,取 1000 g 生咖啡豆,按精品咖啡协会(SCA)杯测方案,用 2 kg 咖啡烘焙机(HB-L2,HB coffee roaster,杭州,中国)烘焙(图1)。
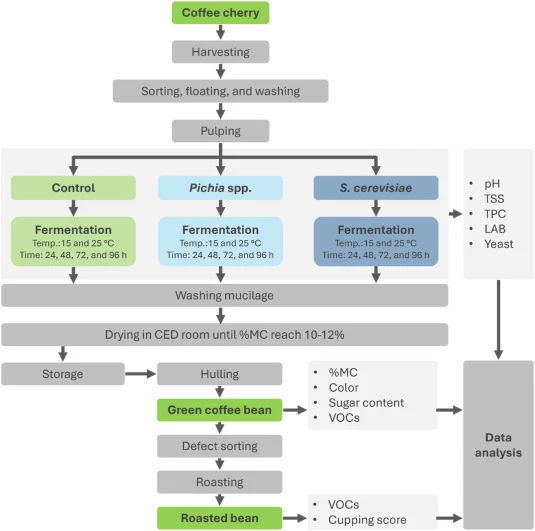
【数据】菌悬液浓度:1.0 × 10⁸ CFU/mL;接种量:25 mL;咖啡豆:4 kg;水:5 L;冷稳定:5°C、12 h;发酵温度:15°C 与 25°C;发酵时间:24、48、72、96 h;氯霉素:100 μg/mL;YPD 培养:30°C、48–72 h;PCR:95°C 5 min,35 循环(94°C 30 s、55°C 45 s、72°C 1 min),72°C 7 min;干燥:10–13 天,水分 9–10%;陈化:3 个月;烘焙样品:1000 g
2.2 pH 与总可溶性固形物
咖啡 pH 按 Aung Moon 等的方法测定。测定前用标准液校准滴定型 pH 计。取 2.25 g 研磨样品与 10 mL 80°C 热水混合,冷却至室温后用 pH 计(Eutech™ pH 700,Thermo Fisher Scientific Inc.,MA,USA)测定 pH。总可溶性固形物(TSS)用折光仪(HI96801,Hanna Instruments Inc.,RI,USA)测定,以 °Brix 表示。
【数据】样品量:2.25 g;热水:10 mL、80°C;仪器:Eutech pH 700、Hanna HI96801
2.3 色泽
生咖啡豆(GCB)色泽用色差仪(Color Quest XE,Hunter Associates,Reston,VA,USA)测定,按 CIE Lab 色标表示。
【数据】仪器:Color Quest XE;色标:CIE Lab;原文未详述其他参数
2.4 水分含量
水分含量(MC)按 AOAC 2000 方法 979.12 测定:样品在 70 ± 1°C 热风烘箱中干燥 16.0 ± 0.5 h 至恒重。
【数据】温度:70 ± 1°C;时间:16.0 ± 0.5 h;方法:AOAC 979.12
2.5 扫描电子显微镜(SEM)分析
SEM 分析按 Goldstein 等的标准流程执行,并依仪器条件略作修改。选取代表性整豆与断裂横截面制备 SEM 样品。为防止真空下水分散失,样品先干燥以降低残余水分,再用导电碳胶带固定于铝样品台。咖啡豆不导电,固定后的样品溅射镀一薄层金,以增强表面导电性与图像分辨率。生咖啡豆微观结构用场发射扫描电子显微镜(FESEM)(Tescan,MIRA™,Tescan Group,Brno,捷克)观察。电压设为 10 kV,工作距离 9.9–9.97 mm。图像在宽场与高分辨扫描模式下以 100–1000 倍放大采集。
【数据】电压:10 kV;工作距离:9.9–9.97 mm;放大倍数:100–1000X;镀层:金;仪器:Tescan MIRA FESEM
2.6 糖含量
咖啡中糖的测定与定量按 Aung Moon 等的提取方法执行,并在色谱仪器、色谱柱化学与操作参数上作了修改。提取时取 5 g 研磨咖啡样品,与 15 mL Milli-Q 水在 80°C 水浴中加热 30 min,用 4 号滤纸过滤。该过程重复三次,最终定容至 50 mL。提取液经 0.22 μm 纤维素酯膜过滤,分析前保存于 5°C。色谱分离使用配 refractive index detector(RID)(Waters™,2414 RID,MA,USA)的 HPLC(Waters™,ACQUITY Arc LC System,MA,USA)。糖分离使用糖分析柱(Shodex,Asahipak NH2P-50 4E,东京,日本)(4.6 mm ID × 250 mm,5 μm),柱温箱维持 30°C,系统典型操作压力 7 MPa。流动相为乙腈与超纯 Milli-Q 水混合液(75:25,v/v),流速 1 mL/min。样品自动进样,进样体积 10 μL,按 ACq 方法逐瓶编程运行,总分析时间 25 min。糖的定性依据保留时间,并通过向咖啡样品中添加标准溶液确认。蔗糖、D(+)-葡萄糖与 D(−)-果糖(纯度分别为 98.9%、99.5%、99.9%)的单独定量采用外标法,以六点分析校准曲线完成。
【数据】样品:5 g;提取:15 mL 水、80°C、30 min、重复 3 次、定容 50 mL;滤膜:0.22 μm;柱温:30°C;压力:7 MPa;流动相:乙腈:水 = 75:25(v/v);流速:1 mL/min;进样量:10 μL;分析时间:25 min;标准品纯度:98.9%、99.5%、99.9%;校准曲线:六点
2.7 挥发性化合物
咖啡挥发性化合物用固相微萃取-气相色谱-质谱联用(SPME-GC-MS)分析,方法改编自 Aung Moon 等并优化,采用极性毛细管柱以提高分离效率与化合物分辨率。精确称取各研磨咖啡样品 2 g 于 5 mL 顶空瓶中密封。样品在 60°C 平衡 30 min,随后用 SPME 纤维(50/30 μm DVB/Carboxen/PDMS StableFlex,1 cm)在顶空萃取 5 min。GC–MS 分析使用配自动进样器(PAL RSI 120)的 Agilent 5977B GC/MSD 系统(Agilent Technologies,CA,USA)。分离使用极性聚乙二醇(PEG)柱(Agilent Technologies,HP-INNOWax,CA,USA)(30 m × 250 μm × 0.25 μm)。载气为氦气,恒流 1.7 mL/min。进样采用不分流模式,原文节选至此中断,后续参数原文未详述。
【数据】样品:2 g;顶空瓶:5 mL;平衡:60°C、30 min;萃取:5 min;纤维:50/30 μm DVB/Carboxen/PDMS StableFlex、1 cm;色谱柱:30 m × 250 μm × 0.25 μm;载气:氦气、1.7 mL/min;进样:不分流;后续参数原文未详述
研究结果
3.1 浸没发酵过程中的 pH 与总可溶性固形物
如图2所示,初始 pH 在 5.10 ± 0.10 至 5.50 ± 0.10 之间,随后急剧下降,至 96 h 稳定在 3.33 ± 0.00 至 3.70 ± 0.00 区间。pH 受发酵剂、温度与发酵时间的显著影响(p ≤ 0.05)。发酵时间对 pH 变异的主效应最大(p < 0.05),其次为温度,再次为发酵剂。所有处理在前 24 h 内 pH 均维持在 4.0–4.6,此后热条件决定酸化速率,体现为发酵温度与时间的显著交互作用(p < 0.05)。25°C 下 pH 在 48 h 内降至 3.9 以下,毕赤酵母处理达 3.77;15°C 下则较高,为 4.10–4.47(p < 0.05)。这反映微生物呼吸与酶动力学的温度依赖性。各发酵剂中,对照组的总体平均 pH 最高,酿酒酵母次之,毕赤酵母最低。至 72–96 h,两个温度组均收敛至 pH 3.7 以下,25°C 对照最低,为 3.33。这一快速酸化速率是微生物演替的关键指标——pH 降至 3.9 以下提示乳酸菌与酵母协同占据优势。这种协同通过偏向非挥发性乳酸、抑制刺激性乙酸,促成干净的酸质;但 48 h 后跌破 3.9 也标志着代谢转折,乙醇与有机酸的累积可能带来过度发酵味,尽管同时贡献感官复杂度。
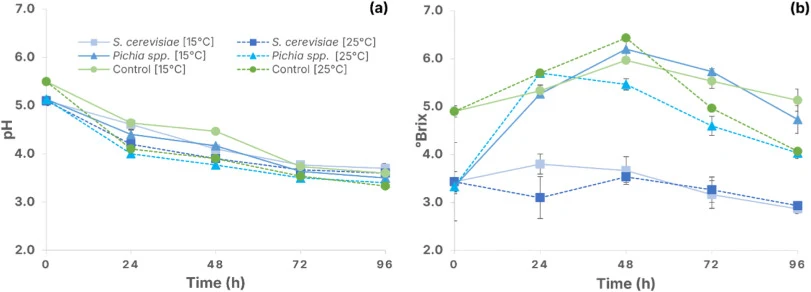
TSS 以 °Brix 计,受发酵剂、温度与发酵时间显著影响(p < 0.05)。0–48 h 间观察到 °Brix 初始上升:对照 4.90–6.43,毕赤酵母 3.33–6.20,酿酒酵母 3.43–3.67,可能源于咖啡果胶中果胶与糖向发酵水的浸出。随发酵推进至 96 h,因微生物底物利用速率超过溶出速率,各处理 °Brix 显著下降(p < 0.05)。这一时间依赖性消耗模式因发酵剂不同而差异显著,菌种与时间的强交互作用(p < 0.05)予以确认。发酵剂选择是整个发酵过程中糖衰减的首要驱动因素(p < 0.05),其次为时间,再次为温度。°Brix 总体保留以对照最高,毕赤酵母次之,酿酒酵母最低。酿酒酵母表现出高糖酵解效率,终 °Brix 最低(2.87–2.93)。相比之下,毕赤酵母衰减较慢(4.03–4.73),提示其次级代谢更为从容。热条件同样提升代谢速率(p < 0.05),25°C 比 15°C 更快降糖,但该效应受菌种类型与时间调节(p < 0.05)。毕赤酵母处理中观察到的较长代谢时程与有机酸降解及果香挥发性前体生物合成相关,为提升泰国精品咖啡感官复杂度提供了清晰路径。
【数据】初始 pH:5.10 ± 0.10–5.50 ± 0.10;96 h pH:3.33 ± 0.00–3.70 ± 0.00;25°C 48 h 毕赤酵母 pH:3.77;15°C 48 h pH:4.10–4.47;25°C 对照最低 pH:3.33;°Brix 初升:对照 4.90–6.43、毕赤酵母 3.33–6.20、酿酒酵母 3.43–3.67;终 °Brix:酿酒酵母 2.87–2.93、毕赤酵母 4.03–4.73;显著性:p < 0.05
3.2 微生物特征
总细菌、酵母与乳酸菌种群均受发酵剂、发酵时长、温度及所用具体酵母菌株的显著影响(p < 0.05)(图3)。温度对总细菌数(p < 0.05)与总酵母数(p < 0.05)有强主效应。就总细菌而言,对照与酿酒酵母(25°C)处理初始计数最高,为 1.75 × 10⁸–2.33 × 10⁸ CFU/mL,而毕赤酵母(15°C)初始载量较低,为 1.97 × 10⁶ CFU/mL。对照组细菌稳步上升,两个接种处理均在 24 h 达峰,以 25°C 酿酒酵母最高(5.10 × 10⁸ CFU/mL),随后在 96 h 内降至 1.02 × 10⁸–2.42 × 10⁸ CFU/mL。发酵时间是总细菌的另一主效应(p < 0.05),其次为温度与发酵剂。96 h 期间总体细菌丰度显著受发酵剂驱动(p < 0.05),酿酒酵母支持的平均细菌载量显著高于毕赤酵母与对照(p < 0.05),而毕赤酵母与对照间无显著总体差异。接种样品在 24 h 后的种群回落提示优势效应——发酵剂有效竞争过内源非特异性细菌。与野生菌群相比,酿酒酵母更高效地降解咖啡果胶,可作为标准化阿拉比卡品质、缩短发酵时间的生物技术工具。通过乙醇与有机酸的快速累积营造高胁迫环境,接种酵母实现竞争排斥,确保发酵更干净、不易腐败或产生异味。
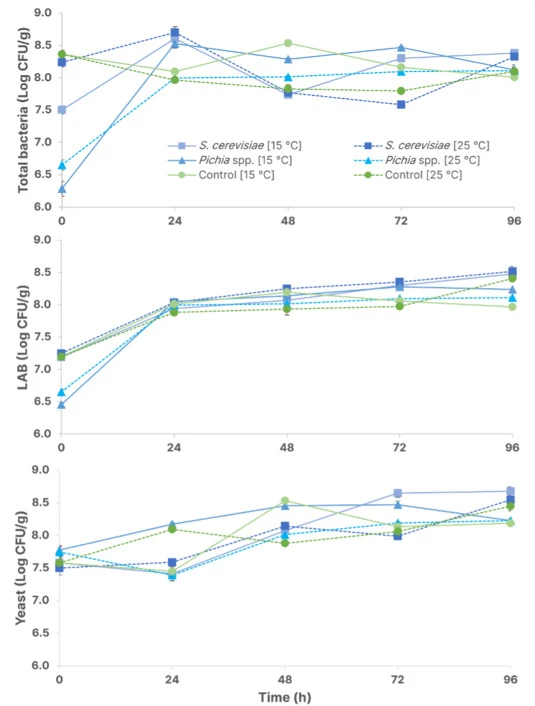
乳酸菌动态方面,初始浓度以酿酒酵母 25°C 样品最高(1.77 × 10⁷ CFU/mL),毕赤酵母处理最低(2.87 × 10⁶–4.47 × 10⁶ CFU/mL)。96 h 内,乳酸菌扩增主要由发酵时间与发酵剂驱动。与所有其他组相比,酿酒酵母接种显著促进乳酸菌增殖(p < 0.05),终浓度在 25°C 达 3.28 × 10⁸、15°C 达 3.07 × 10⁸ CFU/mL,而毕赤酵母与对照间无显著总体差异。温度单独对乳酸菌计数无显著主效应,而是通过交互路径间接影响乳酸菌生长(p < 0.05)。这与 Ferreira 等的发现一致:酿酒酵母通过提供维生素与氨基酸等关键生长因子促进乳酸菌,而毕赤酵母释放这些因子较少。这种酵母-乳酸菌伙伴关系是高品质水洗处理的标志;生成的乳酸贡献了 Doi Chang 精品风味中备受推崇的干净明亮酸质。就总酵母种群而言,毕赤酵母初始酵母计数最高(5.80 × 10⁷ CFU/mL),但至 96 h 时酿酒酵母表现出更强的发酵活力(p < 0.05),优于毕赤酵母与对照。总酵母增殖在很大程度上由发酵时间决定(p < 0.05)。酿酒酵母 15°C 处理产量最高,达 4.80 × 10⁸ CFU/mL,其次为酿酒酵母 25°C(3.57 × 10⁸ CFU/mL)及其他处理。该较低温度下随时间的持续增长得到温度与发酵剂交互效应的印证(p < 0.05)。这些交互统计表明,15°C 可避免 25°C 温暖环境中常见的代谢耗竭,从而延长风味形成的代谢时程。较冷环境允许乙酸乙酯与乙酸异戊酯等花果酯类的精细累积,而无过度发酵或产真菌毒素真菌生长的风险。这些动态与先前泰国咖啡报道一致:多种酵母(包括假丝酵母、毕赤酵母、德巴利酵母、克鲁维酵母与酿酒酵母)与细菌(包括明串珠菌与乳杆菌)的多样演替共同改善了最终杯测品质。
【数据】总细菌初始:对照与酿酒酵母(25°C)1.75 × 10⁸–2.33 × 10⁸ CFU/mL;毕赤酵母(15°C)1.97 × 10⁶ CFU/mL;细菌峰值:25°C 酿酒酵母 5.10 × 10⁸ CFU/mL(24 h);96 h 细菌:1.02 × 10⁸–2.42 × 10⁸ CFU/mL;乳酸菌初始:酿酒酵母 25°C 1.77 × 10⁷ CFU/mL、毕赤酵母 2.87 × 10⁶–4.47 × 10⁶ CFU/mL;乳酸菌终浓度:25°C 3.28 × 10⁸、15°C 3.07 × 10⁸ CFU/mL;酵母初始:毕赤酵母 5.80 × 10⁷ CFU/mL;酵母终浓度:酿酒酵母 15°C 4.80 × 10⁸、25°C 3.57 × 10⁸ CFU/mL;显著性:p < 0.05
3.3 生咖啡豆的物理性质
泰国阿拉比卡生豆的物理性质受发酵温度交互作用的显著调控(p < 0.05),原文节选至此中断,后续结果原文未详述。
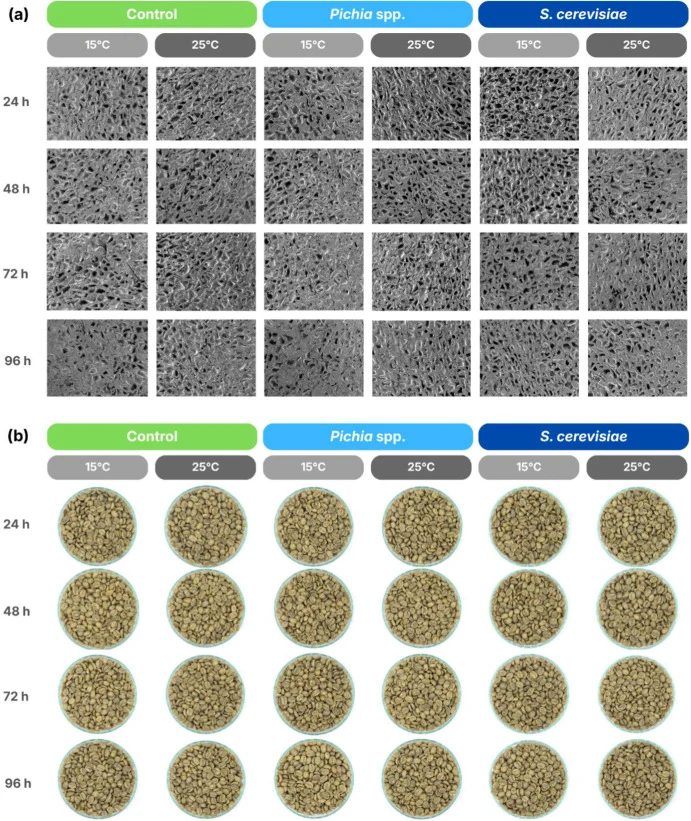
【数据】显著性:p < 0.05;其余数值原文未详述
讨论与解读
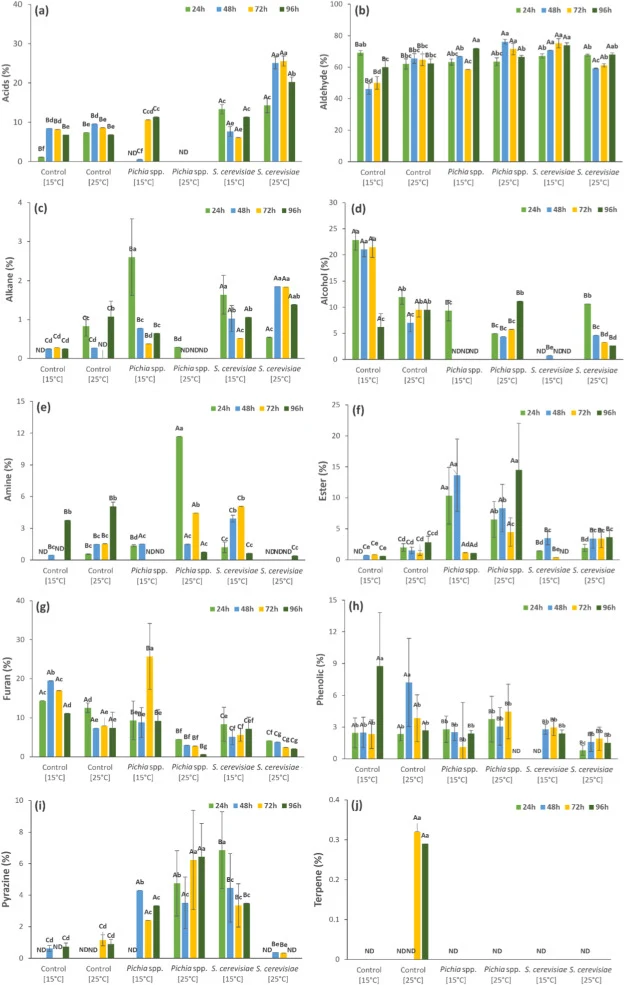
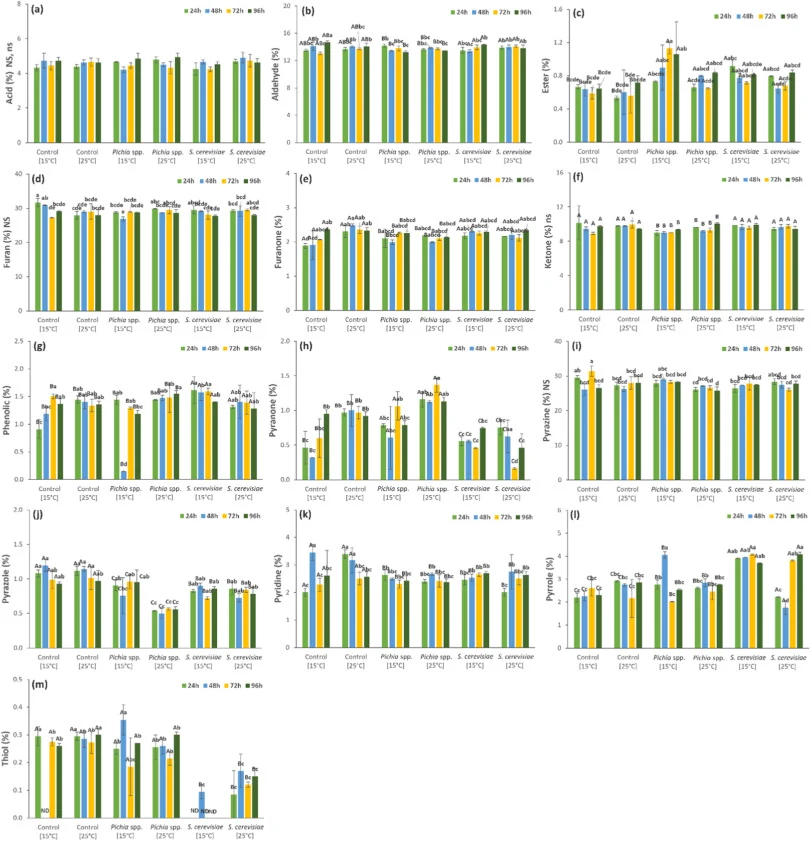
原文结论部分把本研究定位为一条系统框架:通过可控微生物干预,将泰国北部阿拉比卡从商用级提升至精品级(≥80 分)。主效应与交互分析确认了生物接种与热管理的分工——发酵剂选择是决定前体特异性的首要生物驱动因素(毕赤酵母驱动酯类富集,酿酒酵母驱动有机酸、吡咯与吡啶累积),发酵温度则是动力学调节器,掌控代谢节奏与挥发性物质保留(15°C 防止酵母耗竭、保留低沸点呋喃,25°C 加速糖酵解通量)。最优工艺为 15°C、96 h、酿酒酵母浸没发酵,感官得分峰值 81.50。该结果依托于酿酒酵母的强劲生长(4.8 × 10⁸ CFU/mL),其竞争过野生菌群并显著刺激乳酸菌,驱动受控的果胶酸化(48 h 内 pH 跌破 3.9,96 h 收敛至 3.70 以下,而 25°C 未接种对照最低仅 3.33)与葡萄糖完全耗尽。酵母介导的酶活与有机酸释放促成代谢预加载,成为微生物来源前体渗入豆体基质的通道。热加工阶段,毕赤酵母充当专门的酯类……(原文节选至此中断)。
编译者解读:这项工作把"菌种×温度×时间"当作三因子设计来调咖啡风味,思路上接近合成生物学里的底盘-条件正交优化:酿酒酵母像高效糖耗底盘,毕赤酵母像偏向酯合成的模块,15°C 则充当降低代谢通量的调速器。价值在于用本土菌株把产区风土写进工艺参数,可复制、可标准化。局限也明显——挥发性组分只做到半定量分组比较,未给出关键酯类的绝对浓度与感官阈值关联;菌群互作仍停留在计数层面,缺少宏基因组或代谢通路的直接证据。
参考来源
期刊:Journal of Agriculture and Food Research, 2026
DOI: 10.1016/j.jafr.2026.103414
DOI: 10.1016/j.jafr.2026.103414