来源:Structure of the MurA-LpxC enzyme complex in modulating peptidoglycan and lipopolysaccharide biosynthesis(Journal of Structural Biology)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
革兰阴性菌的细胞包膜稳态依赖肽聚糖(PG)与脂多糖(LPS)两条合成途径的精密协调。两条途径的首个关键酶MurA与LpxC能否直接互作、如何互作,一直是该领域悬而未决的结构问题。本研究利用冷冻电镜解析了铜绿假单胞菌MurA-LpxC复合物在LpxC抑制剂CHIR-090存在与缺失条件下的原子结构(分辨率分别为2.35 Å与2.46 Å),结合结构指导的定点突变与体外pull-down实验,鉴定出三个互作界面及关键残基,并证明MurA Gly58有利于但不足以促成复合物形成。该工作为理解细胞包膜两条生物合成途径的协同调控提供了结构基础。
研究背景
细菌细胞包膜是高度特化的多层结构,既维持细胞完整性,又作为选择性屏障抵御毒性化合物与抗生素。按包膜外膜数目,细菌可分为单膜型与双膜型。双膜型包膜由内膜(IM)与外膜(OM)构成,两者之间夹有薄层肽聚糖。外膜是不对称双层,由脂多糖、脂蛋白和磷脂组成;LPS本身又由脂质A、核心寡糖与O抗原多糖三部分构成。
PG与LPS的生物合成共享前体池,因此两条途径必须紧密协调才能维持包膜稳态——失衡会损害细胞活力并改变抗生素敏感性。双膜型病原菌感染的治疗日益困难,部分原因正是其复杂细胞表面带来的高内在耐药性。铜绿假单胞菌是代表性双重包膜人类病原体,也是本研究的主角。MurA与LpxC分别催化PG与LPS合成的第一个承诺步骤,二者之间的直接互作此前已有生化和体内证据,但缺乏复合物的高分辨率结构,互作界面与关键残基不明。
研究方法
4.1 克隆
MurA(UniProt: Q9HVW7)与LpxC(UniProt: P47205)自铜绿假单胞菌PAO1克隆至pDBHT-2-TEV载体(由商品化pET28a载体改造而来),带N端六聚组氨酸标签及TEV切割位点。本研究使用的蛋白汇总于表S2。MurA突变体(C117S、G58D、G58S、E406K、E407A、R17A/K255A、D399A、E407A/R17A/K255A、D399A/R17A/K255A、E407A/R17A/K255A/D399A)通过定点突变构建,并经DNA测序验证。突变所用引物汇总于表S3。
【数据】菌株:铜绿假单胞菌PAO1;载体:pDBHT-2-TEV(改造自pET28a);标签:N端六聚组氨酸标签+TEV切割位点;突变体数量:10个;验证方法:DNA测序;引物信息:表S3;蛋白信息:表S2
4.2 蛋白表达与纯化
蛋白表达时,将质粒转化至大肠杆菌BL21 Rosetta细胞。过夜培养物转接至2xYT培养基,培养至OD600为0.6至0.8。以0.2 mM异丙基-β-D-硫代半乳糖苷(IPTG)诱导蛋白表达,16 °C过夜、160 rpm振荡培养。离心收集细胞(4000 g,10 min,4 °C)。
对于野生型及突变体His-MurA的纯化,细胞重悬于缓冲液[20 mM Tris-HCl(pH 7.5)、150 mM NaCl]。超声裂解细菌,20,000 rpm、4 °C离心30 min去除不溶性细胞碎片。收集上清,与预平衡的镍-次氮基三乙酸(NTA)珠在4 °C下于翻转摇床孵育1 h。树脂用10倍柱体积的20 mM Tris-HCl(pH 7.5)、150 mM NaCl、30 mM咪唑充分洗涤,随后用20 mM Tris-HCl(pH 7.5)、150 mM NaCl、250 mM咪唑洗脱。洗脱蛋白用30 kDa截留分子量(MWCO)离心超滤浓缩器(Millipore)浓缩。浓缩蛋白上样至预平衡的HiLoad 16/600 Superdex 200 pg凝胶过滤柱(Cytiva),缓冲液为[20 mM Tris-HCl(pH 7.5)、150 mM NaCl]。
His-LpxC纯化方式类似,仅缓冲液改为20 mM Tris-HCl(pH 7.5)、500 mM NaCl。Strep-LpxC则使用Strep-Tactin XT Superflow高容量树脂(IBA Lifesciences)纯化:去除不溶性细胞碎片后,上清与预平衡树脂在4 °C翻转摇床孵育1 h;树脂用10倍柱体积的20 mM Tris-HCl(pH 7.5)、500 mM NaCl充分洗涤;结合蛋白用20 mM Tris-HCl(pH 7.5)、500 mM NaCl并补充50 mM生物素洗脱。含目标蛋白的组分合并后浓缩至10 mg/mL。蛋白浓度用NanoDrop分光光度计测定,依据计算所得消光系数与分子量。蛋白于液氮中速冻,−80 °C保存备用。
【数据】表达菌株:E. coli BL21 Rosetta;培养基:2xYT;诱导条件:OD600 0.6–0.8、0.2 mM IPTG、16 °C、过夜、160 rpm;收菌:4000 g、10 min、4 °C;裂解:超声;离心:20,000 rpm、30 min、4 °C;Ni-NTA孵育:4 °C、1 h;洗涤:10倍柱体积、30 mM咪唑;洗脱:250 mM咪唑;浓缩:30 kDa MWCO;凝胶过滤:HiLoad 16/600 Superdex 200 pg;His-MurA缓冲液:20 mM Tris-HCl pH 7.5、150 mM NaCl;His-LpxC缓冲液:20 mM Tris-HCl pH 7.5、500 mM NaCl;Strep洗脱:50 mM生物素;终浓度:10 mg/mL;保存:液氮速冻、−80 °C
4.3 复合物形成
PaMurA-PaLpxC-CHIR-090复合物按1:2:10比例形成:3.75 μM PaMurA与7.5 μM PaLpxC在75 μM CHIR-090存在下,于复合缓冲液[20 mM Tris-HCl(pH 7.5)、150 mM NaCl]中4 °C孵育1 h,终体积500 μL。随后上样至预平衡的Superdex 200 Increase 10/300 GL凝胶过滤柱(Cytiva),缓冲液为[20 mM Tris-HCl(pH 7.5)、150 mM NaCl],浓缩至2 mg/mL后速冻。
【数据】摩尔比:MurA:LpxC:CHIR-090 = 1:2:10;MurA浓度:3.75 μM;LpxC浓度:7.5 μM;CHIR-090浓度:75 μM;缓冲液:20 mM Tris-HCl pH 7.5、150 mM NaCl;温度:4 °C;时间:1 h;终体积:500 μL;凝胶过滤柱:Superdex 200 Increase 10/300 GL;终浓度:2 mg/mL
4.4 体外pull-down实验
纯化的Strep-PaLpxC与His-PaMurA(野生型及突变体)在10 μM CHIR-090存在下,于复合缓冲液[20 mM Tris-HCl(pH 7.5)、150 mM NaCl]中冰上孵育30 min形成复合物,蛋白浓度2.5 μM,终体积100 μL。混合物加入100 μL Strep-Tactin XT Superflow高容量树脂(IBA Lifesciences),4 °C旋转孵育1 h。珠子用300 μL复合缓冲液[20 mM Tris-HCl(pH 7.5)、150 mM NaCl](补充10 μM CHIR-090)洗涤三次。蛋白用50 μL洗脱缓冲液(20 mM Tris-HCl pH 7.5、150 mM NaCl、50 mM生物素)于4 °C孵育10 min洗脱。样品经NuPAGE 4–12% Bis-Tris凝胶分离,考马斯染色检测。
【数据】蛋白浓度:2.5 μM;CHIR-090浓度:10 μM;缓冲液:20 mM Tris-HCl pH 7.5、150 mM NaCl;孵育:冰上30 min;树脂体积:100 μL;结合:4 °C、1 h;洗涤:300 μL×3;洗脱:50 μL、50 mM生物素、4 °C、10 min;凝胶:NuPAGE 4–12% Bis-Tris;检测:考马斯染色
4.5 冷冻电镜数据采集与处理
对于有无CHIR-090两种条件下的PaMurA-PaLpxC复合物,各取4 μL浓度1 mg/mL的蛋白样品,加至石墨烯包覆的Quantifoil Cu R1.2/1.3载网,按已有方法速冻(Qiao et al., 2024)。两套数据在Titan Krios(Thermo Fisher Scientific,美国)300 kV电子显微镜上采集,该显微镜配备GIF Quantum能量过滤器和K3直接电子探测器(Gatan,美国),欠焦范围−0.6 μm至−1.2 μm。电影图像采集放大倍数为165 kx,像素尺寸0.76 Å。
【数据】样品体积:4 μL;蛋白浓度:1 mg/mL;载网:石墨烯包覆Quantifoil Cu R1.2/1.3;电镜:Titan Krios 300 kV;能量过滤器:GIF Quantum;探测器:K3;欠焦范围:−0.6至−1.2 μm;放大倍数:165 kx;像素尺寸:0.76 Å
4.6 数据处理与模型构建
电影图像先进行分块运动校正,再用CryoSPARC 4.6进行分块CTF估计(Punjani et al., 2017)。选取估计CTF分辨率优于5 Å的显微照片进入后续处理(流程见图S1)。先用Blob Picker挑选部分颗粒进行2D分类以生成2D模板;随后分别通过Ab-Initio重建生成好颗粒与垃圾颗粒的3D模型。Template Picker挑选的颗粒经人工筛选后以256的box size提取。所有颗粒经三轮异质精修去除污染物与低质量颗粒。同质精修后,颗粒依次进行基于参考的运动校正、局部与全局精修。用共识模型进一步做异质精修,最佳模型的颗粒用于非均匀精修与局部精修。最终,无/有CHIR-090的PaMurA-PaLpxC复合物电子密度图基于金标准傅里叶壳层相关(FSC)= 0.143分别解析至2.46 Å与2.35 Å。模型构建以MurA(PDB ID: 5BQ2)与LpxC(PDB ID: 5U39)晶体结构为起始,用COOT人工调整(Emsley et al., 2010),并在Phenix Suite中进行实空间精修(Adams et al., 2010)。结构相关图片用ChimeraX(Pettersen et al., 2021)与PyMOL(DeLano, 2002)制作。冷冻电镜数据采集与精修统计汇总于表S1。
【数据】软件:CryoSPARC 4.6;CTF筛选阈值:优于5 Å;box size:256;异质精修:3轮;分辨率:无CHIR-090 2.46 Å、有CHIR-090 2.35 Å;FSC标准:0.143;起始模型:MurA PDB 5BQ2、LpxC PDB 5U39;建模软件:COOT、Phenix;制图:ChimeraX、PyMOL;统计:表S1
4.7 序列分析与比对
铜绿假单胞菌与大肠杆菌的MurA、LpxC序列用Clustal Omega与Espript 3.0比对,MurA以PDB: 5BQ2、LpxC以PDB: 5U39作二级结构描绘。
【数据】比对工具:Clustal Omega、Espript 3.0;二级结构参考:MurA PDB 5BQ2、LpxC PDB 5U39;物种:铜绿假单胞菌、大肠杆菌
4.8 结构分析与比对
结构分析与比对在ChimeraX(Pettersen et al., 2021)中用Matchmaker工具完成,配对选项为参考结构中的特定链与匹配结构中的最佳比对链,参数默认。结构比对基于Cα原子,随后以2.0 Å为 cutoff 迭代拟合与修剪。MurA G58残基的计算机突变(G58D与G58S)在ChimeraX上用Rotamers工具完成(Shapovalov and Dunbrack Jr., 2011),参数默认。MurA-LpxC-CHIR-090与MurA-LpxC-肉豆蔻酸复合物中的大分子界面用PDBePISA网络服务器分析(Krissinel and Henrick, 2007),参数默认。氨基酸保守性评分用ConSurf计算(Landau et al., 2005; Yariv et al., 2023),参数默认,并使用预测互作的MurA-LpxC序列对的MSA(Hummels et al., 2023),采用贝叶斯法计算保守性评分。默认分析中,同源序列用HMMER搜索算法从UNIREF90检索,保守性评分用WAG进化模型计算。对于MurA-LpxC序列对,则使用此前预测的互作MurA-LpxC序列对MSA(Hummels et al., 2023),采用JTT进化模型。
【数据】软件:ChimeraX Matchmaker;比对基准:Cα原子;修剪cutoff:2.0 Å;突变工具:Rotamers;界面分析:PDBePISA;保守性:ConSurf(贝叶斯法);同源检索:UNIREF90/HMMER;进化模型:WAG(默认)、JTT(序列对)
研究结果
2.1 PaMurA-PaLpxC-CHIR-090三元复合物的冷冻电镜结构
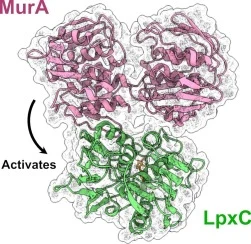
我们以1:1:1的终摩尔比成功重建了PaMurA-PaLpxC-CHIR-090复合物。分析型尺寸排阻色谱(SEC)图谱显示复合物完整,并经考马斯染色SDS-PAGE确认(图1A)。
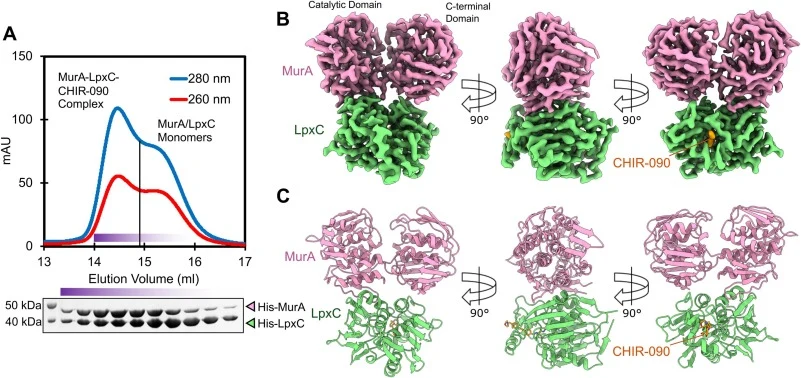
尽管该MurA-LpxC复合物相对较小,分子量约80 kDa,但借助石墨烯包覆载网与单颗粒冷冻电镜分析,其结构被成功解析,整体分辨率达2.35 Å(图S1与表S1)。这使我们得以构建PaMurA与结合于PaLpxC的化合物CHIR-090复合的原子模型(图1B与C)。结构比较显示,结合CHIR-090的PaLpxC与先前解析的PaLpxC-CHIR-090晶体结构高度吻合(Piizzi et al., 2017)(PDB: 5U39,图S2A)。相比之下,PaMurA表现出显著的构象可塑性。PaMurA与游离的阴沟肠杆菌MurA相似(Eschenburg and Schönbrunn, 2000)(PDB: 1EJC,图S2B),但与结合尿苷二磷酸-2-(N-乙酰葡糖胺基)丁酸的闭合态PaMurA(PDB: 5BQ2,图S2C)相比存在明显构象差异。在结合CHIR-090的PaMurA-PaLpxC结构中,PaMurA采取开放构象。我们的结构与先前发表的PaMurA与PaLpxC的AlphaFold模型整体高度相似,该模型中MurA与LpxC被建模为单链,中间以含15个Gly-Gly-Gly-Ser重复序列的连接子分隔(Hummels et al., 2023)。但预测模型与我们的结构不同之处在于,PaMurA采取闭合构象,其催化域与C端域靠得更近(图S2D)。尽管我们做了大量尝试以获取闭合态PaMurA与PaLpxC的复合物,即使用催化失活的C117S突变体、加入UDP-N-乙酰葡糖胺及其抑制剂磷霉素,冷冻电镜分析得到的仍是同样的开放态PaMurA与PaLpxC-CHIR-090复合物。
此外,我们解析了无CHIR-090抑制剂条件下PaMurA-PaLpxC复合物的结构(图2)。
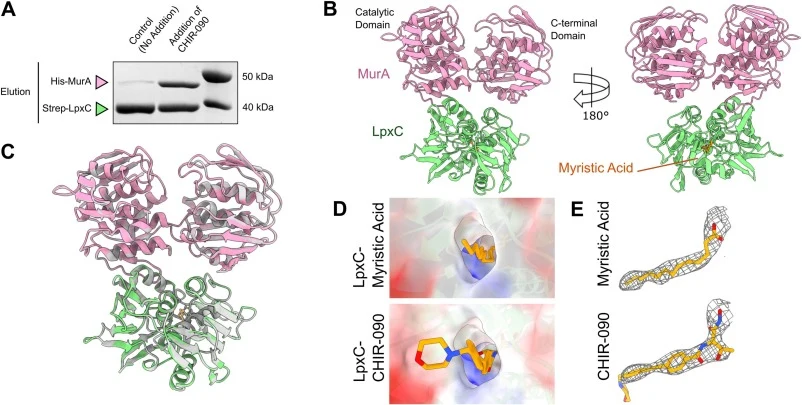
虽然无CHIR-090时复合物形成效率较低(图2A),单颗粒冷冻电镜分析通过大量颗粒挑选仍获得整体分辨率2.46 Å的重建(图S1与表S1)。这使我们构建了PaMurA与结合于PaLpxC的肉豆蔻酸复合的原子模型(图2B)。尽管PaMurA-PaLpxC-肉豆蔻酸数据集存在中等程度的优势取向,结合CHIR-090与结合肉豆蔻酸的整体结构高度相似(图2C)。密度图显示LpxC底物结合位点疏水通道内存在非蛋白密度,形状细长,与含酰基链配体一致(图2D)。类似的密度——对应共纯化的肉豆蔻酸、棕榈酸等脂肪酸——此前在嗜热菌LpxC结构中也通过质谱鉴定过(Whittington et al., 2003)。我们将该密度归因于在大肠杆菌异源表达及后续蛋白纯化过程中保留的脂肪酸。依据其细长形状,我们将该密度建模为肉豆蔻酸(图2E),并纳入PaMurA-PaLpxC-肉豆蔻酸复合物。
【数据】复合物摩尔比:1:1:1;复合物分子量:约80 kDa;整体分辨率:有CHIR-090 2.35 Å、无CHIR-090 2.46 Å;参考结构:PaLpxC-CHIR-090 PDB 5U39、E. cloacae MurA PDB 1EJC、闭合态PaMurA PDB 5BQ2;AlphaFold连接子:15个Gly-Gly-Gly-Ser重复;配体:CHIR-090、肉豆蔻酸;载网:石墨烯包覆
2.2 PaMurA与PaLpxC之间的互作
冷冻电镜结构揭示PaMurA与PaLpxC存在三个不同的界面(I、II、III),涉及PaMurA的催化域与C端域(图3A,表S4与表S5)。
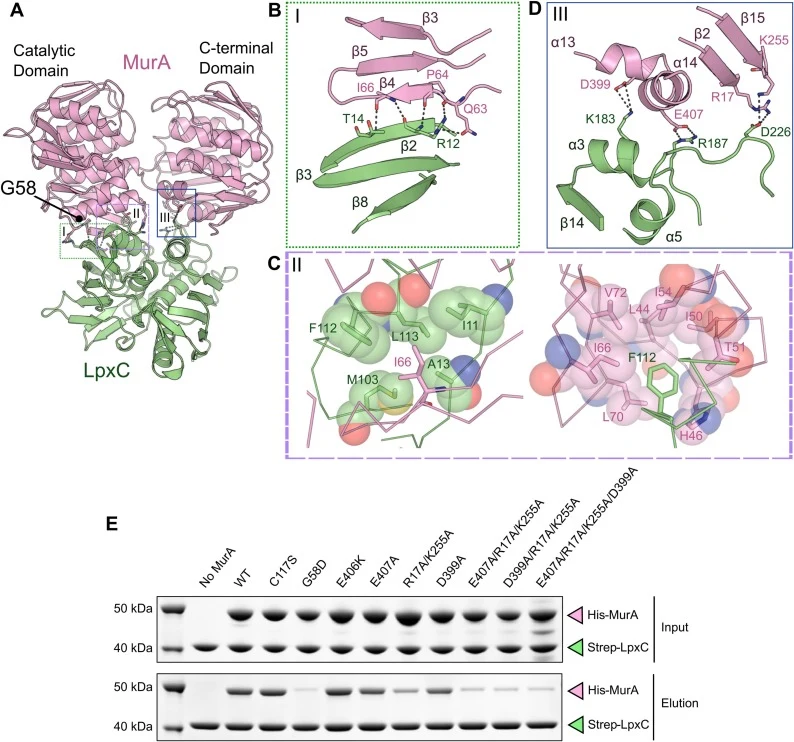
界面I由MurA催化域介导,涉及多重氢键:MurA β4折叠上的I66与LpxC β2折叠上的T14互作,同时MurA的I66、P64与Q63共同与LpxC β2折叠上的R12互作(图3B)。界面II由MurA催化域与LpxC之间紧密堆积的疏水簇构成:MurA的I66被LpxC的五个残基(M103、F112、L113、I11与A13)包围,LpxC的F112则被MurA的八个残基(L70、I66、V72、L44、I54、I50、T51与H46)包围(图3C)。界面III由多重盐桥组成,稳定MurA C端域与LpxC的互作:MurA β2折叠上的R17与β15折叠上的K255与LpxC的D226互作,MurA α13螺旋上的D399与LpxC α3螺旋上的K183互作,MurA α14螺旋上的E407与LpxC的R187互作(图3D)。
为进一步考察参与MurA-LpxC复合物形成的互作,我们针对基于结构设计的关键MurA突变体开展了体外pull-down实验(以LpxC为诱饵)。不出所料,单G58D突变体(此前报道会削弱MurA结合LpxC的能力(Hummels et al., 2023))确实完全消除了复合物形成。相反,单突变(D399A或E407A)对复合物形成影响甚微(图3E)。双突变R17A/K255A——其中R17与K255同LpxC的D226互作(图3D)——明显降低了MurA的pull-down。进一步,组合突变体如E407A/R17A/K255A、D399A/R17A/K255A与E407A/R17A/K255A/D399A,均将MurA与LpxC的复合物形成消除至与G58D突变体相近的水平(图3E)。这些突变结果与结构发现一致,表明MurA-LpxC复合物由多重互作网络稳定,必须破坏多个接触才能消除复合物形成。
与先前报道一致(Hummels et al., 2023),C117S(催化失活)与E406K(非激活)突变体对MurA结合LpxC影响甚微,而G58D破坏二者互作,可能因空间位阻而消除复合物形成(图3E与图4D)。我们最初试图通过冷冻电镜分析MurA E406K突变体与结合CHIR-090的LpxC的复合物来研究这一激活机制。虽然可检测到结合,但未能获得稳定复合物与2D类图以开展后续冷冻电镜分析。
我们将PaMurA与PaLpxC同大肠杆菌对应蛋白进行序列比对(图4A与B),此前报道EcMurA不与EcLpxC互作(Hummels et al., 2023)。
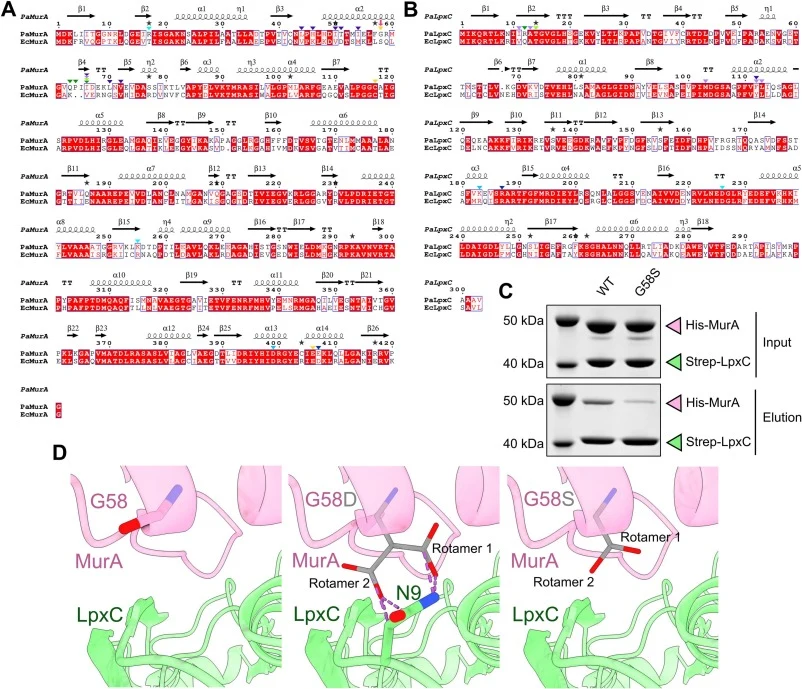
序列比对显示,参与复合物形成的大部分残基保守,例外是铜绿假单胞菌MurA的G58,在大肠杆菌中对应为S58(图4A)。我们的结果显示PaMurA G58D替换会破坏复合物形成(图3E),可能因该位置存在侧链而阻碍MurA与LpxC互作(图4D)。与G58D不同,丝氨酸仅略大于甘氨酸,未观察到明显空间位阻(图4D)。因此我们构建了PaMurA G58S突变体,模拟在等效位置带丝氨酸残基的EcMurA,并在CHIR-090存在下进行pull-down实验。G58S MurA突变体显著削弱了其与LpxC的互作(图4C)。Gly58不太可能主要通过直接侧链互作发挥作用,因为甘氨酸没有侧链。此外,Gly58缺少Cβ原子,不具备约束其他氨基酸主链构象的空间限制(Ho and Brasseur, 2005)。因此其功能重要性可能源于维持最佳MurA–LpxC识别所需的局部主链构象与构象柔性。将甘氨酸替换为丝氨酸预计会限制局部主链柔性,从而即使在无直接空间干扰的情况下也扰动结合界面的几何构型。虽然S58为EcMurA所独有,此前发现不结合其同源AbaLpxC的鲍曼不动杆菌MurA(Hummels et al., 2023)仍保留……(原文此处节选结束)
【数据】互作界面数:3个(I、II、III);界面I关键残基:MurA I66、P64、Q63;LpxC T14、R12;界面II疏水簇:MurA I66、F112、L70、V72、L44、I54、I50、T51、H46;LpxC M103、F112、L113、I11、A13;界面III盐桥:MurA R17、K255、D399、E407;LpxC D226、K183、R187;pull-down:G58D消除复合物、D399A/E407A影响甚微、R17A/K255A明显降低、三突变与四突变消除至G58D水平;C117S与E406K影响甚微;G58S显著削弱互作;比对:PaMurA G58对应EcMurA S58
2.3 讨论要点与结构意义(原文讨论节选)
本研究解析了开放态PaMurA与结合CHIR-090/肉豆蔻酸的PaLpxC复合物的结构。与铜绿假单胞菌MurA-LpxC配对不同,大肠杆菌配对不互作(Hummels et al., 2023)。将PaMurA催化域上的Gly58突变为Ser58以模拟EcMurA,表明MurA Gly58有利于但不足以促成复合物形成。通过结构分析,我们鉴定出三个主要互作界面及其关键互作残基,并用MurA突变体的体外pull-down实验进行了生化验证。综合来看,多重互作网络共同促成复合物形成。
此前一项里程碑研究发现,PaMurA直接且特异性地与PaLpxC互作,在体外与体内均刺激LpxC活性(Hummels et al., 2023)。MurA对LpxC的调控类似大肠杆菌细胞包膜生物合成中其他蛋白-蛋白别构调控的例子。例如,外膜脂蛋白LpoB通过结合其调控域UB2H别构激活青霉素结合蛋白PBP1b(Egan et al., 2018)。这种瞬时别构偶联引导PG合成,PG合成启动后LpoB从PBP1b解离(Shlosman et al., 2025)。类似地,在LPS生物合成中,衔接蛋白LapB被发现别构抑制LpxC活性,并促进AAA+蛋白酶FtsH对LpxC的降解(Möller et al., ……原文节选至此)。
编译者解读:该工作用约80 kDa的小复合物啃下了冷冻电镜的硬骨头——石墨烯载网把2.35 Å的分辨率拿到手,方法学上值得借鉴。结构加突变把"多点弱互作、需协同破坏"的界面逻辑讲清楚了,G58S实验则巧妙利用种间差异做功能解剖。局限也明显:开放态结构无法直接解释MurA如何别构激活LpxC,E406K复合物未获稳定样品即是证据;体内功能回补缺失,CHIR-090结合对界面构象的影响也未定量。对合成生物学而言,这套界面残基清单可作为改造PG/LPS通量配比、构建条件性包膜弱化菌株的候选靶点。
参考来源
期刊:Journal of Structural Biology, 2026
DOI: 10.1016/j.jsb.2026.108374
DOI: 10.1016/j.jsb.2026.108374