来源:Revealing NMN-induced biomacromolecular complex and conformational regulation of digestive enzymes (Trypsin, Pepsin, α-Amylase): Insights from molecular dynamics simulation and multi-spectroscopy(Biochemical Pharmacology)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
烟酰胺单核苷酸(NMN)作为NAD⁺前体广受抗衰老研究关注,但作为口服活性分子,它不可避免地在胃肠道中与消化酶相遇。本文通过分子对接、分子动力学模拟与多光谱联用,系统刻画了NMN与胰蛋白酶、胃蛋白酶、α-淀粉酶的结合模式、构象调控及功能后果。结果显示胃蛋白酶对NMN最为敏感——结合能最低、结构最稳定、抑制最强;复合物形成后抗氧化能力下降而抗炎活性增强。
研究背景
天然酶是典型生物大分子,具有类似聚合物的构象柔性,其α-螺旋、β-折叠等折叠模式与聚合物链排布相似。理解酶与小分子的相互作用,对认识生物大分子复合物以及功能物质在体内的代谢与释放均有帮助。α-淀粉酶、胃蛋白酶和胰蛋白酶在营养物的水解与代谢调控中扮演关键角色。胰蛋白酶是典型的丝氨酸蛋白酶,对蛋白质水解催化具有高特异性,参与蛋白质分解代谢;胃蛋白酶是胃液中最主要的的天冬氨酸蛋白酶,也是胃液中唯一存在的蛋白水解酶,其活性中心以保守的酪氨酸和色氨酸残基为特征,在药物研究中胃蛋白酶与口服治疗药物的潜在相互作用尤为重要;α-淀粉酶是关键的糖代谢酶,能催化淀粉分子内α-1,4-糖苷键的水解。NMN作为口服生物活性分子,与这些消化酶的相互作用尚未被系统表征,而这直接关系到其生物利用度、稳定性与生理功能。
研究方法
2.1 材料
NMN(97%)购自北京索莱宝科技有限公司。NMN用双蒸水配制成1.00 × 10⁻² mol/L。胰蛋白酶(猪胰腺)购自上海麦克林生化科技有限公司。胃蛋白酶(猪胃黏膜)和α-淀粉酶(猪胰腺)购自上海源叶生物科技有限公司。所有蛋白质均溶解于Tris-HCl缓冲液(0.05 mol/L,pH = 7.40)中作为溶剂,浓度为1.00 × 10⁻⁴ mol/L。卵清蛋白(OVA)购自Bide Pharmatech有限公司。Ellman试剂(D806870;98%)和对硝基苯乙酸酯(pNPA,N814797;98%)购自上海阿拉丁生化科技股份有限公司(中国上海)。所有试剂均为分析纯。
【数据】NMN纯度:97%;NMN储备液浓度:1.00 × 10⁻² mol/L;蛋白质浓度:1.00 × 10⁻⁴ mol/L;缓冲液:Tris-HCl 0.05 mol/L;pH:7.40;Ellman试剂纯度:98%;pNPA纯度:98%
2.2 仪器
本研究使用荧光分光光度计(Perkin Elmer,LS55,美国)、Ohus电子天平(Ohus,CP213,中国)、pH计(上海,PHs-2C,中国)、岛津UV–2501分光光度计(东京,UV–2501,日本)、扫描电子显微镜(SEM,Tescan,Vega3,中国)、圆二色光谱仪(CD,Chirascan VX)、酶标仪(Specctrostar Nano)。
【数据】荧光分光光度计型号:Perkin Elmer LS55;天平型号:Ohus CP213;pH计型号:PHs-2C;紫外分光光度计型号:Shimadzu UV–2501;SEM型号:Tescan Vega3;CD型号:Chirascan VX;酶标仪型号:Specctrostar Nano
2.3 方法
#### 2.3.1 微观结构分析
使用场发射SEM观察样品的微观结构。将冻干样品用导电双面胶固定在样品台上,用溅射镀膜仪喷金60 s。形态拍摄时在15 kV加速电压下对样品形状进行拍照。
【数据】喷金时间:60 s;加速电压:15 kV;样品状态:冻干
#### 2.3.2 分子对接与分子动力学模拟
使用Auto Dock Vina(默认参数)进行分子对接,随后用PyMOL可视化并用LigPlot分析。分子动力学模拟使用Desmond[26]在300 K下进行,配体为NMN(PubChem CID 14180),受体分别为胰蛋白酶(PDB ID 5MNG)、胃蛋白酶(PDB ID 6XD2)、α-淀粉酶(PDB ID 1HX0)。轨迹每10 ps保存一次(共10,000帧),用于分析均方根偏差(RMSD)、均方根涨落(RMSF)和回转半径(Rg)。结合自由能用gmx MMPBSA计算。
【数据】对接软件:Auto Dock Vina(默认参数);模拟软件:Desmond;温度:300 K;NMN PubChem CID:14180;胰蛋白酶PDB ID:5MNG;胃蛋白酶PDB ID:6XD2;α-淀粉酶PDB ID:1HX0;轨迹保存间隔:10 ps;总帧数:10,000帧;结合自由能方法:gmx MMPBSA
#### 2.3.3 荧光光谱
分别向2.5 mL胰蛋白酶、胃蛋白酶和α-淀粉酶(1.00 × 10⁻⁴ mol/L)中加入NMN(1.00 × 10⁻² mol/L)溶液。NMN终浓度分别为0.00、0.40、0.80、1.20、1.60、2.00、2.40、2.80、3.20和3.60(×10⁻⁶ mol/L)。分别在292、301、310和315 K下恒温30 min后进行测定。荧光发射光谱记录范围为280–450 nm,激发波长为280 nm。荧光激发狭缝和荧光发射狭缝均为15 nm。所有样品的同步荧光光谱通过在240–400 nm范围内同时扫描激发和发射强度获得,波长间隔(Δλ)分别固定为15和50 nm。
【数据】蛋白体积:2.5 mL;蛋白浓度:1.00 × 10⁻⁴ mol/L;NMN终浓度:0.00–3.60 × 10⁻⁶ mol/L(10个梯度);温度:292、301、310、315 K;恒温时间:30 min;发射波长范围:280–450 nm;激发波长:280 nm;狭缝:15 nm/15 nm;同步荧光扫描范围:240–400 nm;Δλ:15和50 nm
#### 2.3.4 猝灭机制与热力学参数
通过Stern-Volmer方程(1)进行数据分析,可确定NMN对胰蛋白酶、胃蛋白酶和α-淀粉酶的荧光猝灭机制:
(1)F₀/F = 1 + Kq[Q]τ₀ = 1 + Ksv[Q]
其中F₀和F分别为加入猝灭剂前后荧光分子的相对荧光强度值,Ksv为Stern-Volmer猝灭常数,Kq为生物分子的猝灭速率值,[Q]为猝灭剂浓度值,τ₀为荧光分子的初始平均寿命,通常近似为10⁻⁸ s[27,28]。
双对数方程(2)可进一步拟合获得结合常数(Ka)和结合位点数(n):
(2)log[(F₀−F)/F] = log Ka + n log[Q]
Van't Hoff方程((3)、(4))可用于计算NMN与胰蛋白酶、胃蛋白酶和α-淀粉酶之间非共价相互作用的热力学参数:
(3)ln Ka = −ΔH/RT + ΔS/R
(4)ΔG = −RT ln Ka = ΔH − TΔS
其中R(8.314 J·mol⁻¹·K⁻¹)为气体常数,T为热力学温度,ΔH为焓变,ΔS为熵变,ΔG为自由能变化。
【数据】τ₀:10⁻⁸ s;气体常数R:8.314 J·mol⁻¹·K⁻¹;方程:Stern-Volmer、双对数、Van't Hoff
#### 2.3.5 紫外–可见吸收光谱
分别向2.5 mL胰蛋白酶、胃蛋白酶和α-淀粉酶(1.00 × 10⁻⁴ mol/L)中加入NMN(1.00 × 10⁻² mol/L)溶液。NMN终浓度分别为0.00、0.40、0.80、1.20和1.60(×10⁻⁶ mol/L),充分混匀后静置30 min。使用紫外–可见分光光度计记录200–350 nm波长范围内的吸收光谱。
【数据】蛋白体积:2.5 mL;蛋白浓度:1.00 × 10⁻⁴ mol/L;NMN终浓度:0.00–1.60 × 10⁻⁶ mol/L(5个梯度);静置时间:30 min;波长范围:200–350 nm
#### 2.3.6 圆二色光谱
将胰蛋白酶/胃蛋白酶/α-淀粉酶(1.00 × 10⁻⁴ mol/L)与10/20 μL NMN(1.00 × 10⁻² mol/L)的混合体系装入2 mm石英比色皿。NMN终浓度为0.00、2.00和4.00(×10⁻⁴ mol/L)。在连续氮气流下记录CD光谱(190–260 nm),每个样品扫描三次取平均。通过CDNN软件计算二级结构比例(α-螺旋、β-折叠、β-转角、无规卷曲)。
【数据】蛋白浓度:1.00 × 10⁻⁴ mol/L;NMN加入体积:10/20 μL;NMN储备液浓度:1.00 × 10⁻² mol/L;NMN终浓度:0.00、2.00、4.00 × 10⁻⁴ mol/L;比色皿光程:2 mm;CD波长范围:190–260 nm;扫描次数:3次;分析软件:CDNN
#### 2.3.7 NMN与消化酶生理功能测定
##### 2.3.7.1 酯酶活性测定
将消化酶与不同浓度的NMN混合30 min,然后加入pNPA,在400 nm处测定反应产物的吸光度。
【数据】混合时间:30 min;检测波长:400 nm;底物:pNPA
##### 2.3.7.2 自由基清除能力测定
操作同2.7.1节。约20 μM pNPA替换为Ellman试剂,室温下混合。在412 nm处测定体系吸光度。
【数据】Ellman试剂浓度:约20 μM;混合温度:室温;检测波长:412 nm
##### 2.3.7.3 抗炎活性
将不同浓度的NMN分别与三种消化酶混合反应30 min。加入1 mL 1% OVA溶液,37°C孵育20 min。65°C水浴浸泡15 min后,认为混合物中的OVA已变性。借助紫外–可见双光束分光光度计观察660 nm处吸光度。
【数据】混合反应时间:30 min;OVA浓度:1%;OVA体积:1 mL;孵育温度:37°C;孵育时间:20 min;水浴温度:65°C;水浴时间:15 min;检测波长:660 nm
##### 2.3.7.4 酶活性抑制率测定
将NMN分别与三种酶混合后,参照文献[29,30]中的酶活性测定方法,采用公式(5)计算抑制率:
(5)抑制率% = (A₀ − A₁)/A₀ × 100%
【数据】计算公式:抑制率% = (A₀ − A₁)/A₀ × 100%;参考文献:[29,30]
#### 2.3.8 数据处理
考虑荧光强度降低的另一理由是内滤效应。当吸光度保持在0.312以下时,该效应可被有效校正:
(6)Fcor = Fobs × e^[(Aex + Aem)/2]
本研究中,Fcor和Fobs代表校正后的荧光强度,Aex为激发波长处的吸光度,Aem为发射波长处的吸光度,表示体系的吸收特征。本文使用的荧光数据均已进行适当校正。数据以三组重复的均值及其标准差表示(mean ± SD)。数据使用Origin 2025软件(OriginLab Corporation,美国)处理,并使用SPSS软件(International Business Machines Corporation,美国)进行单因素方差分析(ANOVA),统计学显著性差异为p < 0.05。
【数据】内滤效应校正阈值:吸光度<0.312;校正公式:Fcor = Fobs × e^[(Aex+Aem)/2];重复数:3组;统计软件:Origin 2025、SPSS;显著性水平:p < 0.05
研究结果
3.1 胰蛋白酶、胃蛋白酶、α-淀粉酶与NMN相互作用后微观形貌的变化
SEM是提供小分子结构及配体–酶相互作用多样信息的有效工具[31]。如图2所示,SEM结果表明NMN相互作用改变了消化酶的微观结构。原始状态下,胰蛋白酶表面光滑起伏,椭圆形腔均匀分布。胃蛋白酶呈现独特的层状结构,表面有不规则突起。α-淀粉酶表现为不规则的颗粒聚集体。与NMN结合后,酶–NMN复合物表现出显著的形态变化。NMN–胰蛋白酶主要呈光滑质地,层状结构和独特腔体几乎完全消失。NMN–胃蛋白酶中的层状结构和表面突起消失,代之以分散均匀的圆形凹陷,表面光滑度增强。相比之下,NMN–α-淀粉酶的颗粒聚集程度降低,在片状基底上形成聚集颗粒的复合结构,但仍保持颗粒形态。这一现象可能与NMN诱导的酶相互作用及冻干基质中分子组织变化有关,也可能与NMN和三种消化酶结合位点及作用力类型的差异有关[32]。上述结果表明NMN相互作用改变了消化酶的形态,胰蛋白酶和胃蛋白酶的结构重排较α-淀粉酶更为明显[33,34]。需要指出的是,SEM观察反映的是冻干样品的形貌,因此并不直接代表水合条件下复合物的聚集状态或网络结构[35,36]。
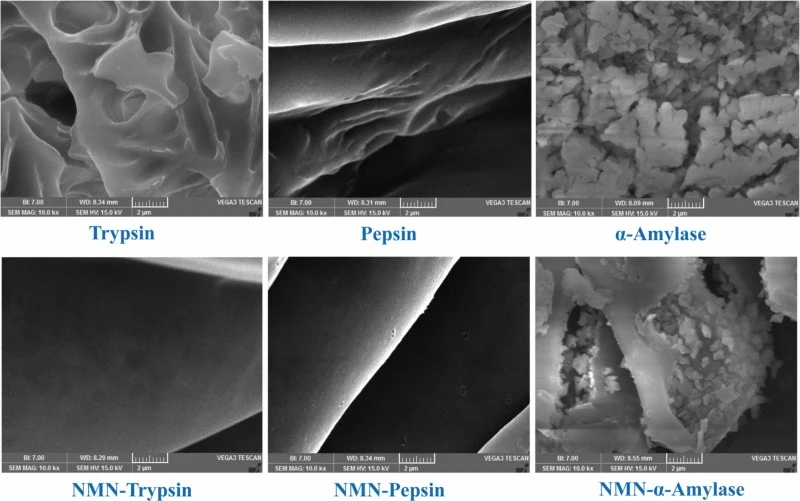
【数据】SEM加速电压:15 kV;喷金时间:60 s;结合能:胰蛋白酶−31.83 KJ/mol、胃蛋白酶−38.47 KJ/mol、α-淀粉酶−30.52 KJ/mol(见3.2);形态变化:胰蛋白酶层状结构与腔体消失、胃蛋白酶层状结构与突起消失代之以圆形凹陷、α-淀粉酶颗粒聚集度降低
3.2 分子对接
分子对接是预测蛋白质–配体相互作用的有效方法[37]。利用分子对接方法,比较胰蛋白酶、胃蛋白酶、α-淀粉酶与NMN之间的相互作用,以确定它们之间的相互作用类型,并直观反映蛋白质与NMN的结合状态。结果如图3所示。胰蛋白酶、胃蛋白酶、α-淀粉酶与NMN结合的ΔG分别为−31.83 KJ/mol、−38.47 KJ/mol和−30.52 KJ/mol。结合能越低,复合物越稳定。对接分析表明NMN优先与位于酶疏水腔附近的残基相互作用,并通过多种非共价相互作用形成稳定复合物。在NMN–胃蛋白酶中,NMN分子周围存在Asp32、Tyr189、Phe111和Val291等关键氨基酸残基。NMN被蛋白质中的疏水性氨基酸残基包围,其中Tyr189与NMN磷酸基团的氧原子形成氢键。此外,Asp32也与NMN的羟基氧原子形成氢键。在NMN–胰蛋白酶中,NMN被一些疏水性氨基酸残基包围,Ser217、Asp189、Ser190和Hip57与NMN形成氢键和盐桥相互作用。在NMN–α-淀粉酶体系中,Hie305通过氢键与NMN的羟基氧原子相互作用。综合分析表明,三个体系中均存在疏水相互作用和氢键相互作用,但三个体系中氢键数量不同,相互作用类型也不完全相同,表明NMN与不同消化酶之间的结合稳定性存在差异。
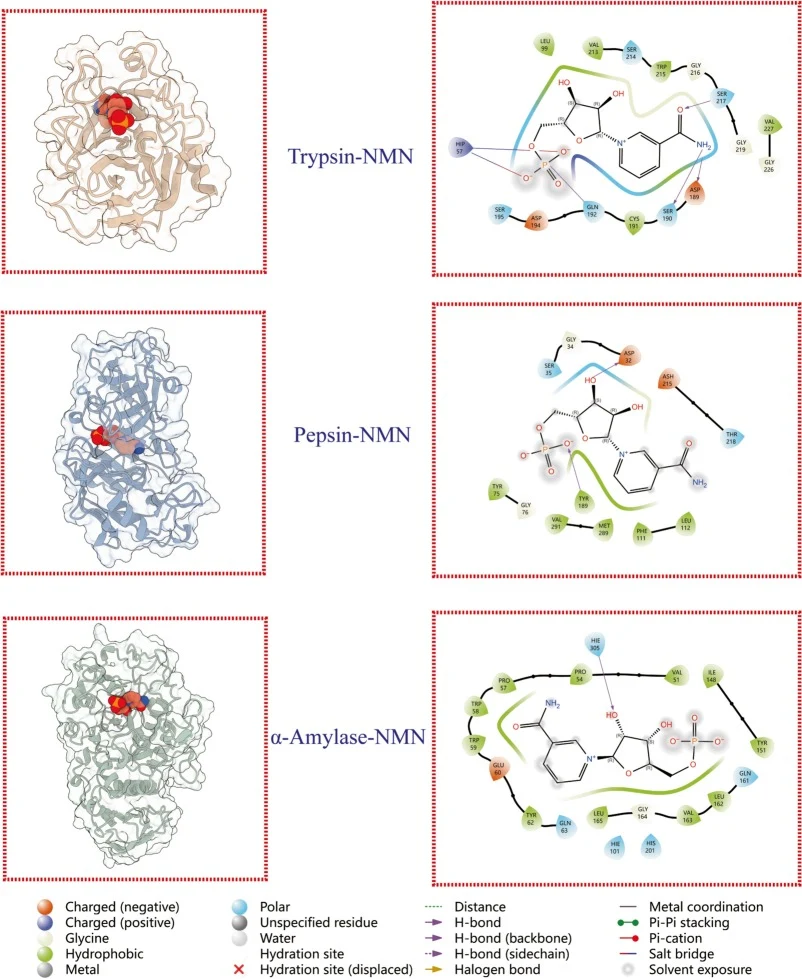
【数据】结合自由能ΔG:胰蛋白酶−31.83 KJ/mol、胃蛋白酶−38.47 KJ/mol、α-淀粉酶−30.52 KJ/mol;胃蛋白酶关键残基:Asp32、Tyr189、Phe111、Val291;胰蛋白酶关键残基:Ser217、Asp189、Ser190、Hip57;α-淀粉酶关键残基:Hie305;氢键:Tyr189与NMN磷酸基氧、Asp32与NMN羟基氧、Hie305与NMN羟基氧
3.3 分子动力学模拟
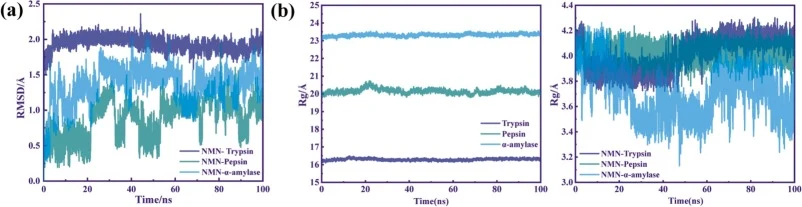
RMSD用于衡量模拟过程中蛋白质或分子的整体构象变化。数值越小,结构越稳定。在蛋白质分子动力学模拟中,可追踪模拟结构与参考结构之间的RMSD变化,以揭示蛋白质的结构演化,如折叠和构象转变。通过监测分子涨落范围评估分子的平衡状态[38]。图4-a显示了MD模拟过程中NMN–胰蛋白酶、NMN–胃蛋白酶和NMN–α-淀粉酶的RMSD变化。NMN–胰蛋白酶复合物的RMSD在整个模拟过程中相对稳定,表明复合物整体构象变化不大,稳定性良好。NMN–胃蛋白酶/α-淀粉酶复合物的RMSD在模拟初期迅速升高,随后趋于稳定,表现出一定的构象稳定性。相比之下,NMN–胃蛋白酶的RMSD显著低于NMN–胰蛋白酶和NMN–α-淀粉酶,表明NMN–胃蛋白酶复合物结构更稳定[39]。Rg常被用作评价蛋白质结构变化的特征参数。Rg值越小表示结构越紧凑、折叠越紧密,Rg值越大则提示构象更伸展、更开放[40]。如图4-b所示,在胃蛋白酶和胰蛋白酶–NMN体系中,蛋白质结构在模拟过程中保持稳定。NMN–α-淀粉酶复合物在模拟过程中表现出良好的构象稳定性,Rg值波动较小,呈现适度的构象柔性,有利于维持生物学功能。稳定的结构可能通过限制活性位点的可及性或改变其几何形状,从而促成所观察到的酶活性抑制[41]。RMSD和Rg数据均表明,NMN诱导的酶复合物表现出与聚合物类似的构象稳定性[42]。
RMSF为MD模拟过程中各残基的涨落提供了重要的结构信息[40]。通过计算胰蛋白酶、胃蛋白酶、α-淀粉酶与NMN形成的复合物的RMSF值,评估蛋白质的局部运动性[5]。该值用于计算每个氨基酸的平均涨落程度。数值越低,结构稳定性越高。如图5-a的RMSF所示,各体系的RMSF值存在一定差异,大多数氨基酸的RMSF小于2.5 Å,表明复合物整体结构稳定。较低的RMSF值进一步证实NMN的结合限制了局部柔性[43]。对关键残基的分析(图5-b)揭示了对结合有显著贡献的残基。分析表明,NMN–胰蛋白酶、NMN–胃蛋白酶和NMN–α-淀粉酶体系中对结合能贡献最大的残基依次为Ser217、Ser190和Hip57,Asp32、Tyr189和Phe111;59Trp、62Tyr。这些残基的化学性质与各体系的主导作用力高度一致。胰蛋白酶、胃蛋白酶和α-淀粉酶中的疏水残基主导疏水相互作用,极性残基介导氢键。这些结果表明这些残基在配体结合过程中起关键作用。这些分子动力学模拟结果与分子对接数据一致。NMN–胃蛋白酶的最低结合自由能(−38.47 KJ/mol)与较小的Rg和最低的RMSD相关,证实其形成最稳定的复合物。此外,对接鉴定的关键氢键残基与同步荧光光谱中观察到的Try和Tyr残基微环境变化一致,验证了NMN–酶结合的特异性。NMN的疏水腔嵌入类似于小分子诱导的合成聚合物聚集[44,45],氢键和疏水相互作用为主要驱动力。
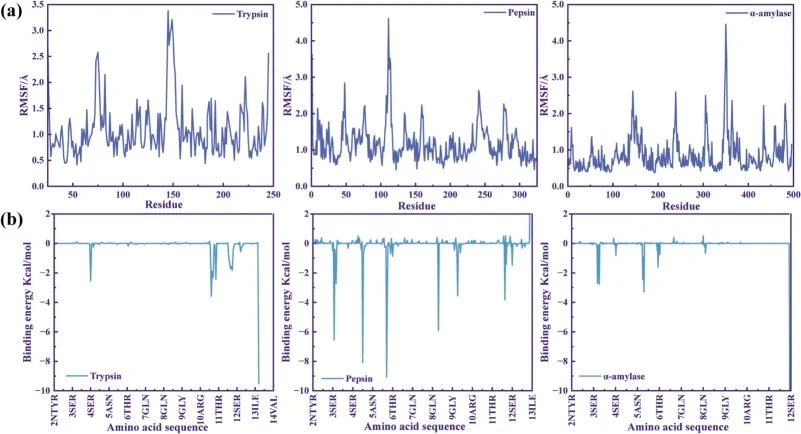
【数据】RMSF阈值:大多数氨基酸<2.5 Å;结合自由能:NMN–胃蛋白酶−38.47 KJ/mol;关键残基:NMN–胰蛋白酶Ser217、Ser190、Hip57;NMN–胃蛋白酶Asp32、Tyr189、Phe111;NMN–α-淀粉酶59Trp、62Tyr;模拟温度:300 K;轨迹帧数:10,000帧
3.4 荧光光谱
#### 3.4.1 NMN对胰蛋白酶、胃蛋白酶和α-淀粉酶荧光猝灭的影响
荧光光谱[46]可测量和分析荧光发射峰、能量转移效率、荧光团寿命、荧光……(原文节选至此)
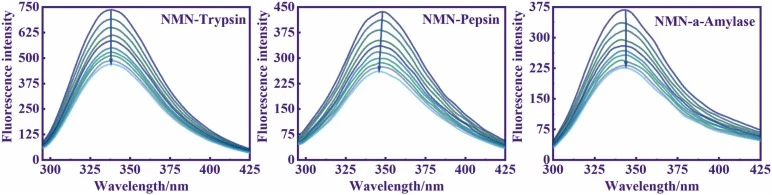
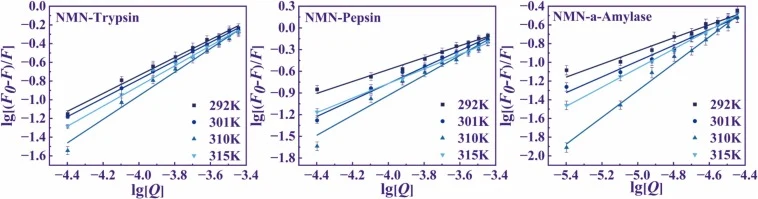
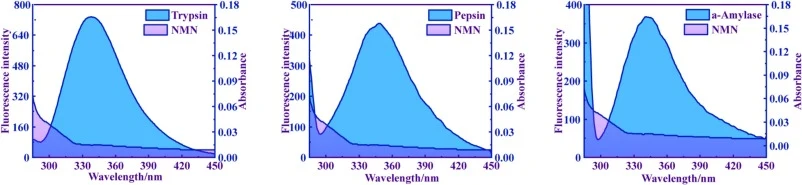
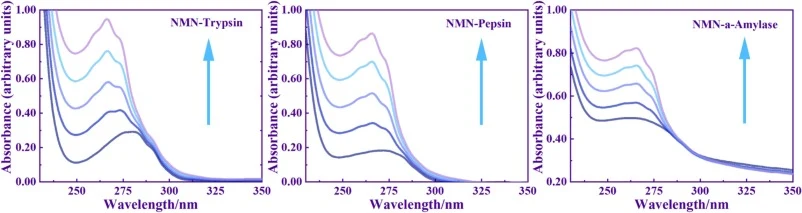
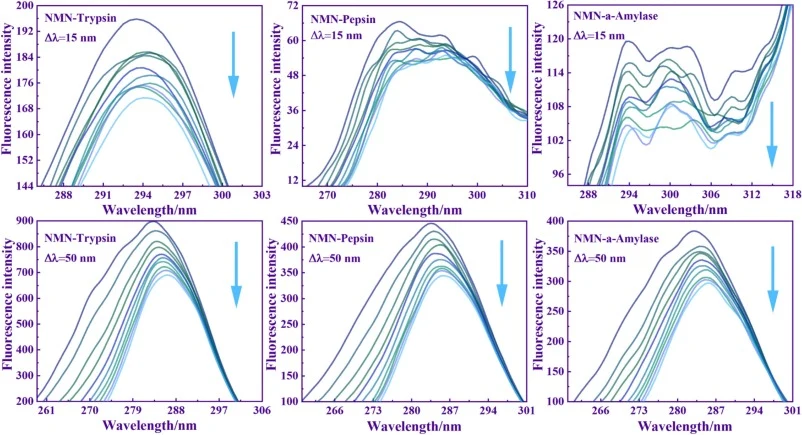
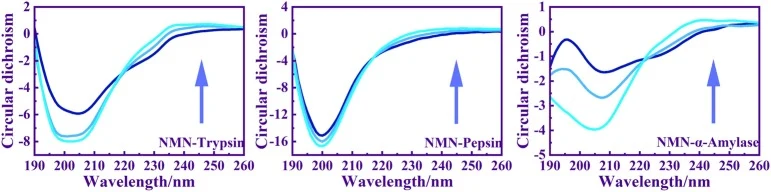
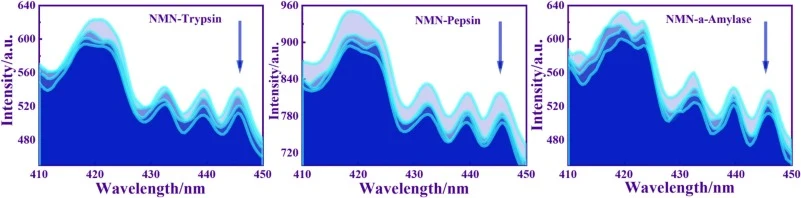
【数据】蛋白浓度:1.00 × 10⁻⁴ mol/L;NMN浓度梯度:0.00–3.60 × 10⁻⁶ mol/L(荧光滴定)、0.00–1.60 × 10⁻⁶ mol/L(紫外)、0.00–4.00 × 10⁻⁴ mol/L(CD);温度:292、301、310、315 K;原文节选至此,后续定量结果原文未详述
讨论与解读
NMN与胰蛋白酶、胃蛋白酶和α-淀粉酶的结合被比较分析。三种酶中,胃蛋白酶表现出最高的结合亲和力、最小的RMSD和最强的抑制作用,表明胃蛋白酶与NMN的相互作用最为显著。相比之下,胰蛋白酶和α-淀粉酶响应较弱。尽管存在这些定量差异,疏水相互作用和氢键在三个体系中仍占主导地位。NMN与三种消化酶的相互作用类型相似,功能扰动程度由各酶独特结构决定。此外,复合物形成过程中抗氧化能力同时下降而抗炎活性增强,表明NMN结合不仅抑制酶的催化功能,还调控消化酶的非催化生物学功能。这在一定程度上为理解NMN对消化酶的不同影响提供了分子层面的理论数据。
原文亦指出局限:实验主要在体外pH 7.40模拟条件下进行,该pH用于实现三种酶的平行比较,但未反映胃蛋白酶在胃中的实际酸性环境(原文节选至此)。
编译者解读:该研究把NMN–消化酶互作从"是否结合"推进到"结合在哪、结构怎么变、功能受何影响"的三层证据链,多光谱与MD互证的做法值得借鉴。但pH 7.40的统一条件牺牲了胃蛋白酶生理相关性,且SEM仅反映冻干态。对合成生物学而言,若将NMN用于口服递送或酶共递送体系,需在模拟胃肠液中重做成败关键的功能验证。
参考来源
Biochemical Pharmacology, 2026. DOI: 10.1016/j.bcp.2026.118565
DOI: 10.1016/j.bcp.2026.118565