来源:Metabolic rewiring and semi-rational engineering of chondroitin synthase enable high-titer extracellular chondroitin production in Bacillus subtilis(Chemical Engineering Journal)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
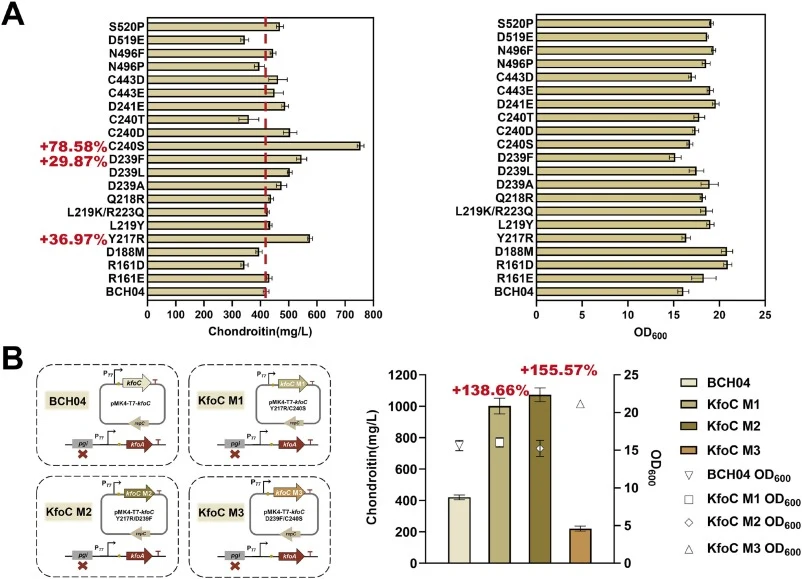
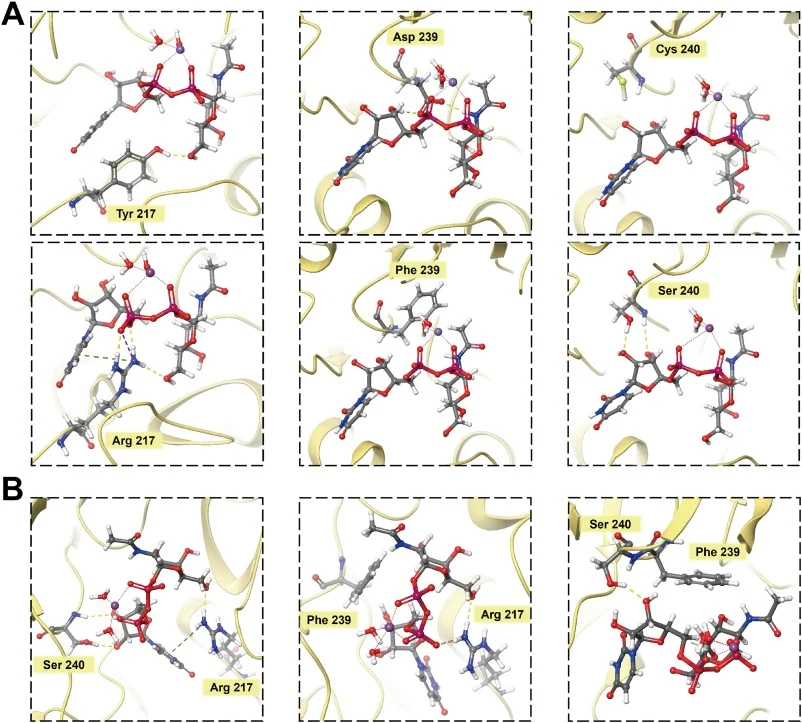
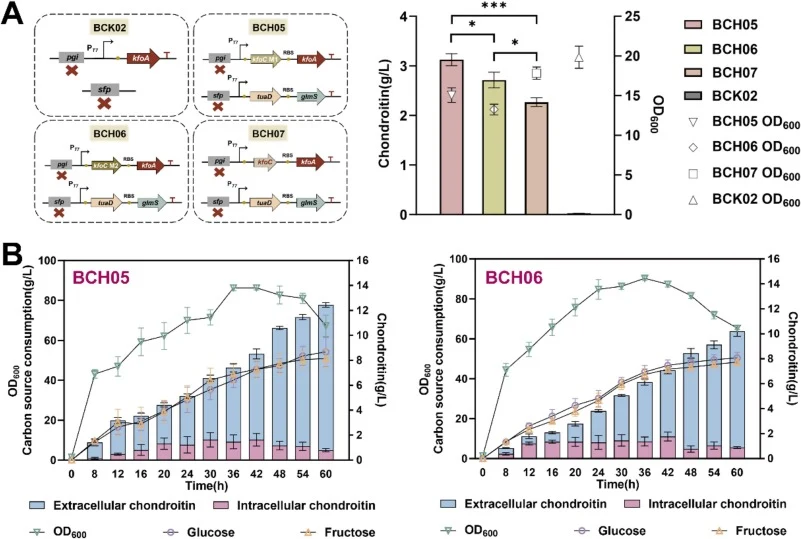
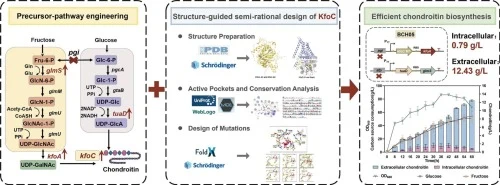
软骨素(chondroitin)是硫酸软骨素(CS)的核心骨架,目前商业CS主要依赖动物软骨提取,受原料、病原风险与宗教限制等多重制约。本研究以枯草芽孢杆菌164T7P为底盘,通过整合异源合成途径、敲除pgi、过表达tuaD与glmS,构建出胞外分泌型菌株BCH03DS,补料发酵滴度达8.46 g/L,其中95.5%位于胞外。进一步对软骨素合酶KfoC进行结构导向半理性设计,Y217R/C240S组合突变体使摇瓶产量较野生型提高138.66%;整合代谢与酶工程后的BCH05在5 L生物反应器中滴度达13.22 g/L,胞外占比94.0%,容积生产率0.22 g/(L·h),碳源得率0.14 g/g。
研究背景
硫酸软骨素是由葡萄糖醛酸(GlcA)与N-乙酰半乳糖胺(GalNAc)以β-1,3/β-1,4糖苷键交替连接而成的线性负电荷糖胺聚糖,并带有可变的硫酸化修饰。其抗炎、抗氧化、抗血栓与神经调节等生物活性,很大程度上取决于硫酸化模式与分子量分布。商业CS主要来自鸡、牛、猪、鲨鱼等动物软骨,分子量通常为14–70 kDa,且随物种、原料年龄与提取工艺波动明显。原料供应有限、养殖周期长、宗教限制、人畜共患病原传播风险与过敏原污染等问题,共同推动了对非动物来源生产方式的探索,化学合成、化学酶法与微生物发酵等路线因此受到关注。
研究方法
2.1 质粒与菌株构建
本研究所用全部菌株与质粒列于表S1与表S2。枯草芽孢杆菌164T7P为此前构建的底盘菌株,其染色体上整合有功能性T7 RNA聚合酶表达盒[33,34],本研究以其作为全部软骨素生物合成研究的宿主底盘。pMK4-T7与pWB-T7质粒作为表达载体。基因缺失与染色体整合通过线性双链DNA(dsDNA)供体片段的同源重组实现。每个供体片段包含目标基因组位点上下游各约800 bp的同源臂,以及相应的表达盒或筛选标记。DNA片段经PCR扩增,并通过重叠延伸PCR或融合PCR组装。采用抗生素标记筛选时,抗性标记两侧带有lox71与lox66位点,便于后续通过Cre介导的重组去除标记。构建好的供体片段按此前描述的方法,利用木糖诱导的感受态系统导入枯草芽孢杆菌[33,35]。简言之,感受态细胞经木糖诱导后与供体DNA片段混合并孵育,以允许同源重组发生。重组菌落用相应抗生素筛选,并通过菌落PCR与DNA测序验证。对于需要去除标记的菌株,通过转入表达Cre的质粒pMK4-cre切除抗生素抗性标记。标记切除后,菌株在无抗生素条件下连续传代,以促进Cre表达质粒的消除。所得无标记菌株经PCR分析与DNA测序确认。
【数据】同源臂长度:约800 bp;诱导剂:木糖;抗性标记位点:lox71/lox66;验证方法:菌落PCR、DNA测序;培养基/温度/时间:原文未详述
2.2 培养基与培养条件
全部菌株在液体Luria–Bertani(LB)培养基中培养,培养基含5 g/L酵母提取物、10 g/L胰蛋白胨与10 g/L NaCl,温度37 °C,转速200 rpm。固体LB培养基通过在液体LB中添加1.5–2.0%(w/v)琼脂制备。需要时按以下浓度添加诱导剂与抗生素(红霉素10 μg/mL、氯霉素10 μg/mL、D-木糖10 g/L)。产软骨素菌株的摇瓶发酵操作如下。首先,将菌落接种至含3 mL液体LB培养基的试管中,37 °C、200 rpm培养12 h。将上述培养物转接至含50 mL液体LB培养基(含10 g/L MOPS)的摇瓶中,37 °C、200 rpm培养。培养至6 h时,以10 g/L木糖诱导,同时添加单独补充碳源:20 g/L蔗糖、20 g/L甘油、20 g/L葡萄糖,或葡萄糖与果糖共补充(各10 g/L)。补料分批培养在5 L可灭菌生物反应器(楚知生物,中国)中进行60 h。初始发酵培养基(LBM)含10 g/L葡萄糖、10 g/L果糖、5 g/L酵母提取物、10 g/L蛋白胨、10 g/L NaCl与10 g/L MOPS,初始pH调至7.0。含2 L发酵培养基的生物反应器以7.5%(v/v)接种比例接入种子培养物。培养温度维持37 °C。通过添加NH₃·H₂O将pH自动控制在7.0。培养过程中连续补加葡萄糖、果糖与木糖,使其残留浓度维持在5–15 g/L。为防止过度起泡与培养液溢出,以0.1 mL/min流速连续添加50%(v/v)非离子型T-F复合消泡剂。培养4 h后,首次加入木糖至终浓度10 g/L以诱导基因表达。后续发酵中依据木糖消耗情况补加,使培养基中浓度维持在5–15 g/L。溶氧(DO)水平维持在30–50%饱和度。为进一步提高工程菌株的软骨素产量,依据已报道的微生物软骨素生产研究[25,36]、既往发酵经验[35,37]以及枯草芽孢杆菌细胞生长与胞外多糖生产的营养需求[23],对初始LBM培养基进行改良。随后通过补料分批发酵评估生产培养基(OPM),并与初始LBM培养基比较。生产培养基含10 g/L葡萄糖、10 g/L果糖、5 g/L酵母提取物、10 g/L蛋白胨、5 g/L玉米浆、5 g/L (NH₄)₂SO₄、1 g/L KH₂PO₄、1 g/L K₂HPO₄、1 g/L MgSO₄·7H₂O、0.01 g/L MnSO₄·H₂O、0.01 g/L FeSO₄·7H₂O、0.001 g/L ZnCl₂与10 g/L MOPS,起始pH校准至7.0。LBM培养基最初用于菌株培养与初步发酵评估,OPM培养基则用于后续生产发酵。与LBM相比,OPM添加了无机盐、微量元素与替代氮源,为延长补料分批培养期间的持续细胞生长与软骨素生产提供更适宜的营养环境。
【数据】LB培养基:酵母提取物5 g/L、胰蛋白胨10 g/L、NaCl 10 g/L;温度:37 °C;转速:200 rpm;琼脂:1.5–2.0%(w/v);红霉素:10 μg/mL;氯霉素:10 μg/mL;D-木糖:10 g/L;种子培养:3 mL、12 h;摇瓶:50 mL、MOPS 10 g/L;诱导:6 h、木糖10 g/L;碳源:蔗糖20 g/L/甘油20 g/L/葡萄糖20 g/L/葡萄糖+果糖各10 g/L;生物反应器:5 L、60 h;接种量:7.5%(v/v);装液量:2 L;pH:7.0;残糖/木糖:5–15 g/L;消泡剂:50%(v/v)、0.1 mL/min;DO:30–50%;OPM:玉米浆5 g/L、(NH₄)₂SO₄ 5 g/L、KH₂PO₄ 1 g/L、K₂HPO₄ 1 g/L、MgSO₄·7H₂O 1 g/L、MnSO₄·H₂O 0.01 g/L、FeSO₄·7H₂O 0.01 g/L、ZnCl₂ 0.001 g/L
2.3 胞内与胞外软骨素的定量
为分别定量胞内与胞外软骨素,取1 mL发酵液离心分离培养上清与细胞沉淀。上清收集为胞外组分。沉淀重悬于1 mL去离子水中,与溶菌酶(25 mg/mL)在37 °C孵育1 h以释放胞内多糖。所得裂解液经离心收集为胞内组分。软骨素按此前描述的方法纯化[23]。简言之,胞外与胞内组分中的多糖通过加入四倍体积乙醇并于4 °C孵育8 h沉淀。沉淀经8000 rpm离心10 min收集,溶于去离子水,离心去除不溶性杂质。纯化流程重复三次以提高样品纯度。软骨素含量采用咔唑–硫酸法测定[38],以空载体菌株作为阴性对照。总回收软骨素按同1 mL发酵样品中胞外与胞内软骨素之和计算。胞外比例按胞外软骨素除以总回收软骨素(胞外+胞内)计算,胞内比例依此类推。
【数据】取样体积:1 mL;溶菌酶:25 mg/mL;裂解温度/时间:37 °C、1 h;乙醇沉淀:4倍体积、4 °C、8 h;离心:8000 rpm、10 min;纯化重复:3次;定量方法:咔唑–硫酸法
2.4 软骨素的结构表征
为实现寡糖组成的高分辨率鉴定,纯化软骨素经酶解解聚。简言之,样品与来自普通变形杆菌(Proteus vulgaris)的软骨素酶ABC在37 °C过夜消化。所得二糖片段通过高分辨液相色谱–质谱(HR-LC-MS)分析,仪器为配备加热电喷雾电离(HESI)源、负离子模式运行的Thermo Scientific Orbitrap Exploris 120质谱仪[39]。冻干软骨素样品与商业CS标准品(上海源叶生物科技有限公司,中国上海)的化学结构与官能团通过傅里叶变换红外(FTIR)光谱表征[40]。光谱在配备氘代硫酸三甘肽(DTGS)KBr检测器与KBr分束器的Thermo Fisher Scientific FTIR光谱仪上记录。样品与背景的每张光谱均以4.0 cm⁻¹分辨率累积32次扫描获得。分析过程中仪器在优化条件下运行,增益1.0、扫描速度0.4747 cm/s、光阑设置100%。
【数据】酶解:软骨素酶ABC、37 °C、过夜;质谱:Orbitrap Exploris 120、负离子模式、HESI源;FTIR:DTGS KBr检测器、分辨率4.0 cm⁻¹、扫描32次、增益1.0、扫描速度0.4747 cm/s、光阑100%
研究结果
3.1 构建用于胞外软骨素生物合成的工程枯草芽孢杆菌
此前关于枯草芽孢杆菌异源基因整合的研究已初步证明其合成与分泌软骨素的能力[23]。通过代谢优化策略,已在生物反应器规模发酵中实现克级软骨素产量[20],表明枯草芽孢杆菌是有前景的软骨素生物合成平台。为进一步提高胞外软骨素产量,本研究选择枯草芽孢杆菌164T7P作为底盘菌株。该菌株此前由本实验室开发,作为多种寡糖的高效生产平台[34,37]。如图1A所示,枯草芽孢杆菌164T7P的天然代谢网络缺乏软骨素合成所需的关键酶促步骤。因此,利用pMK4-T7载体表达来自大肠杆菌K4的软骨素合酶基因kfoC与UDP-葡萄糖4-差向异构酶基因kfoA,并导入枯草芽孢杆菌164T7P,获得重组菌株BCH01(图1B)。同时构建携带空pMK4-T7载体的对照菌株,命名为BCK。通过摇瓶发酵评估工程菌株的软骨素生产能力。如图1C与图S1所示,BCH01在最初24 h内快速生长,OD600达到18.57,随后进入持续24–72 h的稳定期。相比之下,对照菌株BCK的OD600峰值更高,为20.84。同时,BCH01的软骨素产量随时间增加,在24–72 h之间处于快速积累阶段。滴度在72 h达到376.82 mg/L,在120 h达到411.66 mg/L,而BCK中未检测到产物。软骨素主要分泌至胞外培养基(> 90%),胞内积累在72 h出现瞬时峰值(61.65 mg/L)后下降。这些结果提示一种生长–后期生产混合关联模式,软骨素积累主要发生在发酵后期。大部分回收软骨素检测于胞外组分,表明在所测试条件下实现了有效的胞外积累。BCH01生物量较BCK略有降低,提示引入异源合成途径对细胞生长影响有限。总体而言,该工程菌株实现了稳定的软骨素生产且以胞外积累为主,支持其作为进一步发酵优化的微生物平台的潜力。
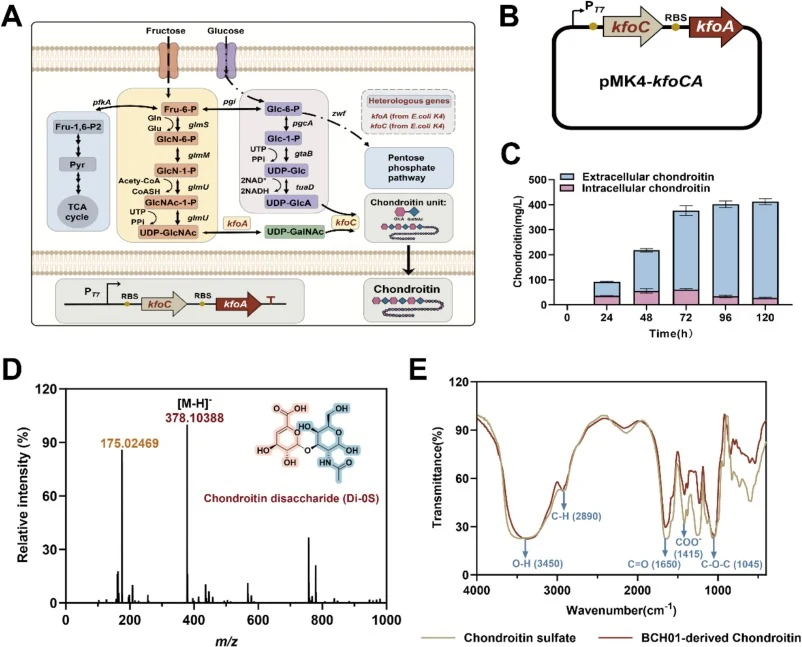
为验证发酵产物的身份,进行了HR-LC-MS与FTIR分析(图1D–E)。为确认BCH01来源产物的化学身份,纯化发酵产物经酶解后在负离子模式下进行HR–LC–MS分析。检测到m/z 378.10388处的显著离子,归属为非硫酸化软骨素二糖单元Di-0S。此外,观察到m/z 175.02469处的诊断性碎片离子,与GlcA来源碎片一致(图1D)。这些特征离子支持发酵产物中存在非硫酸化软骨素二糖单元,确认工程菌株BCH01成功生物合成软骨素骨架。进一步通过FTIR分析表征发酵产物的化学结构。如图1E所示,BCH01来源软骨素的光谱显示出与CS参考标准品相当的主要吸收带,表明多糖骨架相似。3450 cm⁻¹附近的宽吸收带归属为OH伸缩振动,2890 cm⁻¹处的谱带对应CH伸缩。1650 cm⁻¹处的显著谱带归属为N-乙酰基的CO伸缩振动,1415 cm⁻¹处的吸收与GlcA残基来源的羧酸根对称伸缩振动相关。此外,1045 cm⁻¹处的谱带归属为多糖骨架中的C–O–C与CO伸缩振动。骨架相关吸收带的整体相似性支持BCH01成功生产软骨素。与CS标准品相比,发酵产物在硫酸化相关区域存在差异,与其非硫酸化软骨素的性质一致。尽管工程枯草芽孢杆菌成功实现了胞外软骨素生物合成,但初始产量仍不足以支撑高效生物制造,提示UDP-糖途径容量与中心碳代谢可能影响产物的进一步形成。由于软骨素组装需要UDP-GlcA与UDP-GalNAc的协调供应,后续工程聚焦于代谢重定向与UDP-糖前体生物合成的强化。因此,下一节系统评估中心碳途径改造与UDP-糖生物合成步骤工程对枯草芽孢杆菌软骨素生产的影响。
【数据】BCH01 OD600峰值:18.57;BCK OD600峰值:20.84;72 h滴度:376.82 mg/L;120 h滴度:411.66 mg/L;胞内峰值:61.65 mg/L(72 h);胞外占比:> 90%;HR-LC-MS离子:m/z 378.10388(Di-0S)、m/z 175.02469;FTIR谱带:3450、2890、1650、1415、1045 cm⁻¹
3.2 中心碳与UDP-糖生物合成途径工程提高枯草芽孢杆菌软骨素产量
3.2.1 pgi缺失提高软骨素产量并改变碳源依赖性
软骨素的高效生物合成关键取决于两种UDP-糖供体——UDP-GlcA与UDP-GalNAc——充足且平衡的供应[30]。在亲本菌株BCH01中,葡萄糖摄取产生的6-磷酸葡萄糖(Glc-6-P)在中心代谢与UDP-糖前体生物合成之间进行竞争性碳分配。Glc-6-P是一个代谢分支点,可经Pgi介导转化为6-磷酸果糖(Fru-6-P)进入中心糖酵解,或经1-磷酸葡萄糖(Glc-1-P)与UDP-葡萄糖(UDP-Glc)走向UDP-GlcA(图2A)。因此我们推测,破坏pgi可改变葡萄糖来源碳在这两条路线间的分配,从而有利于软骨素生产。为减少Glc-6-P经糖酵解的竞争性消耗并促进碳利用模式转变,敲除pgi基因获得工程菌株BCH02。如图2B所示,BCH02生产599.53 mg/L软骨素,较BCH01提高45.64%。该结果表明pgi缺失提高软骨素产量。该生产表型与Pgi催化反应被破坏后碳分配改变相一致;但并不能直接证明胞内UDP-糖库增加或碳通量的定量重分配。然而,BCH02的OD600低于BCH01,提示pgi缺失损害细胞生长并降低生物量积累。此外,破坏pgi阻断了Glc-6-P与Fru-6-P之间的相互转化,可能改变葡萄糖来源Fru-6-P的可利用性。由于Fru-6-P是经己糖胺途径进入UDP-N-乙酰葡糖胺(UDP-GlcNAc)生物合成的入口底物,该代谢改变可能影响UDP-GlcNAc及下游UDP-GalNAc的供应[41]。但本研究未直接定量胞内Fru-6-P或UDP-糖库,因此该推测关系应视为可能的代谢解释而非直接证实的机制。
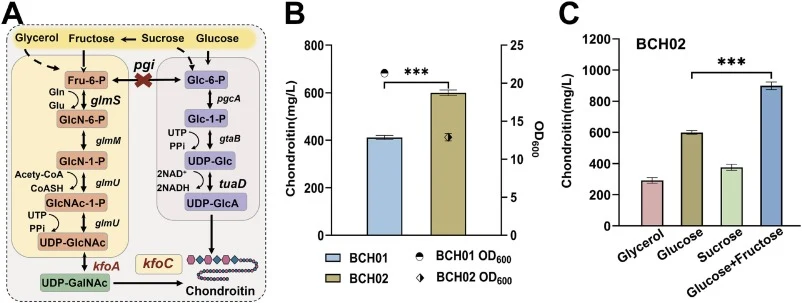
【数据】BCH02滴度:599.53 mg/L;较BCH01提高:45.64%;OD600:BCH02低于BCH01;定量指标(Fru-6-P、UDP-糖库):原文未详述
3.2.2 葡萄糖–果糖共利用提高pgi缺陷菌株的软骨素产量
为考察碳源可利用性对pgi缺陷菌株BCH02软骨素生物合成的影响,评估了四种碳源(甘油、葡萄糖、蔗糖以及葡萄糖–果糖混合物)。如图2C所示,BCH02在不同碳源下表现出明显不同的软骨素产量水平。
【数据】碳源:甘油、葡萄糖、蔗糖、葡萄糖–果糖混合物;具体产量数值:原文节选未详述
讨论与解读
本研究通过整合代谢工程与酶工程的分层优化策略,构建了枯草芽孢杆菌胞外软骨素高效生产平台。代谢重塑(pgi敲除、tuaD与glmS过表达)与KfoC结构导向工程(Y217R/C240S)协同作用,使BCH05在5 L补料分批生物反应器中滴度达13.22 g/L,胞外占比94.0%,碳源得率0.14 g/g,容积生产率0.22 g/(L·h);产物分子量特征与动物来源软骨素产品相当,支持该平台用于无动物来源的可持续生产。作者指出,进一步改进需优化聚合物链特征、提高前体转化效率并开发高细胞密度发酵工艺,以提升生产性能并降低成本。
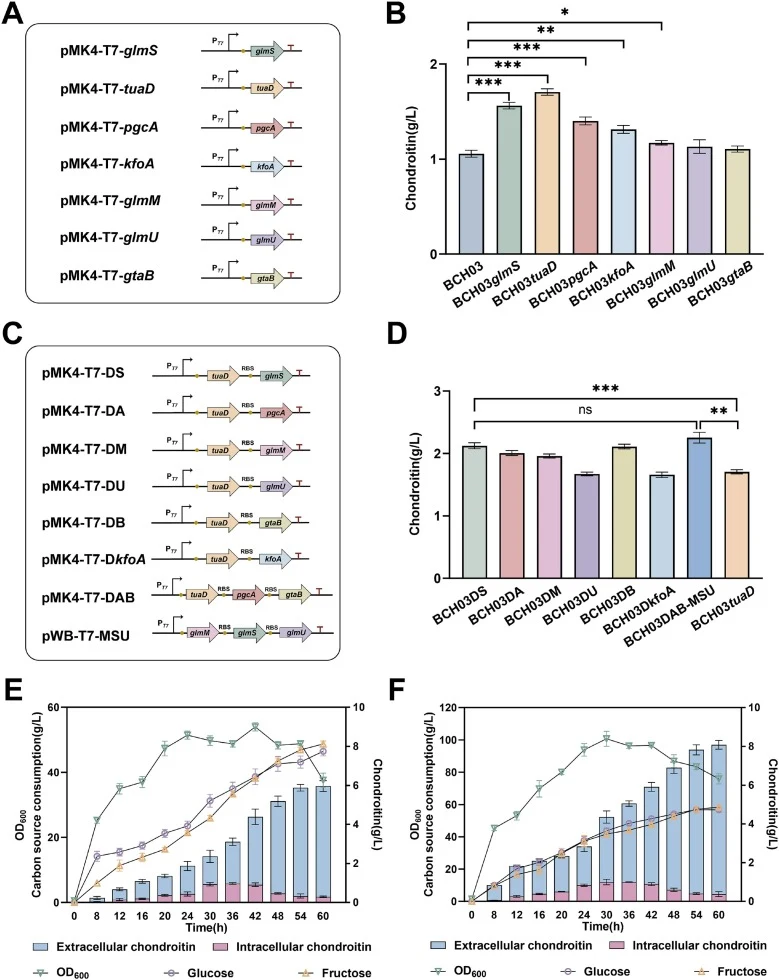
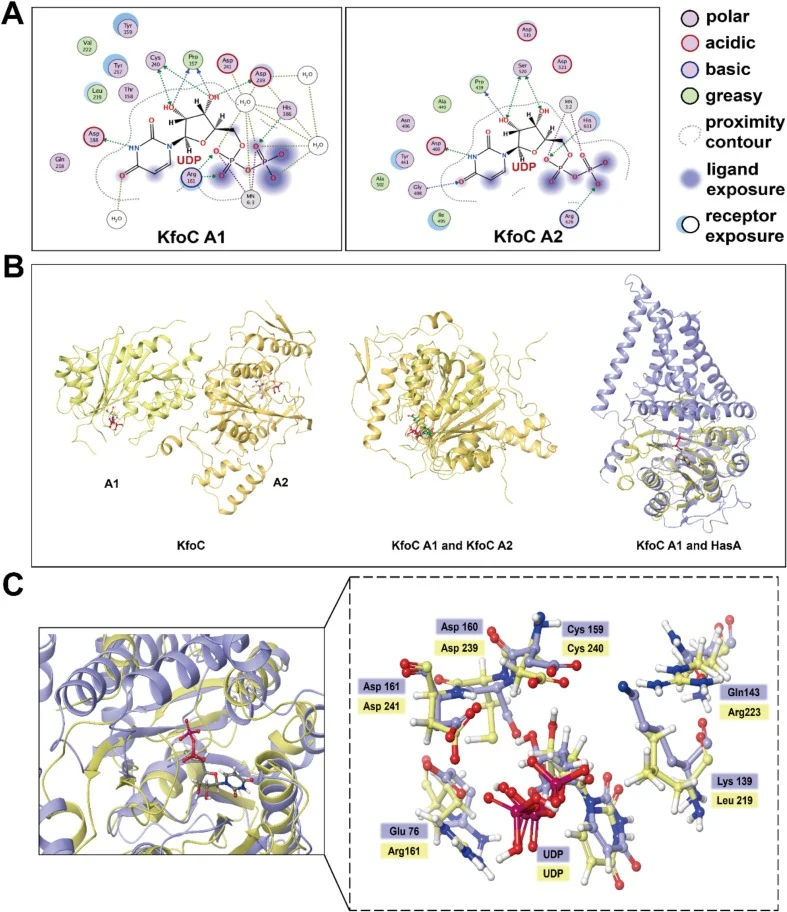
编译者解读:该研究的亮点在于"代谢—酶"双杠杆的协同:pgi敲除重排碳流、tuaD/glmS扩容UDP-糖池,再以结构导向突变补上KfoC这一聚合瓶颈,避免了单点改造的天花板。13.22 g/L的胞外滴度与94%分泌比例,对下游纯化成本是实质性利好。局限在于产物为非硫酸化软骨素骨架,硫酸化修饰与链长控制仍待解决;且pgi缺失拖累生物量,提示碳流重排与生长之间存在待平衡的取舍。
参考来源
期刊:Chemical Engineering Journal, 2026
DOI: 10.1016/j.cej.2026.183710
DOI: 10.1016/j.cej.2026.183710