来源:Biosynthesis of β-Farnesene, a Renewable Biofuel Precursor, from Lignin-Removed Biomass Residues using Engineered Saccharomyces cerevisiae(Biochemical Engineering Journal)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
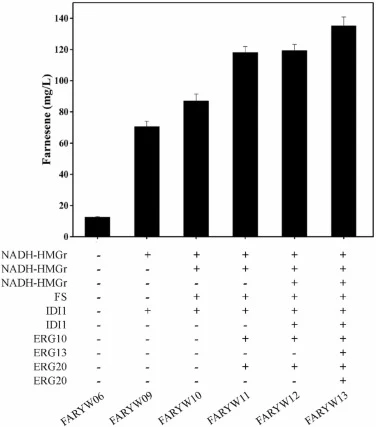
β-法尼烯是一种倍半萜类化合物,可作为柴油燃料前体,但传统植物提取与化学合成受限于资源、效率与成本。本研究在酿酒酵母中重构β-法尼烯合成途径,通过筛选法尼烯合酶、强化乙酰辅酶A供应、优化MVA途径与培养基组分,使工程菌从葡萄糖生产149.88 ± 3.14 mg/L β-法尼烯;进一步以花生壳、玉米芯、构树预处理水解液为碳源,产量分别达到葡萄糖对照的80.37%、74.82%和80.13%,建立了农业生物质残渣到β-法尼烯的转化路线。
研究背景
近几十年来,能源危机已成为严峻的社会与环境问题,来自可再生资源的生物燃料与生物化学品被视为石油的潜在替代品。在已报道的生物基燃料中,倍半萜类——一类含15个碳原子的异戊二烯类化合物——作为高密度可再生燃料的原料具有很大潜力。β-法尼烯(C15H24)是一种重要的倍半萜,通常存在于甜橙油、玫瑰油和橙油等多种精油中,可作为柴油燃料的可再生原料,工业规模生产需求随之上升。然而,传统植物提取和化学合成方法存在植物资源受限、效率低、成本高和环境污染等弊端。利用微生物及其代谢工程进行生物合成因而受到广泛关注,因其高效且环境友好,被认为是颇有前景的替代策略。与其他萜类一样,β-法尼烯可由异戊烯基二磷酸(IPP)和二甲基烯丙基二磷酸(DMAPP)合成,二者来自甲羟戊酸(MVA)途径或2-C-甲基-D-赤藓糖醇-4-磷酸(MEP)途径。
研究方法
2.1 菌株与生长条件
酿酒酵母CEN-PK2-1D菌株在酵母提取物蛋白胨葡萄糖(YPD)培养基中培养,培养基组成为:20 g/L葡萄糖;20 g/L蛋白胨;10 g/L酵母提取物。培养温度为30 °C,转速200 rpm。必要时添加抗生素如下:氨苄青霉素(Amp,100 μg/mL)、遗传霉素(G418,100 μg/mL)和潮霉素B(HygB,100 μg/mL)。本研究构建的所有菌株列于表1。
【数据】菌株:Saccharomyces cerevisiae CEN-PK2-1D;培养基:YPD(20 g/L葡萄糖、20 g/L蛋白胨、10 g/L酵母提取物);温度:30 °C;转速:200 rpm;抗生素:Amp 100 μg/mL、G418 100 μg/mL、HygB 100 μg/mL
2.2 酵母染色体整合
酿酒酵母基因组的基因整合操作按已有报道并作适当修改进行。本工作采用源自化脓性链球菌的双质粒CRISPR-Cas9系统,一个质粒表达Cas9核酸内切酶,另一个表达含20 bp靶向序列的guide-RNA。基于pRS414(CEN6/ARS4)的Cas9-NAT质粒须首先转化进酿酒酵母CEN.PK2-1D菌株并始终保留以维持CRISPR-Cas9系统功能,随后通过不断更换不同的gRNA表达质粒和带70 bp同源臂的重组片段,在该菌株中实现多步基因组编辑。本研究使用的质粒及其PAM序列完整清单见表S1和S2,基因扩增所用全部PCR引物列于表S3。
【数据】靶向序列:20 bp;同源臂:70 bp;质粒骨架:pRS414(CEN6/ARS4);质粒:Cas9-NAT;系统:CRISPR-Cas9双质粒;原文未详述其他参数
2.3 摇瓶培养
工程酵母菌株经过夜培养活化。随后,将1%(v/v)种子液接种到100 mL YPD培养基中,并补加10 mL正十二烷用于产物原位萃取。发酵在30 °C、200 rpm下进行72 h。发酵结束后,收集上层正十二烷有机相,13000×g离心20 min,过滤后转入棕色色谱瓶用于后续GC-MS分析。
【数据】接种量:1%(v/v);培养基体积:100 mL;萃取剂:正十二烷10 mL;温度:30 °C;转速:200 rpm;时间:72 h;离心:13000×g、20 min
2.4 GC与GC-MS检测β-法尼烯
收集两相培养的十二烷相,12000 rpm离心10 min去除细胞碎片,随后进行气相色谱-质谱(GC-MS)分析。GC-MS分析在Double-Focusing Mass Spectrometer GC Mate II(JEOL,东京,日本)上进行。β-法尼烯产量用配备火焰离子化检测器(FID)的Agilent Technologies 7890B气相色谱仪定量,以反式-β-法尼烯(Sigma-Aldrich,美国)为标准品构建β-法尼烯产量标准曲线。样品以1:10分流比进样。1 μL样品中的各分析物在19091J HP-5色谱柱(长30 m;内径0.32 mm;膜厚250 nm)上分离。柱温初始80 ℃保持1 min,以10 ℃/min升至250 ℃并保持1 min。载气为氮气,入口压力39 psi。检测器温度维持260 ℃。
【数据】离心:12000 rpm、10 min;进样量:1 μL;分流比:1:10;柱温:80 ℃ 1 min→10 ℃/min→250 ℃ 1 min;载气:氮气;入口压力:39 psi;检测器温度:260 ℃;色谱柱:HP-5(30 m×0.32 mm×250 nm)
2.5 乙酰辅酶A检测
胞质乙酰辅酶A的检测按已有报道并作适当修改进行。酵母细胞以8000 rpm/min收集,液氮冷冻3 min。用1 mL 6%高氯酸重悬菌体沉淀,加入300 μL 0.3 mol/L K2CO3进行盐析沉淀。随后12000 r/min离心10 min收集上清,经0.45 μm膜过滤后进行HPLC分析。乙酰辅酶A浓度用ThermoFisher Ultimate 3000 HPLC配C18柱(250 mm × 4.6 mm,5 μm)测定。流动相由溶剂A(0.25 M磷酸钠,pH=5.0)和溶剂B(0.25 M磷酸钠,20%乙腈,pH=5.0)组成。梯度洗脱程序如下:0 min,3% B;0至5 min,B由3%线性升至18%;5至7.5 min,由18%升至28%;7.5至12.5 min,由28%升至40%;12.5至18 min,由40%升至42%;18至25 min,由42%降至3%。流速1 mL/min,温度25 °C。乙酰辅酶A量用紫外检测器于254 nm波长检测。
【数据】细胞收集:8000 rpm/min;冷冻:液氮3 min;重悬:1 mL 6%高氯酸;盐析:300 μL 0.3 mol/L K2CO3;离心:12000 r/min、10 min;滤膜:0.45 μm;色谱柱:C18(250 mm×4.6 mm,5 μm);流动相A:0.25 M磷酸钠pH 5.0;流动相B:0.25 M磷酸钠+20%乙腈pH 5.0;流速:1 mL/min;温度:25 °C;检测波长:254 nm
2.6 花生壳、玉米芯和构树的预处理与酶解
生物质预处理与酶解过程按已有报道并作修改进行。花生壳、玉米芯和构树先粉碎至40–60目并40 °C干燥。随后,构树粉末用H3PO4/H2O2(2:8,v/v)预处理,在沸水浴中煮沸1 h,固含量20%。之后,构树浆液用玻璃微纤维滤纸(GF/A,孔径1.6 μm,Whatman)过滤,用去离子水洗涤至中性pH。接着,残渣用0.05 M柠檬酸/柠檬酸钠缓冲液(pH 4.8)以1:35(g/mL)比例重悬。构树酶解使用Cellic® CTec2(诺维信)在50 °C下进行48 h。最后,酶解液经过滤。
【数据】粒径:40–60目;干燥:40 °C;预处理试剂:H3PO4/H2O2(2:8,v/v);煮沸:1 h;固含量:20%;滤膜:GF/A孔径1.6 μm;缓冲液:0.05 M柠檬酸/柠檬酸钠pH 4.8;固液比:1:35(g/mL);酶:Cellic® CTec2;温度:50 °C;时间:48 h
研究结果
3.1 β-法尼烯合酶的评价
β-法尼烯合酶(β-FS)催化来自MVA或MEP途径的法尼基焦磷酸(FPP)转化为β-法尼烯。尽管β-法尼烯前体FPP可由酿酒酵母天然MVA途径产生,但由于缺乏β-FS,无法生产β-法尼烯。由于β-法尼烯生物合成过程的最后一步催化反应涉及β-FS,工程酿酒酵母菌株的β-法尼烯产量水平可间接反映外源β-FS的催化活性。来自黄花蒿(Artemisia annua)的β-法尼烯合酶(AaFS)可催化FPP转化生成唯一产物β-法尼烯,且以葡萄糖为碳源时也能产生可检测的β-法尼烯。同时,源自香橙(Citrus junos)的CjFS与AaFS具有高序列同源性和保守催化机制,适合进行平行比较研究和定向酶工程。本工作中,将分别来自黄花蒿(AaFS)和香橙(CjFS)的两种外源β-FS整合进酿酒酵母以重构β-法尼烯生物合成途径。两种β-FS的编码序列依据酿酒酵母偏好密码子进行优化,以避免在工程菌中低表达。气相色谱(GC)结果显示,整合AaFS的工程酿酒酵母菌株(FARYW01-1)在YPD培养基中培养72 h后产生4.10 ± 0.12 mg/L β-法尼烯,是携带CjFS菌株(FARYW01-2,2.01 ± 0.06 mg/L)的2.04倍(图2)。同时,天然酿酒酵母菌株CEN.PK2-1D不产β-法尼烯。然而,三株菌的细胞生长无显著差异。结果表明,整合外源β-FS可在不影响该物种细胞生长的情况下在酿酒酵母中实现β-法尼烯生物合成。此外,来自黄花蒿的β-FS在产β-法尼烯方面比来自香橙的更有效。由此,利用内源MVA途径和外源黄花蒿β-FS的酿酒酵母基础β-法尼烯生物合成途径成功构建。产生的β-法尼烯用GC检测并经GC-MS表征(图S1、S2)。尽管从不同天然来源筛选β-法尼烯合酶(β-FS)可提供候选酶,但萜类合酶具有显著的功能可塑性,仅凭序列相似性不一定能预测催化活性或产物特异性。近期研究因此强调结构引导和机器学习辅助的蛋白质工程在改善萜类合酶功能方面的潜力。在此背景下,通过数据驱动的蛋白质工程进一步优化表征充分的β-FS支架,可能成为扩展天然β-FS筛选的互补策略。总体而言,现有研究表明改善β-FS性能是进一步提高β-法尼烯产量的重要方向。未来工作可聚焦于利用结构和数据驱动方法对表征充分的β-FS进行靶向工程,而非仅依赖筛选更多天然β-FS。将此类酶水平优化与代谢途径工程相结合,可能为进一步提高工程酵母中β-法尼烯产量提供有效策略。
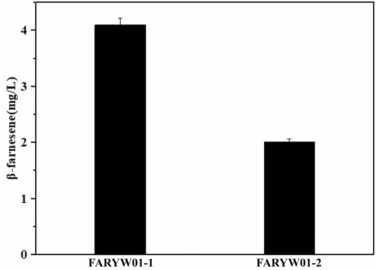
【数据】菌株:FARYW01-1(AaFS)、FARYW01-2(CjFS)、CEN.PK2-1D(对照);产量:AaFS 4.10 ± 0.12 mg/L、CjFS 2.01 ± 0.06 mg/L、天然菌株0;倍数:2.04倍;培养时间:72 h;培养基:YPD;密码子:按酿酒酵母偏好优化
3.2 强化乙酰辅酶A供应
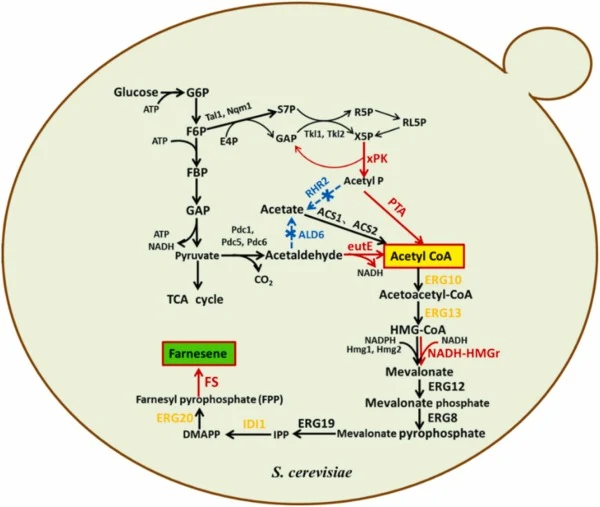
乙酰辅酶A是生物体中重要的中间代谢物,也是利用MVA途径生产异戊二烯类化合物及β-法尼烯的必需前体。乙酰辅酶A可在糖、脂肪酸和氨基酸的分解代谢过程中产生。为实现乙酰辅酶A衍生化合物的高效生产,设计了多种强化乙酰辅酶A供应的途径。通过依次引入乙醇脱氢酶(ADH2)、乙醛脱氢酶(ALD6)和外源乙酰辅酶A合成酶(ACS),分别从乙醇、乙醛和乙酸增强乙酰辅酶A生成,从而提高目标产物形成。内源ACS1和ACS2受葡萄糖和细胞生长调控,表明这些酶调控的复杂性。因此,新的旁路途径可能更具吸引力。Papini等利用磷酸酮醇酶途径(PHK)作为糖酵解(EMP)途径的替代,通过采用磷酸酮醇酶和乙酸激酶实现乙酰辅酶A供应的增加。此外,异源乙酰化乙醛脱氢酶(eutE)已被引入酿酒酵母以从乙醛增强胞质乙酰辅酶A。在酿酒酵母中,甘油-3-磷酸磷酸酶(RHR)和醛脱氢酶(ALD)可与乙酰辅酶A供应竞争,不利于β-法尼烯合成。因此,本工作将木酮糖-5-磷酸特异性磷酸酮醇酶(PK)/磷酸转乙酰酶(PTA)和EutE引入酿酒酵母,分别通过乙酰磷酸(AcP)和乙醛两条不同途径整合,以增强乙酰辅酶A供应(图1)。三个外源基因PK(肠膜明串珠菌)、PTA(克氏梭菌)和eutE(玉米狄克氏菌)的开放阅读框序列依据酿酒酵母偏好密码子优化,分别克隆到RHR2、Bdh1和ALD6位点的基因组中。由此连续构建了菌株FARYW02、FARYW03和FARYW06(表1)。由图3可见,由FARYW01衍生的菌株FARYW03在引入PK和PTA后产生4.00 ± 0.11 mg/L β-法尼烯,与FARYW01几乎相同。尽管发现构建PK-PTA分支途径后乙酰辅酶A含量增加11.68%,但对β-法尼烯产量的影响较低。这些结果表明,下游MVA途径或β-FS催化可能是限速步骤。此外,构建了含两个β-FS拷贝的菌株FARYW08,以提高β-FS催化效率。正如预期,FARYW08的β-法尼烯产量达到8.46 ± 0.20 mg/L,约为仅含一个β-FS拷贝的菌株FARYW01-1的2倍。同时,胞质乙酰辅酶A相应下降,表明乙酰辅酶A通量进入β-法尼烯生物合成途径。此外,构建了含两个β-FS拷贝和PK-PTA分支途径的菌株FARYW05,其β-法尼烯产量提高到含一个β-FS拷贝和PK-PTA分支途径的菌株FARYW03的2.5倍。有趣的是,FARYW05菌株的β-法尼烯产量比含两个β-FS拷贝的FARYW08菌株高19.1%。进一步地,由FARYW05整合另一条乙酰辅酶A供应途径——敲入eutE基因——得到菌株FARYW06,其β-法尼烯产量比FARYW05提高约19.0%,且乙酰辅酶A含量未降低。这些结果表明,整合外源EutE促进了乙酰辅酶A供应,进而流入β-法尼烯生物合成途径,导致β-法尼烯产量提高。可以推断,敲除RHR2、ALD6以及通过过表达PK-PTA和eutE增强乙酰辅酶A供应产生了正向协同,使更多碳通量流向乙酰辅酶A。总之,通过引入PK-PTA和EutE并强化下游MVA基因表达所重构的乙酰辅酶A生物合成途径,显著提高了β-法尼烯产量。
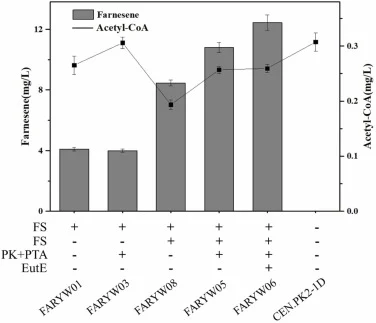
【数据】菌株:FARYW03(PK-PTA)4.00 ± 0.11 mg/L;FARYW08(双β-FS拷贝)8.46 ± 0.20 mg/L(约2倍于FARYW01-1);FARYW05(双β-FS+PK-PTA)为FARYW03的2.5倍、比FARYW08高19.1%;FARYW06(+eutE)比FARYW05高19.0%;乙酰辅酶A:PK-PTA构建后增加11.68%;基因:PK(Leuconostoc mesenteroides)、PTA(Clostridium kluyveri)、eutE(Dickeya zeae);整合位点:RHR2、Bdh1、ALD6
3.3 MVA途径的改进对β-法尼烯产量的提升
(原文节选至此,后续结果内容未提供,故不展开。)
【数据】原文未详述
3.4 YPD培养基组分优化下的β-法尼烯生产
(原文节选至此,后续结果内容未提供,故不展开。)
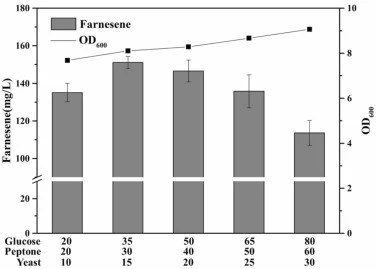
【数据】原文未详述
3.5 不同无机盐供应下YPD培养基的β-法尼烯生产
(原文节选至此,后续结果内容未提供,故不展开。)
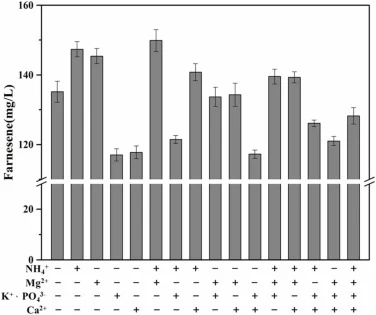
【数据】原文未详述
3.6 利用构树来源糖生产β-法尼烯
(原文节选至此,后续结果内容未提供,故不展开。)
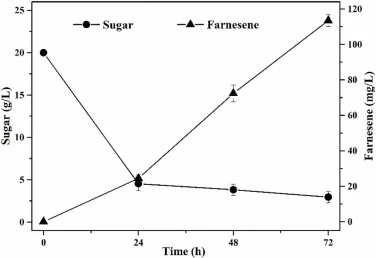
【数据】原文未详述
3.7 利用预处理农业生物质来源糖生产β-法尼烯
(原文节选至此,后续结果内容未提供,故不展开。)
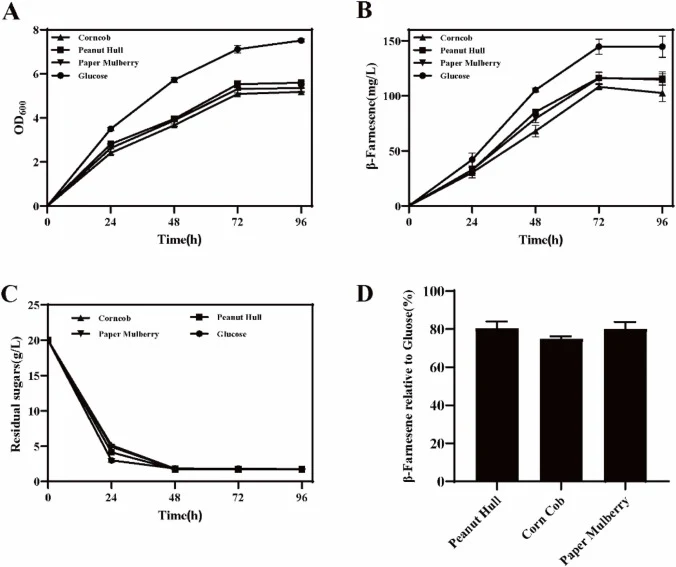
【数据】原文未详述
讨论与解读
本研究建立了以农业生物质来源糖生产β-法尼烯的工程酿酒酵母平台。构树、玉米芯和花生壳水解液支持的β-法尼烯产量约为葡萄糖对照的74–80%,证明了生物质到β-法尼烯策略的可行性与原料适用性。通过整合生物质预处理、酶解与代谢工程,本研究为将多种农业生物质残渣转化为高附加值β-法尼烯提供了潜在路线。进一步优化水解液组成、抑制剂去除和非葡萄糖糖利用,可能提升该平台的效率与可扩展性。原文同时指出,萜类合酶功能可塑性强,仅凭序列相似性难以预测催化活性,未来可将结构引导与数据驱动的β-FS靶向工程与途径工程结合。
编译者解读:该工作的方法学价值在于把"酶筛选—前体供应—途径通量—培养基—原料"串成一条可复现的链路:先用双β-FS拷贝解除催化瓶颈,再用PK-PTA与EutE双旁路补乙酰辅酶A,最后以真实生物质水解液验证。局限也明显——产量仍处mg/L级,水解液仅达葡萄糖对照的七至八成,非葡萄糖糖利用与抑制剂耐受尚未解决。对合成生物学而言,这是一个典型的"途径重构+原料拓展"范式,但离工业滴度仍有数量级差距。
参考来源
期刊:Biochemical Engineering Journal, 2026
DOI: 10.1016/j.bej.2026.110458
DOI: 10.1016/j.bej.2026.110458