来源:An efficient ester-type catechin-degrading tannase from a screened Aspergillus aculeatus: Heterologous expression, characterization, and application in tea beverages(Food Chemistry)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
酯型儿茶素是茶饮料苦涩味与沉淀的主要来源,但能高效水解它们的高活性单宁酶仍然稀缺。研究者从发酵酸茶中分离出一株产单宁酶的泡盛曲霉(Aspergillus aculeatus)LS06,将其单宁酶基因经密码子优化后在毕赤酵母KM71中异源表达,获得重组酶TanBT(63.4 kDa,最适30 °C、pH 5.0),对四种酯型儿茶素的水解活性突出——对EGCG的活性是没食子酸甲酯的5.44倍。在茶汤中,TanBT对酯型儿茶素的水解效率比商品单宁酶CE高1.44倍,并显著提升抗氧化能力与感官评分。分子对接显示TanBT对EGCG、ECG、GCG的结合强于CE。
研究背景
茶与可可、咖啡并称世界三大无酒精饮料。茶起源于中国,因其独特风味及抗氧化、抗癌、神经保护等多种健康功效而风靡全球,茶产业已成为重要的全球性农业产业。其中,即饮茶饮料凭借便捷性、风味多样性和营养价值,市场规模持续扩张,成为茶产业现代化与国际化的重要驱动力。
茶多酚是茶叶重要的次生代谢产物,既影响茶的色、香、味,也是其健康功能的物质基础。儿茶素是茶多酚的主体成分,在风味调控与健康功效中起关键作用,主要包括EGCG、ECG、GCG、CG等酯型儿茶素,以及EC、C、EGC、GC等非酯型儿茶素。酯型儿茶素是茶饮料苦涩味和沉淀问题的直接来源,而能够高效水解这类底物的单宁酶仍十分稀缺。本研究即从发酵酸茶中筛选高产单宁酶菌株,通过密码子优化与毕赤酵母异源表达获得重组酶TanBT,系统表征其酶学性质,并评价其在茶汤与茶浓缩液中的儿茶素转化效果与应用潜力。
研究方法
2.1 试剂与材料
发酵酸茶(云南德凤茶业有限公司,中国);酵母表达载体pPIC9K(生工生物工程(上海)股份有限公司,中国);毕赤酵母KM71感受态细胞(北京酷来搏科技有限公司,中国);ClonExpress II一步克隆试剂盒(南京诺唯赞生物科技股份有限公司,中国);限制性内切酶(TaKaRa,日本);单宁酸(上海麦克林生化科技有限公司,中国);罗丹宁(北京伊诺凯科技有限公司,中国);凤凰单丛(浙江大学生物技术食品科技有限公司,中国);铁观音(禅心源(福建)茶业有限公司,中国);EGCG、EGC、ECG(上海阿拉丁生化科技股份有限公司,中国);GCG(上海笛柏生物科技有限公司,中国);CG(成都阿尔法生物科技有限公司,中国);EC、C(上海麦克林生化科技有限公司,中国);GC(四川维克奇生物科技有限公司,中国);没食子酸(上海源叶生物科技有限公司,中国);商品单宁酶(北京卫诺恩生物技术有限公司,中国)。厂家标示酶活≥500 U/g。按厂家定义,一个酶活单位(U)为pH 5.5、30 °C条件下每分钟分解1 μmol单宁酸所需的酶量。CE的实际酶活采用与TanBT相同的测定方法确定,所有对比实验均按等酶活基准加酶。所有酶解实验中,两组反应体系、底物浓度、温度与pH严格保持一致。商品单宁酶制剂未经进一步纯化直接使用。厂家未提供产品详细信息,也未提供稳定剂或载体蛋白信息。
【数据】酶活标示:≥500 U/g;酶活定义条件:pH 5.5、30 °C;底物:单宁酸1 μmol/min;原文未详述CE纯度与辅料信息
2.2 培养基
单宁筛选培养基(g/L):单宁酸10、琼脂30、NaNO3 3、KH2PO4 1、MgSO4·7H2O 0.05、KCl 0.5、FeSO4·7H2O 0.01、溴甲酚蓝0.04;pH 5.0。固体发酵培养:麸皮与盐溶液(单宁酸30、NaNO3 3、KH2PO4 1、MgSO4·7H2O 0.05、KCl 0.5、FeSO4·7H2O 0.01,g/L;pH 5.0)按质量比1:1混合。MD固体培养基(g/L):葡萄糖20、酵母氮源(YNB)13.4、生物素4×10⁻⁴、琼脂18。BMMY培养基(g/L):蛋白胨20、酵母提取物10、YNB 13.4、生物素4×10⁻⁴、甲醇15;灭菌冷却后加入100 mL磷酸钾缓冲液(pH 6.0,1 mol/L)。BMGY培养基(g/L):蛋白胨20、酵母提取物10、YNB 13.4、生物素4×10⁻⁴、甘油10;灭菌冷却后加入100 mL磷酸钾缓冲液(pH 6.0,1 mol/L)。
【数据】筛选培养基pH:5.0;单宁酸:10 g/L(筛选)/30 g/L(固体发酵盐溶液);溴甲酚蓝:0.04 g/L;麸皮:盐溶液:1:1(w/w);BMMY甲醇:15 g/L;磷酸钾缓冲液:100 mL,pH 6.0,1 mol/L
2.3 产单宁酶真菌的分离与筛选
取10 g发酵酸茶样品置于250 mL锥形瓶中,加入90 mL无菌生理盐水(0.9% NaCl)。锥形瓶于30 °C摇床中100 rpm振荡培养30 min。取上清液进行梯度稀释,稀释液涂布于PDA平板。待单菌落形成后,转接至含单宁的筛选培养基进行二次筛选。培养3 d后观察水解圈。测量水解圈直径(D)与菌落直径(d),以D/d比值进行初筛。进一步筛选产酶能力较高的菌株。所得菌株保存于含0.01%(w/v)单宁酸的PDA斜面上,4 °C保藏。
【数据】样品:发酵酸茶10 g;生理盐水:90 mL,0.9% NaCl;振荡:30 °C、30 min、100 rpm;培养:3 d;保存:0.01%(w/v)单宁酸PDA斜面、4 °C
2.4 真菌菌株的固体发酵与单宁酶活测定
用生理盐水冲洗PDA斜面培养物,将孢子悬液适当稀释至约1×10⁸孢子/mL。按20%(v/w)接种量将孢子悬液接入固体发酵培养基,30 °C培养3 d。向培养基中加入500%(v/w)柠檬酸缓冲液(20 mmol/L,pH 5.0),30 °C、200 rpm振荡1 h。真空过滤除去固体残渣,收集滤液作为粗酶液。参照Sharma等(2000)的方法,制备没食子酸标准曲线测定单宁酶活。一个单宁酶活单位定义为30 °C条件下每分钟水解没食子酸甲酯(MG)产生1 μmol没食子酸所需的酶量。通过监测吸光度变化测定酶活,以U/mL表示。
【数据】孢子悬液:约1×10⁸孢子/mL;接种量:20%(v/w);培养:30 °C、3 d;缓冲液:柠檬酸20 mmol/L、pH 5.0、500%(v/w);振荡:30 °C、200 rpm、1 h;酶活定义:30 °C、1 μmol没食子酸/min
2.5 蛋白浓度测定
采用Bradford蛋白测定试剂盒(上海碧云天生物技术有限公司,中国)测定蛋白浓度。简要流程:96孔板中5 μL样品与250 μL G250染液混合,室温孵育10 min,于595 nm测定吸光度。根据吸光度与标准蛋白浓度的线性关系计算蛋白浓度。
【数据】样品:5 μL;G250染液:250 μL;孵育:室温、10 min;检测波长:595 nm
2.6 产单宁酶菌株的鉴定
基于形态与显微特征,对纯化菌株的菌丝与孢子形态进行初步观察。分子鉴定由公司(上海派森诺生物科技有限公司,中国)完成,通过测序真菌内部转录间隔区(ITS)实现。所得序列与NCBI数据库(http://www.ncbi.nlm.nih.gov/blast/)比对,确定真菌菌株的种属。
【数据】鉴定方法:ITS测序;数据库:NCBI BLAST;原文未详述测序引物与反应参数
2.7 单宁酶基因克隆与密码子优化
由于NCBI数据库目前仅含泡盛曲霉基因组序列,将真菌单宁酶保守序列与泡盛曲霉基因组比对,获得候选核苷酸序列(GenBank登录号XM_020196757.1)。基于该序列设计正向引物5’-GCTGAAGCTTACGTAGAATTCggcaagtattcccgtgcagc-3′(EcoR I)与反向引物5’-AAGGCGAATTAATTCGCGGCCGCtcagtagacaggaagcttgaaagcag-3′(Not I)。用柱式真菌总RNA纯化试剂盒(生工生物工程(上海)股份有限公司,中国)按厂家说明提取真菌样品总RNA。用HiScript II第一链cDNA合成试剂盒(+gDNA wiper)(南京诺唯赞生物科技股份有限公司,中国)合成cDNA。以第一链cDNA为模板,用设计引物进行PCR扩增。PCR产物纯化后连接至表达质粒pPIC9K,构建重组质粒pPIC9K-TanBT。重组质粒转化大肠杆菌DH5α,涂布含氨苄青霉素的LB琼脂平板,37 °C过夜培养。挑取阳性单菌落培养扩增质粒。质粒送公司(杭州有康生物科技有限公司,中国)测序。野生型泡盛曲霉单宁酶基因由公司(上海捷瑞生物工程有限公司,中国)进行毕赤酵母表达用密码子优化。优化序列设计时避开EcoR I与Not I酶切位点,并在5′与3′端分别引入EcoR I与Not I位点。优化序列由公司(上海捷瑞生物工程有限公司,中国)合成并构建为重组质粒pPIC9K-HcTanBT。
【数据】候选基因登录号:XM_020196757.1;限制酶:EcoR I、Not I;大肠杆菌培养:37 °C、过夜;抗性:氨苄青霉素;原文未详述PCR循环参数
2.8 毕赤酵母异源表达
按KM71感受态细胞说明书进行转化。将线性化重组质粒pPIC9K-TanBT与pPIC9K-HcTanBT转化KM71细胞,涂布MD琼脂平板。挑取30–50个较大单菌落,划线至含三个梯度浓度(0.05%、0.1%、0.2%)G418的平板。从最高浓度平板挑取5–10个较大菌落,YPD液体培养基过夜培养保存。
【数据】菌株:P. pastoris KM71;G418梯度:0.05%、0.1%、0.2%;挑取菌落:30–50个(初筛)、5–10个(高浓度板);培养基:MD琼脂、YPD液体;原文未详述过夜培养温度与转速
研究结果
3.1 产单宁酶真菌的筛选与鉴定
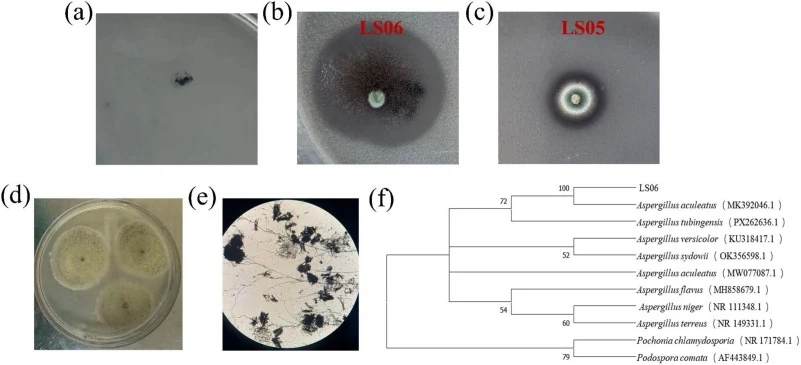
从发酵酸茶中共分离获得62株真菌。经单宁筛选培养基初筛发现,部分菌株不产生变色圈,说明其不能降解单宁酸(图1a)。最终筛选出两株具产单宁酶能力的菌株,命名为LS05与LS06(图1b、c)。进一步比较产酶能力,LS06最高酶活为0.33 ± 0.04 U/mL,是LS05的1.22倍。因此选择LS06作为后续研究对象。如图1d所示,LS06在PDA培养基上形成深灰褐色、近圆形、丝绒状菌落,背面呈浅绿色。成熟后菌落直径约30 ± 1.6 mm。显微观察(图1e)显示,该菌具细长有隔菌丝,分生孢子梗顶端着生球形孢子头。分生孢子黑色、形状不规则、表面粗糙,边缘呈放射状排列。孢子多圆形、光滑,呈散生或小簇分布。如图1f所示,扩增并测序LS06的ITS基因,获得551 bp的ITS区序列。ITS序列系统发育分析显示,该菌株与泡盛曲霉聚于同一进化分支,相似性100%。综合菌落形态、显微结构特征与ITS序列分析,菌株LS06鉴定为泡盛曲霉,命名为A. aculeatus LS06。综上,该菌株被选为有潜力的单宁酶产生菌,用于后续表征与应用研究。
【数据】分离菌株:62株;产酶菌株:LS05、LS06;LS06最高酶活:0.33 ± 0.04 U/mL;较LS05高:1.22倍;菌落直径:30 ± 1.6 mm;ITS长度:551 bp;相似性:100%
3.2 TanBT基因的克隆、密码子优化与异源表达
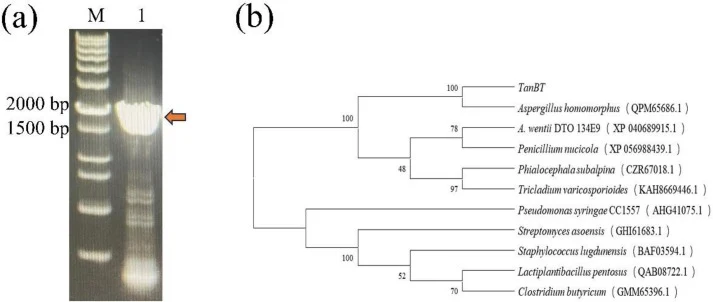
泡盛曲霉基因组中此前未注释到单宁酶编码基因。因此利用已报道真菌单宁酶的氨基酸序列对其基因组序列进行同源分析,鉴定出与已知单宁酶高度相似的候选基因序列,GenBank登录号为XM_020196757.1。以该序列为参考进行PCR扩增。琼脂糖凝胶电泳(1%,w/v)显示约1700 bp处有明显条带(图2a),与目标片段预期大小相符。扩增产物经测序与BLAST分析,结果表明野生型单宁酶基因全长1755 bp,与参考序列(XM_020196757.1)相比存在37个碱基差异,编码585个氨基酸残基,含两个内含子。该基因命名为TanBT。进一步生物信息学分析显示,TanBT不含信号肽,理论等电点(pI)为4.62,成熟蛋白预测分子量为63.4 kDa。保守结构域分析(NCBI)显示,TanBT第75–569位氨基酸构成典型的α/β-水解酶超家族结构域,该结构域见于蛋白酶、脂肪酶、过氧化物酶、酯酶和环氧化物水解酶等多种酶中。序列分析结果进一步表明,TanBT兼具单宁酶与阿魏酸酯酶特征,催化活性中心通常由Ser、Glu/Asp和His三联体构成。为进一步对TanBT分类,将其氨基酸序列与其他已报道单宁酶比对构建系统发育树。图2b显示,TanBT属真菌单宁酶,与A. homomorphus聚为一支。
将野生型单宁酶基因TanBT克隆至pPIC9K载体,转化毕赤酵母KM71,甲醇诱导表达。pPIC9K为胞外分泌表达载体。发酵后测定上清酶活,结果显示酶活达2.05 ± 0.18 U/mL,表明野生型TanBT在毕赤酵母中成功重组表达。在毕赤酵母异源蛋白表达中,密码子偏好性对表达效率有关键影响。异源基因中高频出现毕赤酵母非偏好密码子会降低翻译效率,从而减少蛋白合成并显著影响最终表达量。为提升TanBT基因在毕赤酵母中的表达,依据宿主密码子偏好性进行密码子优化,在不改变编码氨基酸序列的前提下替换所有非偏好密码子。如图S1与S2所示,优化序列与原序列一致性为80.91%,GC含量由62%降至46%,密码子适应指数(CAI)由0.59升至0.91,接近最大值1.0。甲醇诱导72 h后酶活达2.46 ± 0.12 U/mL。与泡盛曲霉原生单宁酶相比,密码子优化后TanBT酶活提高7.46倍。这一显著提升可能因为微生物通常仅在需要时才表达单宁酶,导致微生物产单宁酶天然活性较低。与优化前表达相比,酶活提高1.2倍。这很可能归因于原异源基因序列中高频出现毕赤酵母非偏好密码子,其翻译可能被降低或中止,从而导致重组蛋白表达水平过低。Zhang, Wei等(2025)与Zhang, Xu等(2025)对茶树多酚氧化酶基因进行密码子优化,酶活提高42.89倍。Hu等(2013)通过区域密码子优化改造LIP1基因5′端片段,结果显示优化后表达水平(152 mg/L)为原始的4.6倍,显著提升了在毕赤酵母中的表达水平。尽管TanBT在毕赤酵母KM71中经密码子优化后表达水平有所提高,但提升幅度相对有限,提示密码子偏好性并非决定毕赤酵母表达系统蛋白产量的唯一因素。除密码子优化外,还有其他提高表达效率的策略。Karaoğlan与Erden-Karaoğlan(2020)比较了甲醇诱导型AOX1启动子与乙醇诱导型ADH2启动子的表达效率,发现密码子优化基因与ADH2启动子组合获得最高果胶酶表达水平。Batra等(2014)采用统计学实验方法优化毕赤酵母发酵培养基,确定最优组成,结果显示优化后木聚糖酶活达3051 mU/mL,为初始培养基的3倍。后续还应开展启动子选择、分泌信号肽优化及发酵条件改进等研究。
【数据】PCR产物:约1700 bp;基因全长:1755 bp;与参考序列碱基差异:37个;编码:585个氨基酸;内含子:2个;pI:4.62;分子量:63.4 kDa;结构域:75–569位氨基酸;野生型酶活:2.05 ± 0.18 U/mL;优化序列一致性:80.91%;GC含量:62%→46%;CAI:0.59→0.91;诱导时间:72 h;优化后酶活:2.46 ± 0.12 U/mL;较原生酶提高:7.46倍;较优化前提高:1.2倍
3.3 重组TanBT的纯化与SDS-PAGE分析
如图S3与表1所示,TanBT经硫酸铵沉淀、超滤、DEAE离子交换层析及Superdex 200 Increase 10/300 GL尺寸排阻色谱柱终步纯化,获得电泳纯酶。最终回收率为7.95%,比活为167.67 U/mg。SDS-PAGE分析表明TanBT分子量约63.4 kDa。据报道,真菌单宁酶分子量通常较大,范围为45–310 kDa,由单亚基或多亚基组成。Pan等(2020)异源……(原文此处节选结束)
【数据】纯化步骤:硫酸铵沉淀、超滤、DEAE离子交换层析、Superdex 200 Increase 10/300 GL尺寸排阻色谱;回收率:7.95%;比活:167.67 U/mg;分子量:约63.4 kDa;真菌单宁酶分子量范围:45–310 kDa
讨论与解读
本研究从发酵酸茶中筛选到一株高效降解酯型儿茶素的泡盛曲霉菌株LS06,鉴定出1755 bp的单宁酶基因TanBT,经密码子优化后在毕赤酵母中成功重组表达。重组酶TanBT分子量约63.4 kDa,比活167.67 U/mg,最适反应温度30 °C、最适pH 5.0。TanBT对四种酯型儿茶素均表现出高水解活性,其中对EGCG的活性为MG的5.44倍。应用研究表明,TanBT显著改变茶汤中儿茶素组成:酶处理后酯型儿茶素含量明显下降,相应非酯型儿茶素与GA水平显著上升。TanBT对酯型儿茶素的水解效率为83.52%,是CE的1.35倍;对EGCG的水解效率达86.48%,为CE的1.41倍,表明其能高效水解茶汤中的酯型儿茶素。同时,与CK相比,TanBT使茶汤与茶浓缩液的抗氧化能力分别提升1.21倍与1.39倍,并提高了整体感官评分。分子对接分析提示,TanBT对EGCG、ECG和……(原文此处节选结束)的结合亲和力可能强于CE。
编译者解读:该研究走的是"极端生境筛菌—基因组挖掘—密码子优化—毕赤酵母分泌表达"的经典合成生物学路线,选材(发酵酸茶)与宿主(KM71)匹配度高,30 °C、pH 5.0的最适条件恰好贴近茶饮料实际加工环境,具备直接落地优势。值得注意的是,密码子优化仅带来1.2倍提升,说明表达瓶颈在分泌与折叠环节,而非密码子本身——这为后续启动子/信号肽工程留下了明确改造空间。局限在于纯化回收率仅7.95%,且分子对接结论尚缺定点突变验证;若要工业化,需在表达量提升与低成本制剂化上继续攻关。
参考来源
期刊:Food Chemistry, 2026
DOI: 10.1016/j.foodchem.2026.151758
DOI: 10.1016/j.foodchem.2026.151758