来源:Dynamic Populations Control of Escherichia coli and Saccharomyces cerevisiae Consortia Improves Chemical Production(Metabolic Engineering)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
合成微生物菌群通过分工协作分担代谢负担,却常因种间生长速率差异而失衡。本研究系统刻画了大肠杆菌与酿酒酵母共培养中的种群漂移规律,并构建水杨酸介导的跨界信号回路,通过程序化裂解大肠杆菌将酵母占比从7%提升至89%和44.5%,咖啡酸产量相应提高115%和73%。这套自主种群调控平台为跨物种菌群的稳定运行提供了可复用的工程方案。
研究背景
大肠杆菌与酿酒酵母是最常用的两类微生物细胞工厂。单一宿主重构多步复杂途径常带来代谢负担,而异源酶对生理环境的需求差异往往超出单一宿主的承载能力,将途径拆分到多个菌株中成为合理选择。大肠杆菌生长快、异源蛋白表达能力强,但缺乏真核翻译后修饰能力,尤其难以支撑细胞色素P450的功能表达;酿酒酵母具备内质网膜环境,适合P450表达,却对原核蛋白表达不佳。紫杉醇合成即是典型例子:大肠杆菌可产出超过1 g/L的紫杉二烯,但后续P450羟化步骤难以在其体内完成。分工协作因此成为兼顾两侧优势的策略,而菌群种群比例的稳定维持,是这一策略能否落地的关键前提。已有关于大肠杆菌-酿酒酵母共培养生长行为的报道结论并不一致,本文首先建立可控共培养体系厘清生长规律,再以水杨酸信号构建跨界裂解回路,实现大肠杆菌密度的自主下调与酵母占比的提升,并在咖啡酸分工合成体系中验证其效果。
研究方法
3.1 菌株与培养条件
本研究所用菌株汇总于补充表S1。大肠杆菌DH5α(北京全式金生物技术有限公司,中国)与BL21 (DE3)用于质粒构建与扩增。酿酒酵母CEN.PK102-5B用于构建。Luria–Bertani(LB)培养基(10 g/L NaCl、10 g/L胰蛋白胨、5 g/L酵母提取物)与M9基本培养基(Sigma-Aldrich,M6030)用于大肠杆菌培养,条件为37°C、200 rpm。YPD培养基(1%酵母提取物、2%蛋白胨、2%葡萄糖)与合成完全(SC)缺陷培养基(含0.5%硫酸铵、0.17%酵母氮源碱(BBI生命科学公司,中国)、完全补充混合物(缺尿嘧啶、组氨酸或亮氨酸)(Sunrise Science Products,美国)及2%葡萄糖)用于酵母培养,条件为30°C、200 rpm。LB-YPD:LB与YP按1:1比例混合,葡萄糖补加至终浓度2%。M9-SC:M9与SC按1:1比例混合,葡萄糖补加至终浓度2%或4%。共培养实验中,菌株在LB-YPD或M9-SC混合培养基中培养。酿酒酵母培养时,菌株接种至40 mL培养基(初始OD600 = 0.2),培养72 h。大肠杆菌培养时,待OD600达到约0.6–0.8,加入0.2 mM IPTG。大肠杆菌-酿酒酵母共培养时,两株菌共接种至40 mL LB-YPD或M9-SC培养基,接种体积按设定的初始种群比例调整,同时保持总初始OD600为0.2。菌群在30°C、200 rpm下培养72 h。当混合体系总OD600达到0.6–0.8时,加入0.2 mM IPTG触发诱导。
【数据】培养基:LB(10 g/L NaCl、10 g/L胰蛋白胨、5 g/L酵母提取物)、M9、YPD(1%酵母提取物、2%蛋白胨、2%葡萄糖)、SC(0.5%硫酸铵、0.17%酵母氮源碱、2%葡萄糖)、LB-YPD(1:1)、M9-SC(1:1);温度:大肠杆菌37°C、酵母30°C、共培养30°C;转速:200 rpm;时间:72 h;初始OD600:0.2;诱导剂:0.2 mM IPTG;诱导时机:OD600 0.6–0.8;M9-SC葡萄糖终浓度:2%或4%
3.2 质粒与菌株构建
本研究构建的质粒列于补充表S2。所有质粒均采用Gibson组装法构建(ABclonal 2X MultiF Seamless Assembly Mix)。基因经密码子优化后由金斯瑞(南京,中国)合成。基因与蛋白序列列于补充表S3–4。报告质粒构建方面,mScarlet插入pET28a质粒、受T7启动子控制;GFP插入2μ质粒pIYC04、受PGK1启动子控制。构建Sal介导回路时,mScarlet受水杨酸诱导型启动子控制,构建pET28a-mScarlet。将来自恶臭假单胞菌的密码子优化NahR基因或其突变体、由Ptac驱动,插入pET28a-mScarlet,构建pET28a-mScarlet-NahR。为在大肠杆菌与酿酒酵母中生产Sal,将来自肠炎耶尔森菌的密码子优化irp9基因分别由Ptac-ΔlacO或TEF1启动子驱动,插入pCDFDuet-1与pIYC04质粒。构建大肠杆菌裂解系统时,将T4噬菌体来源的密码子优化裂解基因E与T、由Sal启动子驱动,插入pET28a-mScarlet-NahRQH,形成NahRQH-E-T。合成咖啡酸时,将不同来源的TAL构建入pETDuet-1质粒;来自铜绿假单胞菌的HpaB(PaHpaB)与来自肠道沙门氏菌的HpaC(SeHpaC)插入pPJFE3质粒,分别由P TEF1与P PGK1启动子驱动。表达mScarlet的大肠杆菌BL21 (DE3)与表达GFP的酿酒酵母CEN.PK102-5B用于生成共培养体系。大肠杆菌B5为此前由BL21 (DE3)构建的咖啡酸合成菌株:简言之,aroGfbr与tyrAfbr基因(受T7启动子控制)、tktA与ppsA基因(受trc启动子控制)以及aroGfbr-tyrAfbr基因(受T7启动子控制)分别整合至tyrR、pheA与tyrE位点。重组大肠杆菌采用标准化学转化法转化。携带相应质粒的酿酒酵母CEN.PK102-5B采用LiAc法转化。
【数据】质粒:pET28a、pIYC04、pCDFDuet-1、pETDuet-1、pPJFE3;启动子:T7、PGK1、Ptac、Ptac-ΔlacO、TEF1、trc、Sal启动子;整合位点:tyrR、pheA、tyrE;组装方法:Gibson组装(ABclonal 2X MultiF Seamless Assembly Mix);转化方法:大肠杆菌化学转化、酵母LiAc法;基因:mScarlet、GFP、NahR(Q168R、H57Q、V216A突变体)、irp9、裂解基因E与T、RgTAL、PaHpaB、SeHpaC、aroGfbr、tyrAfbr、tktA、ppsA;原文未详述:质粒拷贝数、抗生素浓度
3.3 共培养体系细胞密度与比生长速率定量
单培养与共培养中酿酒酵母和大肠杆菌的荧光强度由多功能微孔板检测仪(Synergy HT,Biotek,美国)测定。GFP与RFP分别于485–528 nm与549–610 nm检测。为确定共培养体系中酿酒酵母与大肠杆菌的最大比生长速率,采用荧光信号间接定量OD600。先以单培养数据确定荧光与OD600的关系,再通过GFP或RFP荧光计算共培养体系中的OD600,进而计算共培养中的比生长速率(μ)。此外,合成菌群中酿酒酵母的种群丰度以其估算OD600占共培养总OD600的比例计算。
【数据】检测仪器:Synergy HT多功能微孔板检测仪(Biotek,美国);检测波长:GFP 485–528 nm、RFP 549–610 nm;定量方式:荧光信号间接换算OD600;计算指标:比生长速率μ、酵母种群丰度(酵母估算OD600/总OD600);原文未详述:检测时间间隔、平行孔数
3.4 咖啡酸、对香豆酸与水杨酸定量
所有产物采用HPLC分析,色谱柱为Hypersil C18柱(4.6 × 250 mm,5 μm;依利特分析仪器有限公司)。测定水杨酸浓度时,取900 μl所得上清与100 μl含0.1% TFA的100% ACN混合。Sal于35°C柱温、300 nm紫外检测。流动相A为含0.1%三氟乙酸的水-乙腈(TFA-ACN)混合液(含0.1% TFA),85:15 v/v;B为含0.1% TFA的100% ACN,流速1.0 mL/min,紫外检测波长300 nm(Almpani et al., 2025)。梯度洗脱程序如下:0–5 min,B由0%线性升至60%;5–7 min,10% B;7–9 min,B由60%线性升至80%;9–14 min,80% B;14–15 min,B由80%降至0%;最后维持0% B至25 min运行结束。测定对香豆酸与咖啡酸时,取500 μl上清与500 μl甲醇混合。对香豆酸与咖啡酸于35°C柱温,分别于320 nm与308 nm紫外检测。流动相由0.1%(v/v)甲酸超纯水(溶剂A)与乙腈(溶剂B)组成。梯度洗脱程序如下:0–2 min,10% B;2–17 min,B由10%线性升至30%;17–19 min,B由30%降至10%;最后维持10% B至21 min运行结束。
【数据】色谱柱:Hypersil C18(4.6 × 250 mm,5 μm);柱温:35°C;流速:1.0 mL/min;检测波长:Sal 300 nm、对香豆酸320 nm、咖啡酸308 nm;样品处理:Sal为900 μl上清+100 μl含0.1% TFA的ACN,酚酸为500 μl上清+500 μl甲醇;流动相A:0.1% TFA水溶液(Sal体系为85:15水-ACN含0.1% TFA);流动相B:含0.1% TFA的100% ACN(酚酸体系为乙腈);Sal梯度:0–5 min 0→60% B、5–7 min 10% B、7–9 min 60→80% B、9–14 min 80% B、14–15 min 80→0% B、维持至25 min;酚酸梯度:0–2 min 10% B、2–17 min 10→30% B、17–19 min 30→10% B、维持至21 min
3.5 数据分析
实验进行生物学三重复,误差棒表示三次生物学重复的平均值±标准差(SD)。
【数据】重复数:生物学三重复;误差表示:平均值±标准差(SD);原文未详述:统计检验方法
研究结果
2.1 大肠杆菌-酿酒酵母共培养的种群失衡削弱生物合成效率
将代谢途径在菌株间拆分(分工协作)可有效用于生物生产,因其能降低代谢负担并为酶提供适宜环境(Liu et al., 2026; Yuan et al., 2020; Zhang et al., 2026)。维持种群稳定是分工共培养体系成功的关键,因此确定共培养中各物种的生长状态至关重要。然而,此前关于大肠杆菌-酿酒酵母共培养生长的研究报道结论看似矛盾(Wang et al., 2022; Zhou et al., 2015),我们因此首先建立共培养体系,系统考察其生长模式(图1A)。以mScarlet(编码红色荧光蛋白)与GFP(编码绿色荧光蛋白)为报告基因,分别整合至大肠杆菌与酿酒酵母基因组。以GFP与RFP荧光强度作为细胞丰度的替代指标,间接定量各物种占比。我们在不同接种比例、培养基(营养丰富的YPD-LB与基本SC-M9)及温度下评估共培养体系的种群组成与动态(图1与图S1)。结果显示,大肠杆菌的存在抑制了酵母生长。在1:1接种比例下,无论在营养丰富还是基本培养基中,酿酒酵母在共培养体系中的荧光强度与比生长速率均较单培养体系大幅下降(图1B、C、D)。相反,大肠杆菌在单培养与共培养条件下的荧光谱与比生长速率相当,提示其生长在有酵母存在时基本不受影响(图1B)。在营养丰富培养基中,酿酒酵母比生长速率由0.31 h⁻¹降至共培养中的0.19 h⁻¹,而大肠杆菌保持不变(0.65 h⁻¹对0.67 h⁻¹)(图1C)。SC-M9培养基中观察到类似结果(图1D),证实无论营养可得性如何,酿酒酵母均处于竞争劣势。我们还测定了不同温度与葡萄糖浓度下酿酒酵母与大肠杆菌的生长曲线,观察到相似的生长模式(图S1)。
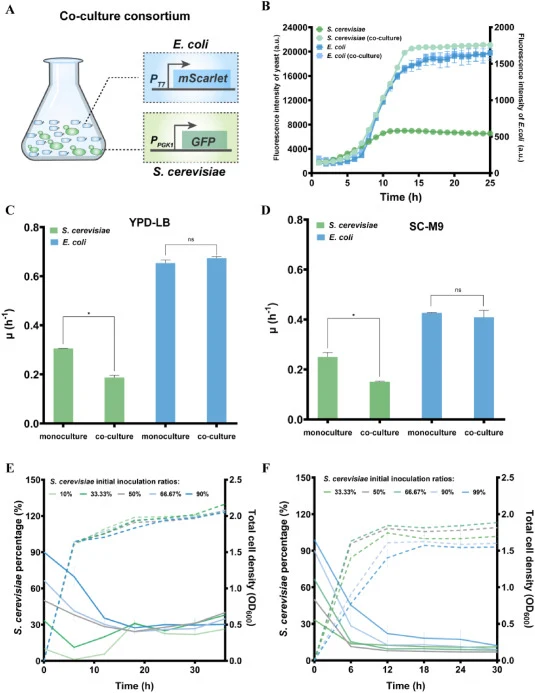
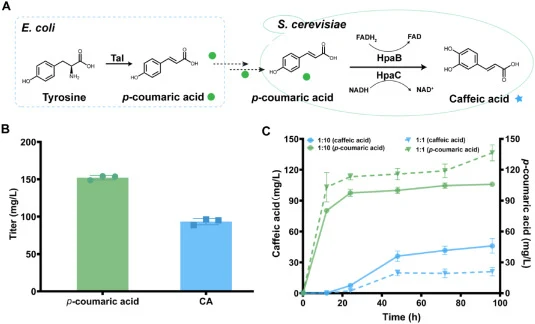
随后我们考察了不同初始接种比例下酵母的种群占比。在YPD-LB培养基中,将酿酒酵母接种比例从10%变化至90%,未能改善其最终占比,仍被限制在约30%(图1E)。这一劣势在SC-M9培养基中更为严重:即使初始接种比例高达99%,酿酒酵母最终仅占群落的3–11%(图1F)。这些结果表明,共培养过程中酵母生长被大肠杆菌压低,生长下降可能源于营养竞争。我们进而探究大肠杆菌-酿酒酵母共培养的化学品生产效率。作为概念验证,测试了高价值酚类抗氧化剂咖啡酸(CA)(Gülçin, 2006; Lin & Yan, 2012)的从头生物合成。CA生物合成途径被拆分到大肠杆菌与酿酒酵母中(Son & Lewis, 2002; Touaibia et al., 2011)。对香豆酸生产模块(含红酵母酪氨酸解氨酶RgTAL)在大肠杆菌B5(强化莽草酸途径的菌株)中表达,CA转化模块在酿酒酵母中表达(含铜绿假单胞菌4-羟基苯乙酸3-单加氧酶PaHpaB与肠道沙门氏菌黄素氧化还原酶SeHpaC)(Li et al., 2020; Liu et al., 2019)(图2A)。该体系中,大肠杆菌因异源蛋白表达能力优异而充当前体供应模块。大肠杆菌与酵母(补加200 mg/L对香豆酸)分别培养时,大肠杆菌产出153.7 mg/L对香豆酸,酵母产出95 mg/L CA(图2B),表明大肠杆菌的对香豆酸产量足以充当前体。据此我们评估了共培养体系。基于上述共培养结果,测试了两种初始接种比例(大肠杆菌:酿酒酵母为1:1与1:10)。1:1比例下仅产出20.9 mg/L CA,残留对香豆酸积累136.5 mg/L。将初始酵母接种比例由1:1提高至1:10,CA提高56.5%,但终浓度仍限于46 mg/L(图2C),显著低于酵母单培养的95 mg/L滴度(图2B),并观察到约99 mg/L对香豆酸的大量积累。这些结果提示,共培养体系的组成漂移削弱了CA生物合成能力。因此,调控种群比例对于建立稳健合成菌群、提升生物合成能力至关重要。
【数据】接种比例:1:1、1:10(酵母初始比例10%–99%);培养基:YPD-LB、SC-M9;温度:原文未详述(图S1涉及不同温度);比生长速率:酵母单培养0.31 h⁻¹→共培养0.19 h⁻¹,大肠杆菌0.65 h⁻¹对0.67 h⁻¹;酵母最终占比:YPD-LB约30%,SC-M9为3–11%(初始99%时);大肠杆菌对香豆酸产量:153.7 mg/L;酵母单培养CA产量:95 mg/L(补加200 mg/L对香豆酸);共培养CA产量:1:1为20.9 mg/L(残留对香豆酸136.5 mg/L)、1:10为46 mg/L(提高56.5%,残留对香豆酸约99 mg/L)
2.2 设计水杨酸介导的种间通讯系统
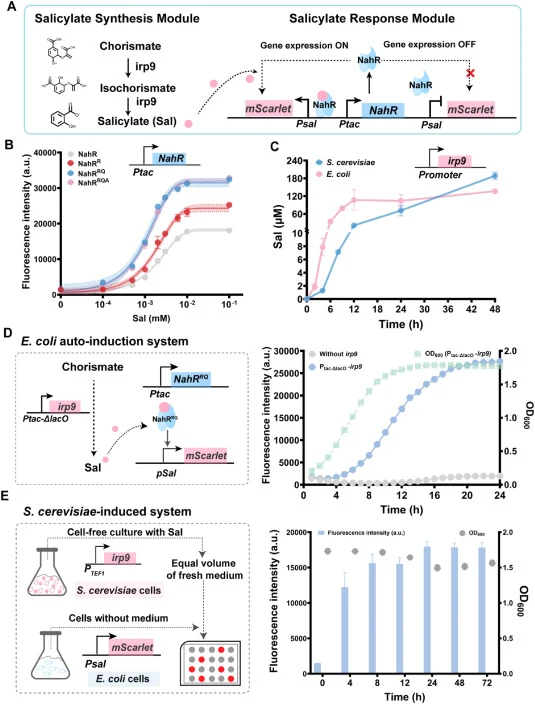
为实现菌群内种群比例的自主调控,我们旨在构建种间通讯介导的裂解回路,选择性控制大肠杆菌密度,从而提高酿酒酵母的相对占比。尽管基于N-酰基高丝氨酸内酯(AHL)的体系已被广泛用于细菌细胞间通讯,但酿酒酵母等真核生物合成此类信号分子的能力有限(Du et al., 2020; Maier et al., 2006; van Aalst et al., 2025; Zhai et al., 2026)。基于水杨酸(Sal)的信号体系已被成功建立用于种间通讯(Du et al., 2020)。我们因此选择Sal作为信号分子,以确保跨物种兼容性与高正交性,并构建Sal合成与响应模块(图3A)。Sal响应模块中,采用恶臭假单胞菌来源的NahR(Dunn & Gunsalus, 1973)作为转录激活因子,其结合Sal后识别恶臭假单胞菌的Sal响应型启动子,启动靶基因转录(Xue et al., 2014)。NahR基因受Ptac启动子控制,在大肠杆菌中表达(图3A)。为表征Sal响应模块,我们在不同浓度下水杨酸滴定。发现NahR以剂量依赖方式激活mScarlet表达(Sal 10⁻⁴至0.1 mM),在0.1 mM Sal(饱和浓度)下诱导倍数达未诱导对照的14.8倍,且基础渗漏极小(图3B与图S2)。这证实响应模块能有效感知Sal并激活基因表达。为提升回路的动态范围与灵敏度,我们对NahR进行工程改造。已有报道NahR变体Q168R、H57Q与V216A可提高对Sal的灵敏度(Du et al., 2020),我们因此将这些突变引入回路。如图2B所示,NahR突变提升了Sal回路的动态范围。具体而言,NahRQ168R(NahRR)、NahRQ168R, H57Q(NahRRQ)与NahRQ168R, H57Q, V216A(NahRRQA)在加入0.01 mM Sal时分别激活mScarlet表达20.5倍、27.6倍与28.2倍,较NahR分别高1.33、1.79与1.83倍。与NahRRQ相比,三重突变叠加未带来显著改善。我们因此选用NahRRQ进行动态调控。合成模块方面,将肠炎耶尔森菌irp9引入大肠杆菌或酿酒酵母,以实现由分支酸(莽草酸途径的通用前体)从头合成水杨酸(Pelludat et al., 2003)。如图3C所示,大肠杆菌与酿酒酵母均展现出以种群依赖方式合成Sal的能力。大肠杆菌与……
【数据】信号分子:水杨酸(Sal);转录激活因子:NahR(恶臭假单胞菌);启动子:Ptac、Sal响应型启动子;Sal滴定范围:10⁻⁴–0.1 mM;NahR诱导倍数:0.1 mM Sal下14.8倍;突变体激活倍数(0.01 mM Sal):NahRR 20.5倍、NahRRQ 27.6倍、NahRRQA 28.2倍,较NahR高1.33、1.79、1.83倍;合成基因:irp9(肠炎耶尔森菌);原文未详述:图3C后续具体滴度数值(节选至此中断)
2.3 Sal介导裂解系统的表征(据图4)
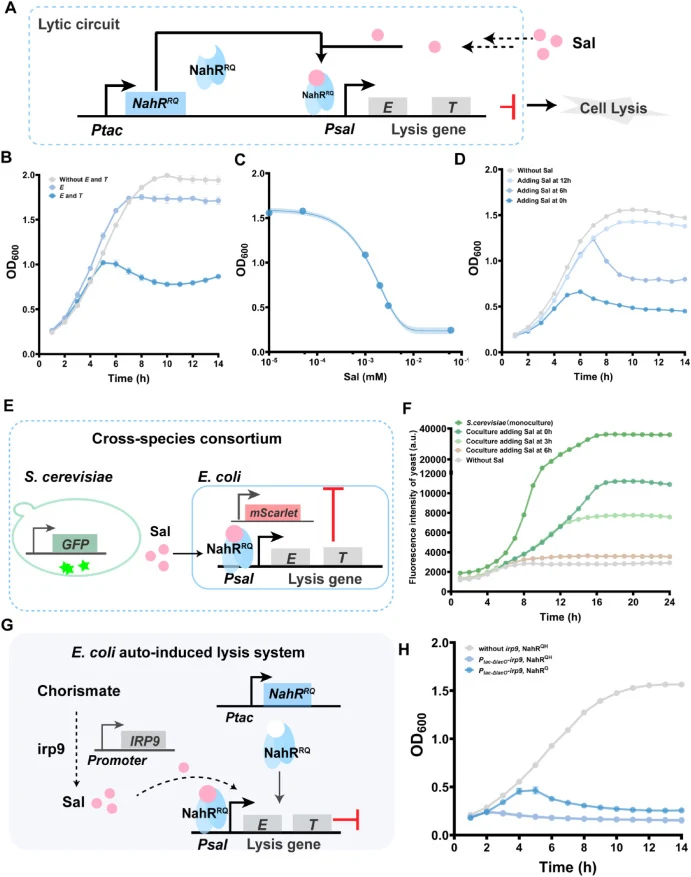
原文节选未提供该小节正文,图4为Sal介导裂解系统的表征:随Sal浓度逐渐升高,Sal与NahR互作并激活T4噬菌体裂解基因;在6 μM Sal下评估E与T基因的裂解效率。
【数据】信号分子:Sal;响应元件:NahR;裂解基因:T4噬菌体E、T;测试Sal浓度:6 μM;原文未详述:裂解效率具体数值(节选未含正文)
2.4 大肠杆菌-酿酒酵母跨界菌群自主种群控制回路的表征(据图5)
原文节选未提供该小节正文,图5展示含大肠杆菌自诱导裂解系统的菌群示意,并评估共培养体系中酵母种群占比与总OD600。
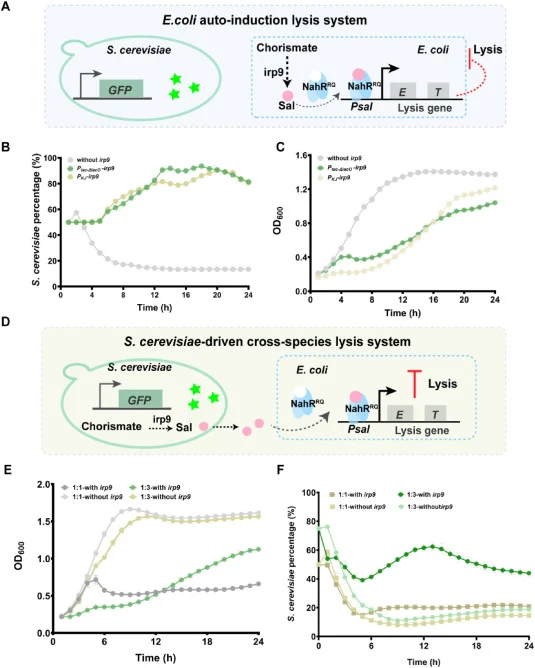
【数据】回路类型:大肠杆菌自诱导裂解系统;评价指标:酵母种群占比、总OD600;原文未详述:具体占比与OD600数值(节选未含正文)
2.5 动态种群控制提升分工跨界菌群的咖啡酸产量(据图6)
原文节选未提供该小节正文,图6展示咖啡酸从头生物合成的分工体系示意:上游大肠杆菌模块含酪氨酸解氨酶(TAL)催化L-酪氨酸合成对香豆酸,下游酿酒酵母模块完成后续转化。
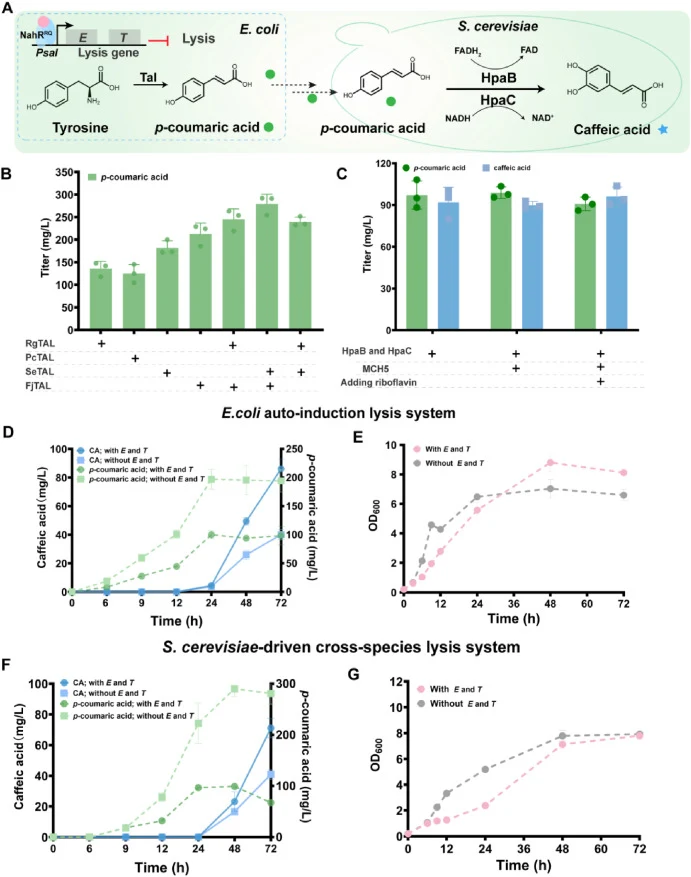
【数据】目标产物:咖啡酸(CA);上游模块:大肠杆菌表达TAL;下游模块:酿酒酵母;原文未详述:产量具体数值(节选未含正文)
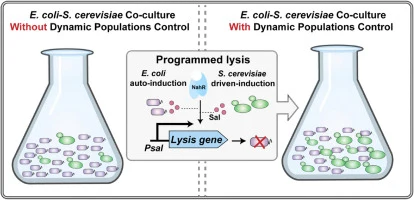
讨论与解读
种群稳定是微生物共培养体系的共性问题,跨物种菌群中维持种间比例尤为困难(Gao et al., 2021; Song et al., 2024)。大肠杆菌-酿酒酵母菌群此前已被设计用于多种植物源芳香天然产物的生物合成,如黄酮类、芪类与特殊多酚(Liu et al., 2022; Yuan et al., 2020)。但两者固有的差异——如比生长速率——使酿酒酵母在菌群中处于竞争劣势(Yuan et al., 2020)。本研究显示,即使将初始接种比例提高至极端的99%,酵母在基本培养基中的最终占比仍降至群落总细胞密度的3%–11%,最终导致产物合成受损。这一观察表明,仅依赖改变初始接种比例这类静态策略,不足以消除菌群内的组成漂移。为克服该问题,近期发展的动态策略包括交叉喂养(Zhou et al., 2015)或光遗传开关(Lalwani et al., 2021)等种间比例调控手段。本研究建立了水杨酸介导的细胞裂解调控平台,据我们所知,这是首个报道的……(原文节选至此中断)。
编译者解读:该工作把"种群比例"当作可编程变量而非既定参数,用Sal跨界信号把酵母的代谢需求转译成大肠杆菌的自毁指令,思路干净。两套裂解回路分别实现89%与44.5%的酵母占比、115%与73%的咖啡酸提升,说明控制粒度比控制强度更重要。局限在于裂解即死亡,碳氮源无法回收,且Sal本身是芳香途径中间体,长期运行可能与产物合成争夺前体。若把裂解改为可逆的生长抑制,或引入反馈型占空比调节,这套平台对更长途径、更多成员的菌群会更有价值。
参考来源
Metabolic Engineering, 2026. DOI: 10.1016/j.ymben.2026.102575
DOI: 10.1016/j.ymben.2026.102575