来源:Uncovering lignin metabolism in Myceliophthora thermophila toward integrated lignocellulose valorization(Bioresource Technology)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
木质素占植物生物量近三分之一,却长期是生物炼制的"废弃物"。本研究系统解析了嗜热子囊菌 Myceliophthora thermophila 的木质素代谢能力:该菌能修饰木质素骨架、利用多种木质素来源芳香单体,并通过转录组与基因敲除定位了β-酮己二酸途径的关键节点。敲除原儿茶酸羟化酶与3,4-双加氧酶基因后,H型和G型单体转化为3,4-二羟基苯甲酸的摩尔产率达42.5‒95.8%,并实现从原玉米芯直接生产。这为整合型木质纤维素生物炼制提供了新底盘。
研究背景
木质素是由对香豆醇、松柏醇和芥子醇经自由基聚合形成的天然芳香聚合物,与纤维素交织、与半纤维素共价连接,赋予植物细胞壁结构与抗微生物侵袭能力。其含量可达植物细胞壁干重的三分之一,是陆地生态系统中仅次于纤维素的第二大生物聚合物。将木质素转化为高值生物产品,可减少对石油基原料的依赖——但无论来自天然原料还是工业过程,木质素结构极端复杂且抗降解,高效转化始终是难题。
微生物(真菌与细菌)已进化出修饰、降解甚至利用木质素聚合物的能力。自然界中,丝状真菌是木质素分解的主力;传统观点认为木质素降解主要发生于担子菌,如白腐真菌能高效降解和修饰木质素聚合物。相比之下,子囊菌在木质素周转中的贡献长期被低估。M. thermophila 是成熟的植物生物质转化平台,但其木质素代谢能力"很大程度上尚未被探索"——这正是本研究要填补的空白。
研究方法
2.1 菌株、培养基与培养条件
M. thermophila ATCC 42464(WT,野生型)购自美国典型培养物保藏中心。本研究所用突变体列于补充材料。M. thermophila 菌株培养于含2%(w/v)葡萄糖的Vogel基本培养基(VMM,即GMM)上,含1.5%琼脂,35 °C培养7天以获得成熟分生孢子。VMM每升含:2.6 g Na3C6H5O7·2H2O、2.52 g KNO3、2.88 g NH4H2PO4、1.6 g KH2PO4、0.2 g MgSO4·7H2O、0.1 g CaCl2·2H2O、0.0025 mg生物素、1 mL微量元素溶液。微量元素溶液每升含:50 g C6H8O7·H2O、50 g ZnSO4·7H2O、10 g Fe(NH4)2(SO4)2·6H2O、2.5 g CuSO4·5H2O、0.5 g MnSO4·H2O、0.5 g H3BO3、0.5 g NaMoO4·2H2O(Davis and de Serres, 1970)。
为探究 M. thermophila 利用木质素及木质素来源底物的可能性,将碱木质素(AL;Solarbio,CAS: 8068-05-1;货号L8500,北京索莱宝)、脱碱木质素(DAL;CAS: 9005-53-2;批号C13390217;上海麦克林)、木质素来源芳香化合物(阿拉丁)和玉米芯粉(40目;含水量7.64%;内蒙古;华润双鹤药业有限责任公司)分别作为唯一碳源提供。按制造商规格,AL为深棕色粉末(水中溶解度可达100 mg/mL);DAL为黄至黑色固体,含水量≤20%,灼烧残渣10.0–20%,pH 3.0–4.0(50 g/L)。
生长表型分析:WT及突变体接种于补充不同碳源的VMM琼脂平板(1.5%琼脂,直径90 mm),每株接种2 µL含1 × 10^5 个孢子的悬液,45 °C培养。液体摇瓶培养:50 mL补充不同碳源的VMM调pH至6.0,接入终浓度1 × 10^6 个孢子/mL的分生孢子于250 mL三角瓶,45 °C、150 rpm振荡培养。
3,4-DHB生产实验:分生孢子以终浓度1 × 10^6 个/mL接入50 mL培养基(250 mL三角瓶),培养基为VMM补充1%(w/v)葡萄糖及0.5%(w/v)4-羟基苯甲酸(4-HBA)、0.2%(w/v)4-香豆酸、0.05%(w/v)苯甲酸、0.1%(w/v)阿魏酸、0.1%(w/v)香草酸或0.025%(w/v)香草醛。玉米芯产3,4-DHB实验:每升培养基含75 g玉米芯粉、3 g KH2PO4、4.48 g K2HPO4、0.1 g MgSO4·7H2O、0.1 g CaCl2·2H2O、8 g Bacto蛋白胨、1 mL生物素(0.1 g/L)、1 mL微量元素溶液(Vogel盐)。所有培养均45 °C、150 rpm。3,4-DHB摩尔产率按3,4-DHB滴度最高时间点的底物消耗量计算:产率(mol/mol)= 生成的3,4-DHB摩尔数 / 消耗的底物摩尔数。为确认3,4-DHB生产源于木质素而非玉米芯其他组分,将葡萄糖、木糖、纤维素(Avicel PH-101)和木聚糖(山毛榉来源,Sigma)各以75 g/L作为唯一碳源提供。
【数据】菌株:M. thermophila ATCC 42464(WT);培养基:VMM/GMM;琼脂:1.5%;葡萄糖:2%(w/v);产孢温度:35 °C;产孢时间:7天;接种孢子量:2 µL(1 × 10^5 个);培养温度:45 °C;摇床转速:150 rpm;液体装量:50 mL/250 mL;接种浓度:1 × 10^6 个孢子/mL;pH:6.0;玉米芯粉:75 g/L;玉米芯含水量:7.64%;AL溶解度:≤100 mg/mL;DAL含水量:≤20%;DAL灼烧残渣:10.0–20%;DAL pH:3.0–4.0(50 g/L)
2.2 基因表达与缺失的质粒构建
本研究所用全部引物序列与质粒列于补充材料。基因缺失:构建携带供体DNA的载体。目标基因5'和3'侧翼区从 M. thermophila 基因组DNA扩增;PtrpC-neo选择标记盒及含氨苄青霉素抗性基因(ampR)的pAN52骨架从质粒pAN52-PtrpC-neo扩增(Liu et al., 2023)。5'和3'侧翼片段与PtrpC-neo标记盒用NEB Gibson组装试剂盒组装,生成供体质粒。
sgRNA表达质粒构建:基于 M. thermophila 基因组序列,用sgRNACas9工具(Xie et al., 2014)鉴定目标基因内的靶位点;选择预测脱靶效应低的寡核苷酸,对应原型间隔序列见补充材料。M. thermophila U6启动子、RNA聚合酶III U6 snRNA基因及pJET1.2/blunt骨架直接从质粒U6-pck-sgRNA扩增(Liu et al., 2023),用NEB Gibson组装试剂盒组装成sgRNA表达质粒。Cas9表达盒(Ptef1-Cas9-TtprC)用引物Ptef-cas-F/TtprC-cas-R从质粒p0380-bar-Ptef1-Cas9-TtprC经PCR扩增(Liu et al., 2017)。
香草醛脱氢酶基因过表达:构建质粒pAN52-OE-vdhA-bar和pAN52-OE-Mtvdh-bar。vdhA基因从 A. niger CBS 513.88的cDNA扩增,Mtvdh从 M. thermophila 基因组DNA扩增;片段用NEB Gibson组装试剂盒插入pAN52-PgpdA-TtrpC-PtrpC-bar骨架的PgpdA启动子与TtrpC终止子之间。
【数据】质粒骨架:pAN52、pJET1.2/blunt;选择标记:PtrpC-neo(遗传霉素)、bar(草铵膦);启动子:PgpdA、Ptef1、PtrpC、U6;组装试剂盒:NEB Gibson;Cas9来源质粒:p0380-bar-Ptef1-Cas9-TtprC;vdhA来源:A. niger CBS 513.88 cDNA;Mtvdh来源:M. thermophila 基因组DNA
2.3 毁丝霉原生质体转化
采用聚乙二醇(PEG)介导的原生质体转化进行基因破坏与过表达,方法参照先前描述并稍作修改(Wang et al., 2015)。M. thermophila 孢子接入30 mL GMM,45 °C、150 rpm培养12 h。萌发孢子经3,220g离心10 min收集,用1 M MgSO4洗涤两次,重悬于含10 mg Trichoderma harzianum 裂解酶(Sigma)的10 mL 1 M MgSO4中。随后加入20 mL山梨醇–Tris–HCl–CaCl2(STC)溶液(1.2 M山梨醇、10 mM Tris–HCl,pH 7.5、50 mM CaCl2)。悬液3,220g离心10 min,STC洗涤两次,最终重悬于STC。
转化:200 µL原生质体悬液与10 µg PCR产物混合,60 °C孵育2 min。CRISPR/Cas9介导的基因破坏:10 µg Cas9表达PCR盒(Ptef1-Cas9-TtprC)、sgRNA表达PCR盒与相应供体片段按1:1:1摩尔比混合后加入真菌原生质体。基因过表达:10 µg PCR产物用于转化。随后加入50 µL 60%(w/v)PEG 4000溶液(含50 mM CaCl2、10 mM Tris–HCl,pH 7.5),室温孵育20 min。混合液转入50 mL离心管,补加2 mL 60% PEG 4000溶液,室温再孵育5 min。用20 mL STC稀释后3,220g离心10 min,沉淀重悬于1 mL STC。转化原生质体悬液涂布于补充遗传霉素(100 µg/mL)或草铵膦(100 µg/mL)的GMM琼脂平板,培养3天筛选neo或bar抗性转化子。转基因存在经PCR确认(见补充材料)。
【数据】孢子预培养:30 mL GMM、45 °C、150 rpm、12 h;离心:3,220g、10 min;裂解酶:10 mg/10 mL;STC:1.2 M山梨醇、10 mM Tris–HCl(pH 7.5)、50 mM CaCl2;原生质体用量:200 µL;DNA用量:10 µg;热激:60 °C、2 min;PEG 4000:60%(w/v)、50 µL + 2 mL;室温孵育:20 min + 5 min;抗性筛选浓度:遗传霉素100 µg/mL、草铵膦100 µg/mL;筛选时间:3天
2.4 代谢物分析与菌丝干重测定
纤维素、半纤维素和木质素含量按美国国家可再生能源实验室方法分析(Sluiter et al., 2021)。简要流程:0.3 g干燥样品与3 mL 72%(w/w)H2SO4混合,30 °C孵育1 h;水解液用水稀释至硫酸终浓度4%(w/w),121 °C高压灭菌1 h。释放的糖用高效液相色谱(HPLC)定量,配备Bio-Rad Aminex HPX-87H柱和Waters 2414示差检测器,40 °C;流动相为5 mM H2SO4,流速0.5 mL/min。酸不溶木质素含量测定的原文节选在此处中断(原文未详述后续步骤)。
【数据】样品量:0.3 g;H2SO4:3 mL、72%(w/w);水解温度/时间:30 °C、1 h;稀释后酸浓度:4%(w/w);灭菌:121 °C、1 h;HPLC柱:Bio-Rad Aminex HPX-87H;检测器:Waters 2414、40 °C;流动相:5 mM H2SO4;流速:0.5 mL/min
研究结果
3.1 *M. thermophila* 对商品木质素的利用与结构修饰
M. thermophila 虽是纤维素和半纤维素酶解研究的成熟模型,但其木质素同化能力基本未被探索。为评估该菌利用商品木质素制剂的能力,将AL和DAL分别作为唯一碳源。鉴于木质素被报道具有抗微生物特性,我们首先在GMM中补充不同浓度(0.2–2%,w/v)的AL或DAL,评估其对 M. thermophila 的潜在毒性。对AL而言,各测试浓度下生物量积累无显著差异(图1A)。相反,DAL表现出明显抑制作用,生物量随浓度升高显著下降。2% DAL条件下,M. thermophila 的DCW较葡萄糖对照下降91.3%。高DAL条件下还观察到明显形态异常,包括菌丝顶端显著膨大(见补充材料)。
为探究AL与DAL抑制效应不同的可能原因,我们分析了无菌培养基中的芳香单体。1% DAL中检测到0.046 g/L香草醛、0.034 g/L邻苯二酚和0.005 g/L丁香醛,而这些化合物在1% AL中含量低得多(见补充材料)。这些结果表明,DAL中较高丰度的抑制性芳香单体可能部分解释其更强的抑制作用——后续实验证实了这一点。
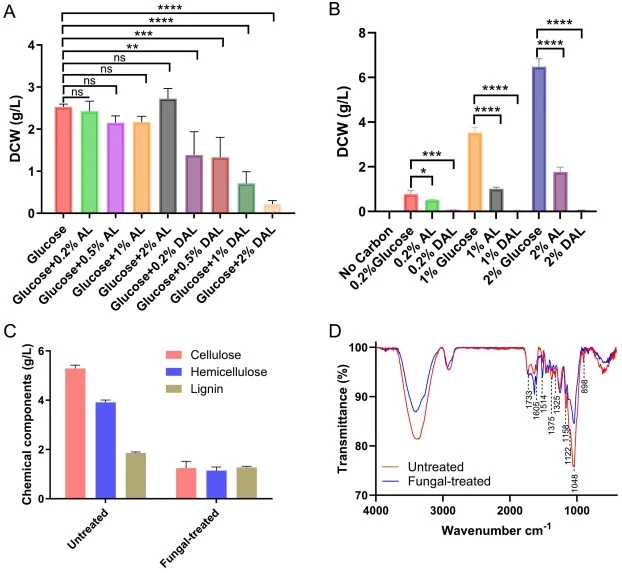
接下来评估 M. thermophila 以AL或DAL为唯一碳源的生长。培养3天后,含0.2% AL、1% AL和2% AL的培养物DCW分别达0.51、1.02和1.77 g/L(图1B)。而含DAL的培养物无论浓度如何,仅观察到可忽略的生物量积累(<0.07 g/L)。对未处理与真菌处理3天的1% AL培养物回收木质素进行FTIR光谱分析,整体谱型相似,表明木质素芳香骨架基本保留(见补充材料)。与未处理样品相比,真菌处理木质素在3419 cm−1(O–H伸缩)、2922 cm−1(脂肪族C–H伸缩)和1716 cm−1(羰基伸缩)处强度降低;1619和1514 cm−1处特征芳香骨架振动带也略有下降。此外,1325(紫丁香基环呼吸与C–O伸缩)、1122(S单元芳香C–H面内变形)和1041 cm−1(脂肪族醇/醚C–O伸缩)处观察到中度下降。FTIR结果提示,M. thermophila 主要修饰木质素官能团,同时基本保留芳香聚合物骨架。
GPC分析进一步揭示真菌培养后木质素分子量分布的变化(见补充材料)。培养3天后,数均分子量(Mn)从497.9降至409.7 Da(降低17.7%),重均分子量(Mw)从664.6降至629.3 Da(降低5.3%)。同时多分散指数(PDI)从1.335升至1.536,表明真菌处理后分子量分布变宽。这些结果说明 M. thermophila 部分修饰了木质素结构,使残余木质素向更低分子量和更宽分子量分布偏移。
【数据】AL浓度:0.2–2%(w/v);2% DAL:DCW下降91.3%(vs 葡萄糖);1% DAL芳香单体:香草醛0.046 g/L、邻苯二酚0.034 g/L、丁香醛0.005 g/L;3天DCW:0.2% AL 0.51 g/L、1% AL 1.02 g/L、2% AL 1.77 g/L;DAL培养DCW:<0.07 g/L;FTIR:3419、2922、1716、1619、1514、1325、1122、1041 cm−1;GPC:Mn 497.9→409.7 Da(−17.7%)、Mw 664.6→629.3 Da(−5.3%)、PDI 1.335→1.536
3.2 *M. thermophila* 对生物质内嵌木质素的利用
随后以玉米芯(2%,w/v)为唯一碳源,研究天然植物生物质中木质素的利用。培养3天后,76.5%的纤维素和71.0%的半纤维素被消耗,木质素含量下降约31.7%(图1C)。纤维素、半纤维素和木质素同步减少,表明 M. thermophila 生长中可同时获取多种生物质组分,而非依赖单一多糖组分。第3天培养物的靶向代谢物分析显示,与对照相比木质素来源芳香化合物发生显著变化(见补充材料)。例如,丁香酸积累,而4-香豆酸和咖啡酸随培养进程下降。这一模式提示木质素来源芳香化合物被持续释放并随后代谢,而非简单积累。
基于已建立的真菌木材腐朽FTIR解析(Pandey and Pitman, 2003),进行FTIR分析以研究结构变化。碳水化合物相关特征带——1733 cm−1(木聚糖中非共轭CO)、1375 cm−1(多糖C−H变形)、1048 cm−1(C−O伸缩)、1158 cm−1(C−O−C振动)和898 cm−1(β-糖苷键)——显著下降,表明 M. thermophila 优先去除纤维素和半纤维素(图1D)。相反,1605和1514 cm−1处木质素相关芳香骨架振动相对强度增加,与多糖耗竭导致的木质素富集一致。同时,其他木质素相关谱带(如归属于紫丁香基和愈创木基单元的1325和1122 cm−1)部分下降。一致地,SEM显示表面严重破坏,包括粗糙度、孔隙率和碎片化增加,真菌菌丝黏附并穿透底物(见补充材料)。这些结果表明,M. thermophila 优先消耗碳水化合物组分,同时诱导木质素的部分解聚与重塑。
木质素相关官能团的修饰及木质素来源芳香代谢物的检出表明,M. thermophila 能修饰生物质内嵌木质素并利用释放的木质素来源芳香化合物。尽管木质素降解传统上被视为白腐担子菌的特征,越来越多证据表明子囊菌也参与自然生态系统中的木质素周转(Dou et al., 2022; Ferrari et al., 2021; Li et al., 2024)。与此一致,M. thermophila 基因组编码若干推定胞外氧化还原酶,包括漆酶、阿魏酸酯酶和推定木质素修饰过氧化物酶(Berka et al., 2011)。这些酶可能参与木质素来源芳香化合物的释放,但其具体生理作用仍待实验验证。
【数据】玉米芯:2%(w/v);3天消耗:纤维素76.5%、半纤维素71.0%;木质素下降:约31.7%;FTIR碳水带:1733、1375、1048、1158、898 cm−1;木质素带:1605、1514(相对增强)、1325、1122 cm−1(部分下降)
3.3 *M. thermophila* 对多种木质素来源芳香化合物的同化
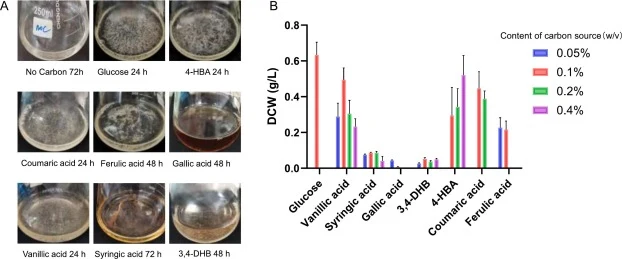
木质素通常在微生物同化前解聚为低分子量芳香化合物。我们前期研究通过Biolog实验显示 M. thermophila 可利用木质素来源芳香化合物4-HBA(Liu et al., 2022)。鉴于该菌可利用商品木质素和玉米芯中的木质素,我们进一步研究哪些具体木质素来源单体可支持其生长。共评估12种代表性木质素来源芳香化合物——涵盖紫丁香基(S)、愈创木基(G)和对羟基苯基(H)衍生物——作为唯一碳源。在摇瓶培养、各单体浓度0.1%(w/v)条件下,其中7种单体不同程度支持真菌生长(图2A和B)。相反,3种醛类木质素单体(香草醛、丁香醛和松柏醛)以及邻苯二酚和愈创木酚上未观察到生长,可能归因于其严重的细胞毒性。不同浓度下的进一步分析显示,M. thermophila 对这些芳香物表现出差异耐受性,在……(原文节选在此处中断,后续内容未详述)。
【数据】测试单体:12种(S/G/H型);支持生长:7种;测试浓度:0.1%(w/v);不支持生长:香草醛、丁香醛、松柏醛、邻苯二酚、愈创木酚;培养方式:摇瓶
3.4 转录组分析与关键基因敲除(据图3、图4图注及摘要)
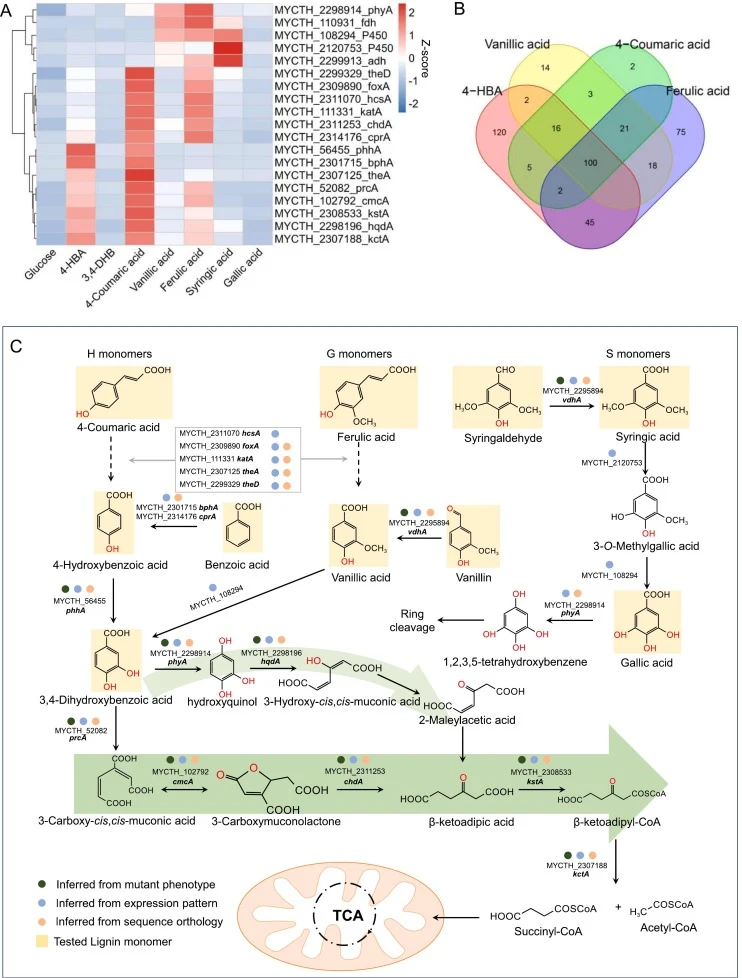
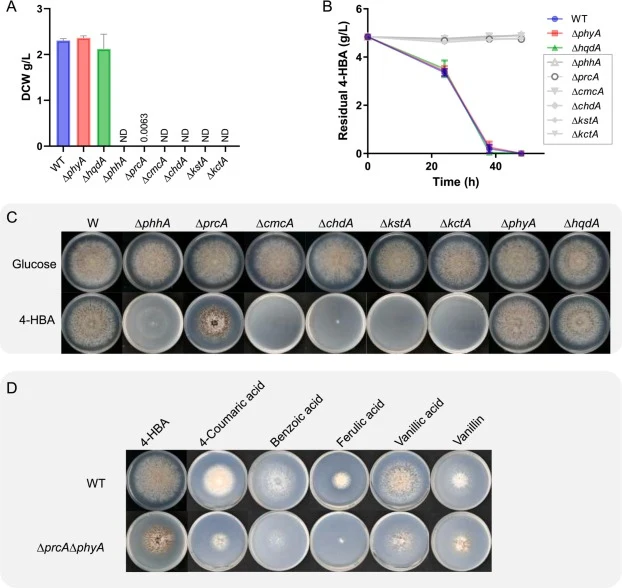
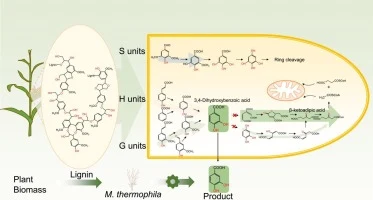
摘要指出,本研究整合转录组分析与靶向基因敲除,绘制了这些芳香化合物的关键代谢通路。具体而言,M. thermophila 将多种H型和G型芳香单体汇入β-酮己二酸途径的3,4-二羟基苯甲酸(原儿茶酸,3,4-DHB)分支。图3为 M. thermophila 木质素来源芳香化合物同化的转录组分析:热图展示候选基因在多种木质素来源芳香物下的表达谱(Z-score标准化log2转换RPKM;数据为三个独立生物学重复的均值)(原文图注节选)。图4展示基因缺失对木质素来源芳香物利用的影响:不同突变体摇瓶培养的菌丝DCW(A)与残余4-HBA(B);WT与缺失突变体在以4-HBA(0.1%,w/v;5天)为唯一碳源的琼脂平板上的表型(C);以及……(图注原文在此中断)。
【数据】转录组:3个独立生物学重复;数据形式:Z-score标准化log2转换RPKM;平板4-HBA浓度:0.1%(w/v);培养时间:5天
3.5 过表达香草醛脱氢酶增强芳香醛利用(据图5图注及摘要)
图5展示通过过表达香草醛脱氢酶增强 M. thermophila 对芳香醛的利用。图注显示:AlphaFold 3预测的AnVdhA与MtVdhA三维结构比较(A);WT、OE-AnvdhA和OE-MtvdhA在含VMM补充……的琼脂平板上的生长表型(图注原文在此中断)。结合方法部分,vdhA来自 A. niger CBS 513.88,Mtvdh来自 M. thermophila 基因组,均置于PgpdA启动子下过表达。
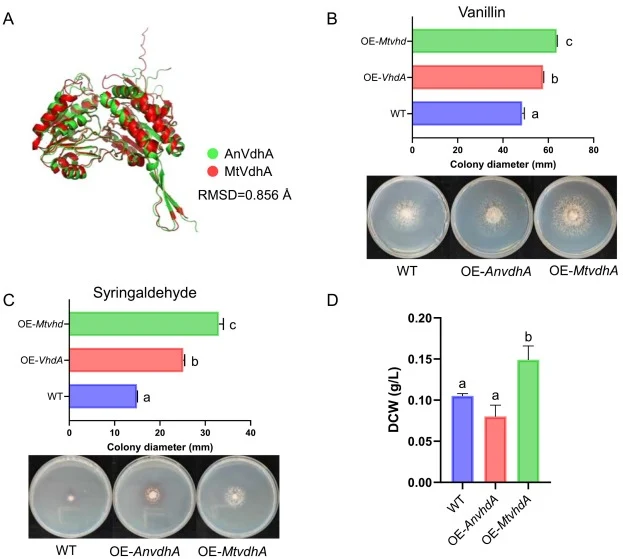
【数据】结构预测工具:AlphaFold 3;过表达菌株:OE-AnvdhA、OE-MtvdhA;启动子:PgpdA;基因来源:A. niger CBS 513.88 cDNA、M. thermophila 基因组DNA
3.6 工程菌株产3,4-DHB及原玉米芯直接合成(据图6图注及摘要)
摘要给出核心数据:破坏原儿茶酸羟化酶与3,4-双加氧酶基因成功重定向代谢流,从H型和G型单体获得42.5‒95.8%的3,4-DHB摩尔产率;工程菌株实现从原玉米芯直接生产3,4-DHB。图6展示工程 M. thermophila 产3,4-DHB评估:(A)通过生物漏斗策略从玉米芯直接生物合成3,4-DHB;(B)WT、ΔprcA和ΔprcAΔphyA中由4-HBA合成的3,4-DHB积累;(C)生物转化过程中4-HBA消耗的时间进程(图注原文在此中断)。
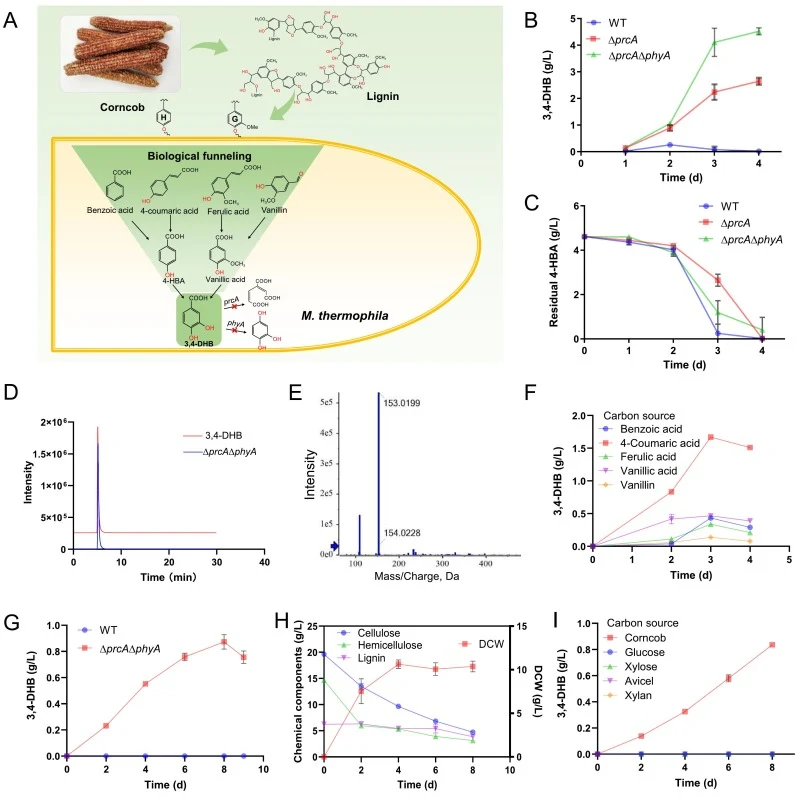
【数据】3,4-DHB摩尔产率:42.5‒95.8%(H型与G型单体);关键敲除基因:prcA(原儿茶酸羟化酶)、phyA(3,4-双加氧酶);菌株:WT、ΔprcA、ΔprcAΔphyA;底物:4-HBA;原料:原玉米芯
图7 | 图注:(原文未提供图注)
讨论与解读
本研究证明 M. thermophila 可在含木质素培养基中生长并代谢多种木质素来源芳香化合物。通过转录组分析与功能验证相结合,绘制了H、G、S型芳香单体降解的主要代谢通路;对下游途径的代谢工程使3,4-DHB能从多种木质素来源芳香底物乃至原玉米芯高效积累。研究拓展了对嗜热真菌芳香代谢的认识,并凸显 M. thermophila 用于木质素增值的潜力。
编译者解读:该研究的巧妙之处在于"以用代解"——不追求彻底开环降解木质素,而是把顽固芳香物导入β-酮己二酸途径的3,4-DHB分支并截流,把分解难题转化为产物积累问题。42.5‒95.8%的摩尔产率与玉米芯直接发酵,显示了整合型生物炼制的可行性。局限也明显:DAL中芳香醛的毒性、S型单体利用细节及氧化还原酶生理角色仍待厘清,产率上限受底物毒性制约。
参考来源
期刊:Bioresource Technology, 2027
DOI: 10.1016/j.biortech.2026.136080
DOI: 10.1016/j.biortech.2026.136080