来源:Bioprocess development for enhanced production of recombinant Tocilizumab in Pichia pastoris through metabolic engineering and fed-batch culture(Bioresource Technology Reports)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
托珠单抗(TCZ)是一种人源化单克隆抗体,在毕赤酵母中分别以全长抗体和Fab片段两种形式表达。本研究为每种重组菌株独立重建了代谢模型iPP668,通过FSEOF和FVA预测基因扩增靶点,发现谷胱甘肽氧化还原酶(GTHO)和NADPH依赖型硫氧还蛋白还原酶(TRDR)共同过表达可显著提升抗体产量。在2 L补料分批生物反应器中以甘露醇/甲醇(全长TCZ)或山梨醇/甲醇(Fab)共底物补料,残余补料策略获得最高产量:全长TCZ达3.21 ± 0.18 mg/L,Fab达588.53 ± 5.30 mg/L,较摇瓶培养分别提高约22倍和7.7倍。
研究背景
毕赤酵母(又称Komagataella phaffii)是重组蛋白生产的成熟平台,尤其在生物制药领域占据重要地位。自1995年以来,在酵母宿主中异源表达的基因种类持续扩展。高细胞密度培养、合成生物学工具开发、现代基因工程技术的进步以及对酵母遗传和生理特性的深入理解,使毕赤酵母成为常用的细胞工厂。其应用已超越治疗性蛋白生产,实现了200多种异源蛋白的表达,包括人血清白蛋白(HSA)、人超氧化物歧化酶(hSOD)、人促红细胞生成素(EPO)以及全长和片段形式的人单克隆抗体。据报告,2025年HSA和重组HSA(rHSA)的市场规模分别为75.45亿和2.85亿美元,其中rHSA的预计复合年增长率接近11.4%。重组人胰岛素市场规模在2025年约为300亿美元。此外,2025年EPO市场规模粗略估计为117亿美元。在此背景下,本研究旨在通过代谢模型指导的途径优化与补料分批培养策略的结合,提升毕赤酵母中重组TCZ的生产水平。
研究方法
2.1 微生物、培养条件和培养基
本研究中,表达全长TCZ及其Fab片段的重组毕赤酵母菌株以甘油管为来源,划线接种于新鲜YPDS琼脂平板,该平板含1%酵母提取物、2%蛋白胨、2%葡萄糖、18.2%山梨醇和2%琼脂,并添加终浓度为100 μg/mL的博来霉素。之后,平板在30 °C下孵育两到三天。重组菌株分别命名为GS115/pPICZαA-TCZ(全长TCZ生产)和GS115/pPICZαA-Fab(Fab片段生产)。
【数据】培养基:YPDS(1%酵母提取物、2%蛋白胨、2%葡萄糖、18.2%山梨醇、2%琼脂);抗生素:博来霉素100 μg/mL;温度:30°C;时间:2-3天;菌株:GS115/pPICZαA-TCZ、GS115/pPICZαA-Fab
2.2 基因组尺度代谢模型重建
基因组尺度代谢模型iPP668(MODEL1507180023)从EMBL-EBI网站(https://www.ebi.ac.uk/biomodels/MODEL1507180023)下载。随后使用COBRA Toolbox v2.0将该模型整合到MATLAB 2021a(The MathWorks, Inc., Natick, MA)中,以生物量生长为目标函数。TCZ的重链和轻链基因(氨基酸序列见https://go.drugbank.com/drugs/DB06273)通过'addReaction'函数连同系数添加到现有网络中。重链和轻链的反应分别记为'HC'和'LC'。添加HC和LC反应以分析全长TCZ表达。类似地,对于Fab,该基因连同氨基酸系数单独添加,反应记为'rFab'。反应中的能量需求也需要平衡。HC、LC和rFab的反应及系数详情见补充信息S1。为反映实验设置,涉及底物和氧气交换的反应约束按要求调整。具体而言,使用COBRA Toolbox中的'changeRxnBounds'函数修改所需反应边界,将氧气和山梨醇/甘露醇的吸收速率分别限制为10和20 mmol gDW−1 h−1。基因组尺度代谢模型iPP668(MODEL1507180023)从EMBL-EBI网站(https://www.ebi.ac.uk/biomodels/MODEL1507180023)下载。随后使用COBRA Toolbox v2.0将该模型整合到MATLAB 2021a(The MathWorks, Inc., Natick, MA)中,以生物量生长为目标函数。TCZ的重链和轻链基因(氨基酸序列见https://go.drugbank.com/drugs/DB06273)通过'addReaction'函数连同系数添加到现有网络中。重链和轻链的反应分别记为'HC'和'LC'。添加HC和LC反应以分析全长TCZ表达。类似地,对于Fab,该基因连同氨基酸系数单独添加,反应记为'rFab'。反应中的能量需求也需要平衡。HC、LC和rFab的反应及系数详情见补充信息S1。为反映实验设置,涉及底物和氧气交换的反应约束按要求调整。具体而言,使用COBRA Toolbox中的'changeRxnBounds'函数修改所需反应边界,将氧气和山梨醇/甘露醇的吸收速率分别限制为10和20 mmol gDW−1 h−1。
【数据】模型:iPP668(MODEL1507180023);软件:MATLAB 2021a、COBRA Toolbox v2.0;目标函数:生物量生长;添加反应:HC、LC、rFab;氧气吸收速率约束:10 mmol gDW−1 h−1;山梨醇/甘露醇吸收速率约束:20 mmol gDW−1 h−1
2.3 重建模型的分析
代谢网络模型通常用化学计量矩阵描述,列代表反应,行代表单个代谢物。每列中的化学计量系数描述反应中代谢物的消耗和生成,负值和正值分别对应消耗和生成。一系列基于约束的分析技术,包括通量平衡分析和鲁棒性分析,已被用于研究该矩阵的性质。
【数据】原文未详述
2.3.1 FBA
通量平衡分析(FBA)计算稳态条件下各种反应的通量值,包括生物量生长速率。模型预测的生物量生长代表指数期比生长速率μ(h−1)。除生物量生长外,任何所需反应均可定义为目标函数。在本研究中,我们将目标反应的目标函数设为HC、LC和rFab。执行FBA可提供目标函数值、分析所需时间以及描述模型中所有反应通量的向量等结果。
【数据】目标函数:HC、LC、rFab;比生长速率单位:h−1
2.3.2 鲁棒性
在代谢网络中,鲁棒性分析量化特定代谢反应最优通量的变化如何影响目标函数(此处为生物量生长)的最优通量。它评估生物量生产对特定感兴趣反应通量增加的响应。本研究评估宿主细胞适应代谢变化的能力,例如通过产物形成过程增加通量或环境条件变化。
【数据】原文未详述
2.4 使用强制目标通量和通量扫描(FSEOF)寻找基因扩增靶点
强制目标通量通量扫描(FSEOF)常用于预测旨在提高代谢物产量的候选扩增靶点。通过约束系统使通量流向产物形成,FSEOF能够通过系统扫描模型中所有反应来预测随产物合成而增加的通量。随着通过目标反应的通量逐渐增加,相应的扩增靶点也显示显著的通量升高,使其成为设计过量生产策略的关键候选。该FSEOF算法分别应用于两种情况(全长TCZ和Fab),并将最有效的共同基因作为扩增靶点。
【数据】应用对象:全长TCZ和Fab(分别);方法:FSEOF
2.5 所选基因靶点的通量变异性分析
基于约束的通量分析通常产生多个可行通量分布而非单一解,允许代谢网络内具有相当大的灵活性来计算最优目标函数通量值。未充分确定的通量水平可能导致FSEOF中的假阳性预测。进行通量变异性分析(FVA)以确认FSEOF所发现通量的相关性。FVA识别在给定约束下达到相同目标值的多个替代解。它还确定每个反应的通量范围(最小值到最大值),提供在指定条件下可达到的通量值可行范围的见解。
【数据】方法:FVA;输出:每个反应的通量范围(最小值到最大值)
2.6 基于OptKnock的基因敲除靶点识别
OptKnock是GSMM中常用的Cobra Toolbox算法,用于模拟反应消除。它采用双层优化方法识别一组基因或反应缺失,同时最大化细胞生长和目标分子生产。OptKnock有助于识别多个反应敲除,促进设计用于改善代谢物产量的工程菌株。
【数据】方法:OptKnock;优化策略:双层优化
2.7 全长TCZ和Fab共同FSEOF识别基因靶点的克隆
所有靶基因通过生物信息学工具在野生型毕赤酵母菌株X-33中鉴定。基因通过PCR(cDNA使用一步RT-PCR试剂盒,NEB,美国)从毕赤酵母X-33基因组扩增,并克隆到组成型启动子下的表达载体如pGKB和pGHYB中。每个基因单独或与两个基因组合整合到重组菌株(GS115/pPICZαA-TCZ和GS115/pPICZαA-Fab)的基因组中。靶基因的整合通过基因组DNA(gDNA)的基因特异性PCR扩增确认。
【数据】菌株:P. pastoris X-33(野生型);载体:pGKB、pGHYB;启动子:组成型启动子;PCR试剂盒:一步RT-PCR kit(NEB,美国);验证方法:gDNA基因特异性PCR
2.8 使用代谢工程菌株重组表达全长TCZ和Fab
毕赤酵母GS115/pPICZαA-TCZ和GS115/pPICZαA-Fab的重组菌株……
【数据】原文未详述
研究结果
3.1 重建GSMM的分析
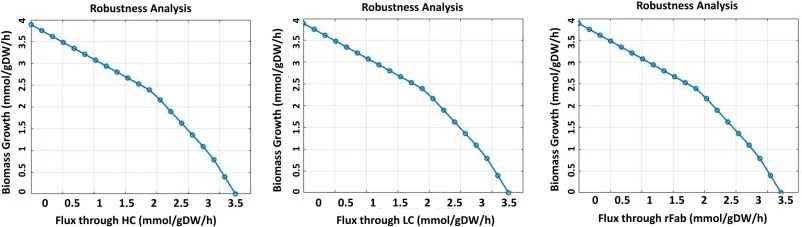
所选毕赤酵母代谢模型iPP668包含668个基因、1361个反应和1177个代谢物,分布在八个区室:线粒体、细胞核、过氧化物酶体、细胞外基质、胞质、内质网、高尔基体和液泡。代谢反应包括149个细胞外交换过程、308个区室间反应和904个区室内反应。该模型使用山梨醇作为异源蛋白合成的有效替代碳源。此外,他们发现甘露醇可作为共补料策略的替代碳源以支持甲醇代谢。类似地,在GSMM重建过程中,我们使用山梨醇/甘露醇作为底物。由于我们分别插入了编码全长TCZ和Fab的基因,在整合所需基因(LC和HC、rFab)后,全长TCZ模型现在包含1368个反应和1182个代谢物,Fab模型包含1364个反应和1180个代谢物。无约束条件下生物量通量为3.8915 mmol.gDW−1.h−1。HC、LC和rFab在无任何约束条件下的通量值分别确定为3.2554、3.2660和3.2221 mmol.gDW−1.h−1。所有三个新插入基因的鲁棒性分析呈现相似趋势,显示通过特定反应(插入基因)的通量增加而生物量生长下降(图1)。这种趋势在异源蛋白生产中很常见,因为外源基因的插入施加了代谢负担,通量向所需代谢物的重定向通常以细胞生长为代价。宿主的韧性对于每种情况下目标代谢物的持续和可持续生产至关重要。然而,代谢负荷、途径毒性和不利环境等因素可能对韧性产生负面影响,最终降低生产力和产量。
【数据】模型:iPP668;基因数:668;反应数:1361;代谢物数:1177;区室数:8;细胞外交换反应:149;区室间反应:308;区室内反应:904;全长TCZ模型反应数:1368;全长TCZ模型代谢物数:1182;Fab模型反应数:1364;Fab模型代谢物数:1180;生物量通量:3.8915 mmol.gDW−1.h−1;HC通量:3.2554 mmol.gDW−1.h−1;LC通量:3.2660 mmol.gDW−1.h−1;rFab通量:3.2221 mmol.gDW−1.h−1
3.2 FSEOF和OptKnock预测基因扩增和敲除反应靶点
代谢工程菌株开发的关键步骤是识别应被扩增或缺失的基因以促进所需生物产品的合成。在此,我们使用FSEOF方法识别基因扩增候选。FSEOF识别对目标反应(分别对全长TCZ的LC和HC以及rFab)有显著影响的关键扩增靶点。通过将目标反应通量从其最小值逐渐增加到最大值,它揭示通量随之上升的反应,有助于靶向途径优化。表1、2和3分别呈现了增强全长TCZ中LC和HC通量以及Fab片段中rFab通量的基因扩增反应靶点。在所有三个目标通量的情况下观察到一些共同反应,最终在FVA后获得具体靶点。类似地,我们采用OptKnock寻找敲除靶点以实现所需抗体的最大生产。表4和5分别显示全长TCZ和Fab的敲除靶点。OptKnock识别基因或反应缺失以最大化目标代谢物生产同时维持细胞生长,尽管某些敲除可能因代谢负担而减少生物量。类似地,在我们重建的重组毕赤酵母代谢模型上进行的计算机OptKnock预测显示,实施某些反应缺失时生物量生长降低,或在某些情况下完全抑制生长。因此,我们仅以FSEOF预测的基因过表达靶点进行进一步实验验证。多项研究报道了基于OptKnock的基因缺失策略导致生物量积累受损和产物产量大幅降低。例如,在Clostridium ljungdahlii中,缺失2-3个基因导致生物量生长减少约47%,同时2,3-丁二醇产量下降30-34%。在Bacillus subtilis中,OptKnock预测的2,3-丁二醇产量改善无法在体内验证,菌株显示生长无增强,在某些情况下产物形成减少。因此,我们仅以基因过表达靶点来评估其对全长和Fab片段表达的影响。
【数据】方法:FSEOF、OptKnock、FVA;目标反应:LC、HC、rFab;共同反应靶点:ATPH1、GTHO、GTPH1、TRDR;C. ljungdahlii中缺失2-3基因:生物量减少约47%,2,3-丁二醇下降30-34%
3.3 所选潜在扩增靶点的FVA分析
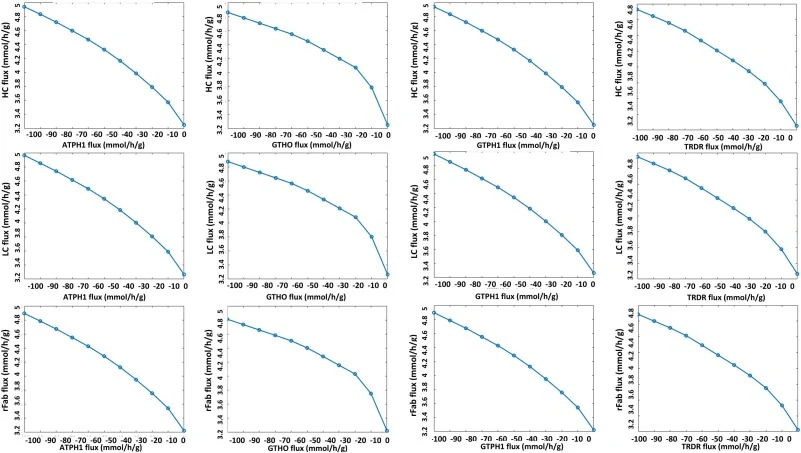
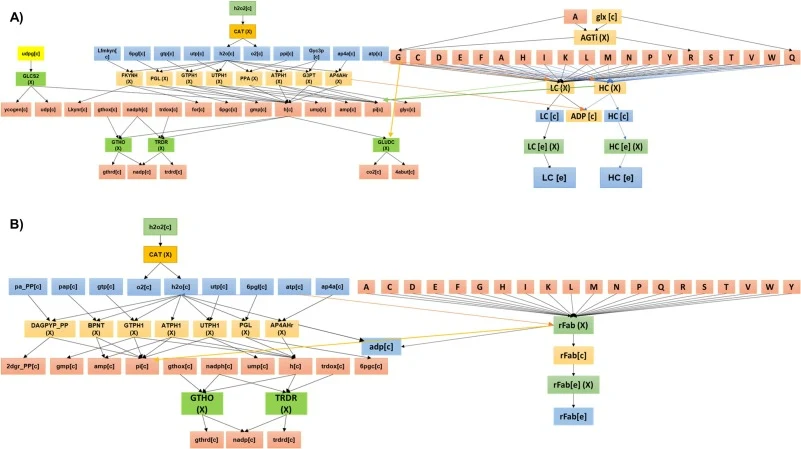
基于约束的通量分析允许在确定最优目标函数通量(如HC、LC、rFab)时具有灵活性,因为它不产生唯一的通量分布。因此,FSEOF导出的通量值可能偏离最优解,可能导致假阳性结果。采用通量变异性分析确保FSEOF所识别通量的显著性。我们分析了所有三个目标函数的所有靶点反应的通量变化,观察到所有三个目标中几个共同反应(ATPH1、GTHO、GTPH1、TRDR)的通量增强(图2)。全长和Fab TCZ代谢网络及其特定反应靶点的生物图如图3所示。在这四个反应中,通过ATPH1和GTPH1的通量增强导致所有三个目标的通量增加4.8-5 mmol.gDW−1.h−1。参与这些反应的基因,即ATP二磷酸水解酶和GTP二磷酸水解酶,分别主要负责ATP和GTP水解,有助于中心碳代谢、能量平衡、生物量生长和重组蛋白生产。根据多项报告,异源蛋白生产相当耗能,因为ATP和GTP在蛋白翻译中起关键作用(核糖体延伸、氨基酸活化、起始、翻译后修饰等)。我们知道将异源基因整合到代谢模型中使得能够分析生物量形成、能量需求和蛋白质合成的关系。另外两个关键反应靶点GTHO和TRDR导致所有三个目标的通量增加4.6-4.8 mmol.gDW−1.h−1,分别主要负责维持生物体中的氧化还原(NADPH/NADH+)平衡,涉及编码谷胱甘肽氧化还原酶和硫氧还蛋白还原酶的基因。代谢模型考虑生物量生产和重组蛋白合成的能量和氧化还原需求。然而,蛋白质分泌增加了复杂性,因为伴侣蛋白功能在非化学计量循环中需要ATP消耗,二硫键形成以非化学计量方式需要NADPH以维持氧化还原平衡。增强前体可用性和改善细胞氧化还原及能量效率可以克服蛋白质合成限制。过表达氧化性PPP酶和苹果酸脱氢酶增加线粒体NADH。更高的蛋白产量可能源于氧化应激减少或NADPH和前体供应增加。为平衡甲醇代谢产生的过量NADH,一项研究引入了来自Lactococcus lactis的NADH氧化酶(noxE),突显了NADH在毕赤酵母蛋白生产中的关键作用。
【数据】共同反应:ATPH1、GTHO、GTPH1、TRDR;ATPH1/GTPH1通量增加:4.8-5 mmol.gDW−1.h−1;GTHO/TRDR通量增加:4.6-4.8 mmol.gDW−1.h−1;目标函数:HC、LC、rFab
3.4 基因过表达对抗体生产影响的实验验证
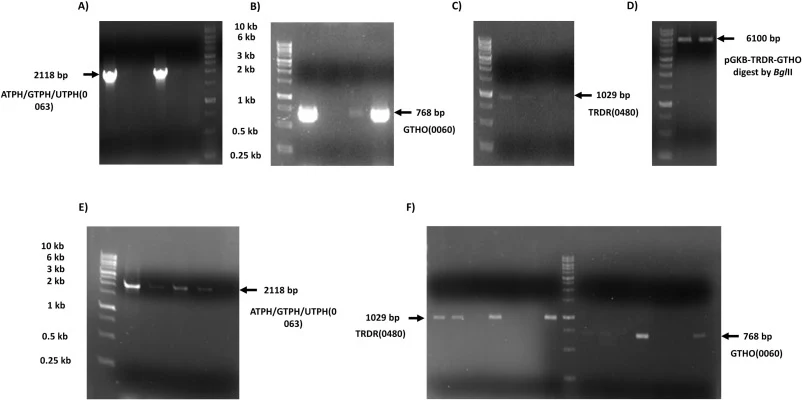
FSEOF和FVA预测的潜在反应靶点从野生型毕赤酵母菌株X-33中选择扩增。相应基因(表6)使用NCBI数据库鉴定(表7),并通过表8所列引物进行PCR扩增。PCR产物(图4A、B、C)随后克隆到pGKB和pGHYB载体的各自限制性位点。由于基因PAS_chr1-1_0063参与ATPH1和GTPH1两个反应,单一构建体……
【数据】菌株:P. pastoris X-33(野生型);载体:pGKB、pGHYB;基因:PAS_chr1-1_0063(参与ATPH1和GTPH1);方法:PCR扩增、限制性酶切克隆
讨论与解读
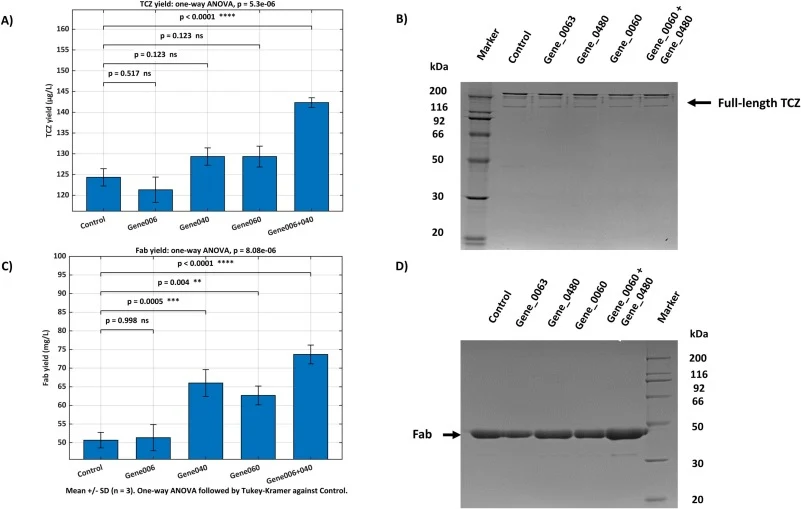
本研究证明,将模型指导的代谢工程与受控补料分批培养相结合,可大幅提高毕赤酵母中重组TCZ的产量。在FSEOF预测的靶点中,GTHO和TRDR的同时过表达对全长TCZ及其Fab片段的产量均有适度改善,表明增强细胞氧化还原平衡能力可支持异源抗体生产。更显著的改善通过生物过程优化实现,残余补料在生物量形成和产品产量方面优于脉冲补料。与摇瓶培养相比,全长TCZ产量在脉冲和残余补料下分别增加约16倍和22倍,而Fab产量分别增加约5倍和7.7倍。然而,全长TCZ产量始终低于Fab,表明完整抗体的生产仍受其更高的折叠、组装和分泌需求所限制。未来的改进可将当前代谢和补料策略与蛋白质折叠和分泌工程、减少蛋白水解降解以及糖基化工程相结合。蛋白酶缺陷型和糖基化工程毕赤酵母菌株已显示出改善分泌表达和生产具有哺乳动物样N-糖基化抗体的潜力。
编译者解读
该研究展示了"计算预测—实验验证—过程优化"的经典合成生物学范式。选择GTHO和TRDR这对氧化还原平衡靶点而非直接扩增抗体基因,体现了对宿主生理负担的理性考量——在异源蛋白高表达场景下,辅助因子供给往往比前体通量更易成为限速瓶颈。残余补料策略的显著优势则提示,底物供给模式对重组蛋白生产的调控可能超出代谢工程本身带来的增益。局限在于全长抗体产量仍处mg/L级别,远低于Fab,说明翻译后折叠与分泌环节才是真正的卡点,单纯代谢工程难以突破。
参考来源
期刊:Bioresource Technology Reports, 2026
DOI: 10.1016/j.biteb.2026.103137
DOI: 10.1016/j.biteb.2026.103137