来源:Rational design to enhance aflatoxin B1 degradation efficiencies of CotA laccase without the mediators(Biochemical Engineering Journal)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
黄曲霉毒素B1(AFB1)是I类致癌物,常污染食品与饲料。多数漆酶需氧化还原介体才能高效降解AFB1,成本高且限制其在食品体系中的应用。本研究以地衣芽孢杆菌CotA漆酶为起点,通过结构导向的理性设计引入四个突变(E445K、I477E、T258A、A367E),获得四重突变体E5,其比活力达0.70 U/mg,较野生型提高11.7倍,催化效率(kcat/Km)提高18.8倍,30分钟内降解98%的AFB1,且无需介体。分子对接揭示突变新增1个氢键和3个范德华接触,强化了底物结合。
研究背景
黄曲霉毒素(AF)主要由黄曲霉和寄生曲霉产生,属二氢呋喃香豆素衍生物。其中AFB1毒性最强,被国际癌症研究机构(IARC)列为I类致癌物,可损伤肾脏、脾脏和肠道组织,导致多器官功能障碍,沿人畜食物链造成经济损失并威胁公共健康与环境安全。传统物理化学脱毒方法受限于效率低、营养损失和二次污染。酶法生物降解在温和条件下运行,特异性高、环境友好,是AFB1脱毒的潜力替代方案。
漆酶是含铜多酚氧化酶,属多铜氧化酶家族,具有底物谱广、氧化还原电位较高、操作温度范围宽等特点。催化时底物在T1铜位点被氧化,电子经保守组氨酸残基传递至T2/T3三核铜簇,分子氧被还原为水。漆酶广泛分布于真菌、高等植物和细菌中。多数漆酶降解AFB1需氧化还原介体,增加成本并限制食品体系应用,因此开发无介体高效降解AFB1的漆酶具有实际意义。
研究方法
2.1 质粒、菌株、培养基与试剂
质粒pET-28a(+)用作突变CotA漆酶的表达载体。大肠杆菌DH5α和大肠杆菌BL21(DE3)分别用作克隆和表达宿主。AFB1购自普瑞邦公司(中国青岛)。
【数据】质粒:pET-28a(+);克隆宿主:E. coli DH5α;表达宿主:E. coli BL21(DE3);AFB1来源:Pribolab公司(青岛);原文未详述培养基配方。
2.2 表达质粒的构建
从NCBI数据库获取降解AFB1的CotA漆酶编码序列(GenBank登录号MK050971),作为野生型模板。合成的cotA基因连接至pET-28a(+)表达载体。
【数据】基因登录号:MK050971;载体:pET-28a(+);原文未详述连接酶、酶切位点及反应条件。
2.3 多策略理性设计CotA漆酶
参照Yan等人的方法预测候选突变位点。为评估单个替换如何影响酶-AFB1复合物的稳定性,在Discovery Studio中为对接复合物赋予CHARMM力场,对底物结合口袋内衬残基进行基于相互作用的虚拟氨基酸突变,以鉴定控制底物结合的关键氨基酸。仅保留计算突变能低于−0.5 kcal/mol的替换,因为较低的突变能表示更稳定的蛋白质结构。在所有测试位置中,E445K和I477E给出最低的突变能(分别为−0.62和−0.59 kcal/mol),因此被列为最稳定化突变,选作增强CotA漆酶与AFB1亲和力的潜在候选位点。携带相应突变的质粒导入大肠杆菌BL21(DE3)进行表达,E445K和I477E突变体分别命名为CotA漆酶E1和CotA漆酶E2。
随后使用AutoDock4进行CotA漆酶与AFB1的半柔性对接,对接结果用Discovery Studio Visualizer和PyMOL可视化。用NetSurfP 3.0服务器预测氨基酸残基的相对溶剂可及性,预测结果指导了T258A和A367E的靶向突变选择。根据NetSurfP 3.0预测,Thr258深埋,相对溶剂可及性(RSA)仅约18%。该位置的替换具有强突变效应,同时折叠仍能耐受该变化。相比之下,Ala367仅浅埋(RSA约29%),位于疏水核心外缘,可容纳带电荷侧链。在深埋位置,T258A仅移除羟基而保持主链完整,从而可以以最小扰动考察并修复深埋极性基团。在外围位置,A367E是功能获得性替换:Glu的长而柔性的带负电侧链可在更长距离上构建新盐桥,并将电荷移向溶剂。这种环境适合半暴露位置,同时改善稳定性、溶解性和静电导向。相应突变体分别命名为CotA漆酶E3和CotA漆酶E4。
【数据】突变能阈值:<−0.5 kcal/mol;E445K突变能:−0.62 kcal/mol;I477E突变能:−0.59 kcal/mol;Thr258 RSA:约18%;Ala367 RSA:约29%;软件:Discovery Studio(CHARMM力场)、AutoDock4、Discovery Studio Visualizer、PyMOL、NetSurfP 3.0;突变体命名:E1(E445K)、E2(I477E)、E3(T258A)、E4(A367E)。
2.4 四重突变体(E5)的构建
通过重叠延伸PCR将四个突变(E445K、I477E、T258A、A367E)引入CotA漆酶基因。以CotA漆酶E445K为模板,先通过突变成对组合构建双突变体;选择活性最高的组合构建三突变体。经顺序突变后获得四重突变体,命名为CotA漆酶E5(E445K/I477E/T258A/A367E)。
【数据】突变位点:E445K、I477E、T258A、A367E;方法:重叠延伸PCR;构建顺序:单突变→双突变→三突变→四突变;最终突变体:E5(E445K/I477E/T258A/A367E)。
2.5 CotA漆酶的表达与纯化
将重组质粒转化至大肠杆菌BL21(DE3),在补充0.1 mM IPTG和2 mM CuSO₄的LB培养基中于18 °C诱导蛋白表达。离心收获细胞,用0.9%(w/v)NaCl溶液洗涤,再用含50 mM NaH₂PO₄和300 mM NaCl的磷酸缓冲液(pH 7.4)洗涤以完全去除残留培养基,然后在含20 mM NaH₂PO₄、300 mM NaCl和10 mM咪唑的缓冲液(pH 7.4)中超声裂解。细胞裂解液于4 °C离心,通过Ni-NTA亲和层析纯化CotA漆酶,使用含300 mM NaCl和20 mM NaH₂PO₄的缓冲液(pH 7.4)中10至500 mM的咪唑梯度洗脱。纯化酶经超滤浓缩,蛋白浓度用BCA法测定。
【数据】诱导剂:0.1 mM IPTG;铜离子:2 mM CuSO₄;诱导温度:18 °C;洗涤液:0.9%(w/v)NaCl、50 mM NaH₂PO₄ + 300 mM NaCl(pH 7.4);裂解缓冲液:20 mM NaH₂PO₄ + 300 mM NaCl + 10 mM咪唑(pH 7.4);离心温度:4 °C;纯化方法:Ni-NTA亲和层析;咪唑梯度:10–500 mM;蛋白定量:BCA法。
2.6 CotA漆酶活性分析
一个AFB1氧化活性单位定义为在标准测定条件下每分钟氧化1 μg AFB1所需的酶量。漆酶活性按Guo等人的方案测定。反应体系(500 μL)含10 μL酶液(5.13 mg/mL)、10 μL AFB1(10 μg/mL)、2 mM CuSO₄和480 μL 50 mM甘氨酸-NaOH缓冲液(pH 9)。对照组以相同方式制备,但用10 μL缓冲液替代酶液,使对照仅含AFB1和缓冲液;所有其他条件与酶反应相同。此外,将携带空pET-28a(+)载体的未诱导大肠杆菌BL21(DE3)细胞经相同纯化程序获得的Ni-NTA洗脱液用作酶对照,在与酶样品完全相同的条件下测定。37 °C孵育30 min后,加入500 μL甲醇终止反应,冰上孵育10 min。混合物经0.22 μm有机相滤膜过滤,残余AFB1用高效液相色谱(HPLC)定量,系统为Thermo Scientific™ UltiMate™ 3000,配备FLD-3100荧光检测器(激发360 nm,发射440 nm)。分离在WondaSil-C18柱(150 × 4.6 mm,5 μm)上进行,流动相为乙腈–0.1%(v/v)甲酸(4:6,v/v),柱温30 °C,进样体积20 μL,流速1.0 mL/min。AFB1乙腈标准储备液(0.05–0.30 μg/mL)用于生成定量标准曲线,用于测定反应混合物中残余AFB1浓度。
【数据】酶液:10 μL(5.13 mg/mL);AFB1:10 μL(10 μg/mL);CuSO₄:2 mM;缓冲液:480 μL 50 mM甘氨酸-NaOH(pH 9);反应总体积:500 μL;孵育:37 °C、30 min;终止:500 μL甲醇、冰上10 min;过滤:0.22 μm有机相滤膜;HPLC:UltiMate 3000 + FLD-3100;激发/发射:360/440 nm;色谱柱:WondaSil-C18(150 × 4.6 mm,5 μm);流动相:乙腈–0.1%甲酸(4:6,v/v);柱温:30 °C;进样:20 μL;流速:1.0 mL/min;标准曲线:0.05–0.30 μg/mL。
2.7 最适温度、pH和热稳定性的测定
为测定最适温度,将2.6节所述反应体系(共500 μL,含10 μL酶液(5.13 mg/mL)、10 μL AFB1(10 μg/mL)、2 mM CuSO₄和480 μL 20 mM Tris-HCl缓冲液(pH 7.4))在50–90 °C孵育30 min,然后测定残余活性。为测定最适pH,将2.6节所述反应体系(共500 μL,含10 μL酶液(5.13 mg/mL)、10 μL AFB1(10 μg/mL)、2 mM CuSO₄和480 μL相应缓冲液)在37 °C孵育30 min。所用缓冲液为50 mM Na₂HPO₄-柠檬酸缓冲液(pH 4.2–6.0)、50 mM Tris-HCl缓冲液(pH 7–9)和50 mM甘氨酸-NaOH缓冲液(pH 9–11),分别覆盖酸性、中性和碱性条件。然后测定残余活性。热稳定性分析时,将酶在80 °C、pH 9(50 mM甘氨酸-NaOH缓冲液)孵育10–180 min,然后置于冰上60 s。用2.6节所述反应体系(共500 μL,含10 μL酶液(5.13 mg/mL)、10 μL AFB1(10 μg/mL)、2 mM CuSO₄和480 μL 50 mM甘氨酸-NaOH缓冲液(pH 9))测定残余活性。未孵育酶在其最适pH下的活性定义为100%。
【数据】最适温度测定:50–90 °C、30 min、20 mM Tris-HCl(pH 7.4);最适pH测定:37 °C、30 min;缓冲液:50 mM Na₂HPO₄-柠檬酸(pH 4.2–6.0)、50 mM Tris-HCl(pH 7–9)、50 mM甘氨酸-NaOH(pH 9–11);热稳定性:80 °C、pH 9、10–180 min、冰上60 s;相对活性基准:未孵育酶最适pH活性=100%。
2.8 动力学参数的测定
动力学参数在pH 9和37 °C下测定,AFB1浓度范围为15至180 μM。米氏常数(Km)、转换数(kcat)和催化效率(kcat/Km)通过Lineweaver–Burk双倒数图的线性回归得出。所有测定……
【数据】pH:9;温度:37 °C;AFB1浓度范围:15–180 μM;分析方法:Lineweaver–Burk双倒数图线性回归;原文此段末尾不完整。
研究结果
3.1 单位点突变体的催化特性
为在组合前解析各突变的贡献,首先表征了四个单位点突变体(E1–E4)。由于两个对照给出相同结果,即缓冲液对照和Ni-NTA洗脱液对照中均未观察到AFB1的可检测损失,因此这两个对照不单独报告,在所有数据中作为单一对照呈现。如图1所示,野生型酶和突变体E1、E2、E4的最适温度为80 °C、最适pH为9,而E3的最适pH偏移至8;所有变体因此在碱性范围内保持最适活性。在pH 9和37 °C下,E1、E2和E4的比活力分别达到0.29、0.16和0.26 U/mg(图1a),E3在pH 8下达到0.08 U/mg,较野生型酶(0.06 U/mg)提高1.3至4.8倍。这些改善可归因于突变诱导的酶-底物界面变化:E445K和I477E改变活性位点的电荷和疏水性,优化与底物的相互作用界面,从而降低反应结合能;T258A则可能改变表面静电势并稳定活性中心构象,同时拓宽酶的功能pH范围。这些单位点改善与早期细菌漆酶定点突变研究一致,其中底物结合口袋或T1铜中心附近的突变显著增强催化活性。E1–E4贡献不均也暗示四个突变作用于不同的限速性状,因此将它们组合在单一变体中预期产生更大幅度的增益。
热稳定性是漆酶工业应用的关键标准。在pH 9和80 °C孵育10 min后,野生型酶仅保留30%的初始活性,而E1和E2保留超过45%,E3和E4超过50%。120 min后,野生型酶几乎完全失活,而突变体仍保留约20%的活性(图2)。因此所有四个单位点突变均显著增强CotA漆酶的热稳定性。这种行为与真菌漆酶在碱性条件下高温快速失活的一般观察一致,而大多数细菌漆酶在此类条件下表现出优越的热稳定性。工程化CotA漆酶保留了这一细菌优势,同时获得改善的催化活性。这种增强的热稳定性对AFB1脱毒高度相关,因为实际食品和饲料加工常涉及高温和碱性条件。
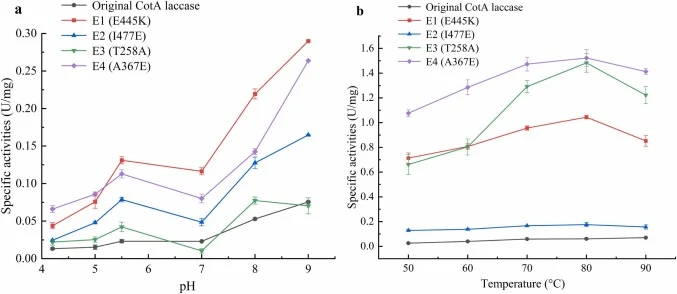
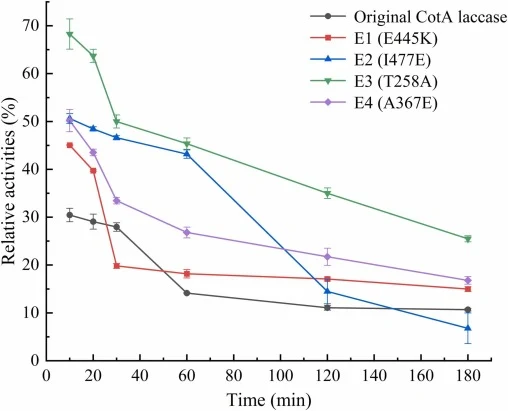
【数据】最适温度:野生型、E1、E2、E4为80 °C;最适pH:野生型、E1、E2、E4为9,E3为8;比活力(pH 9、37 °C):E1=0.29 U/mg,E2=0.16 U/mg,E4=0.26 U/mg,E3(pH 8)=0.08 U/mg,野生型=0.06 U/mg;提高倍数:1.3–4.8倍;热稳定性(pH 9、80 °C、10 min):野生型保留30%,E1、E2>45%,E3、E4>50%;120 min:野生型几乎完全失活,突变体保留约20%。
3.2 四重突变体E5的无介体降解效率
由于四个突变改善不同的催化性状,将它们顺序组合为四重突变体E5(E445K/I477E/T258A/A367E),预期各有益突变可加性或协同作用。E5保留了亲本的碱性最适条件,在pH 9和80 °C下显示最高活性(图3)。在pH 9和37 °C下,孵育30 min后其比活力达到0.70 U/mg(图3a),较野生型酶提高11.7倍。作为比较,E5还与文献报道的无介体漆酶进行了基准对比:其比活力显著高于表1中汇总的数值。此外,E5在pH 9和80 °C孵育10 min后保留35%的初始活性,超过野生型酶的稳定性(图4)。重要的是,E5在pH 9和37 °C下30 min内降解98%的AFB1,性能优于已报道的酶(表1)。尽管四个单位点突变体E1–E4各自显示改善的热稳定性,但四重突变体E5的热稳定性低于单位点突变体。这种行为可解释为四个位置最可能位于同一结构域内的同一稳定化网络中,因此 underlying 机制冗余且容易饱和。第一个突变已耗尽这些位置可用的稳定化增益。当进一步突变叠加其上时,额外的侧链倾向于破坏彼此的盐桥和氢键。由于累积的刚性化,构象张力和范德华排斥也积累,提高天然态的焓并降低可用的构象熵。当用双突变循环描述组合时,每个单突变贡献的增益因此被部分抵消,甚至被大的负耦合自由能超过,对应于负上位效应。这些结果表明,组合理性选择的突变可克服漆酶介导AFB1降解的介体依赖性,同时保持优异的热稳定性。在文献中,无介体漆酶通常需要相当长的反应时间才能达到可比的AFB1去除率,例如解淀粉芽孢杆菌B10漆酶和杏鲍菇Ery4漆酶;E5在30 min内近乎完全降解AFB1因此代表工业应用的明显优势。然而,这一优势被E5的碱性最适pH所抵消,限制了其在食品和饲料应用中的直接使用。大多数食品基质和牲畜消化道为中性至酸性,酶的催化活性与其活性位点残基的pH依赖性质子化状态密切相关。这一限制仍可通过调整加工过程中的pH来解决。待处理物料的水相可简单地通过添加食品级碱如碳酸钠或氢氧化钙,或将酶引入现有碱性工艺步骤,调至与E5最适条件匹配的碱性范围。这样,反应在有利于酶的条件下进行而不改变产品性质。两个例子说明这种pH控制的实用性。在食品加工中,固定化漆酶已被证明可有效脱毒花生粕中的AFB1,表明污染食品和饲料物料可在水相工艺步骤中直接处理,其pH可调整以匹配酶。在畜牧业中,负载消化酶的藻酸盐-壳聚糖珠保护生物催化剂免受酸性胃液影响,并在模拟肠道环境中释放活性酶,证明可利用消化道沿线的pH梯度将pH敏感酶递送至所需部位。E5的碱性偏好因此可通过选择或创建工艺中的碱性阶段来适应,在此阶段其高活性和优异热稳定性均可充分利用。
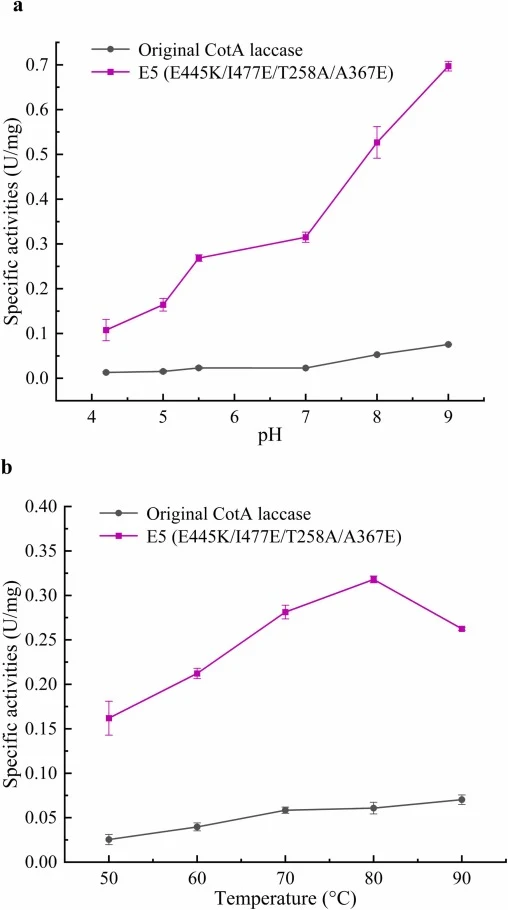
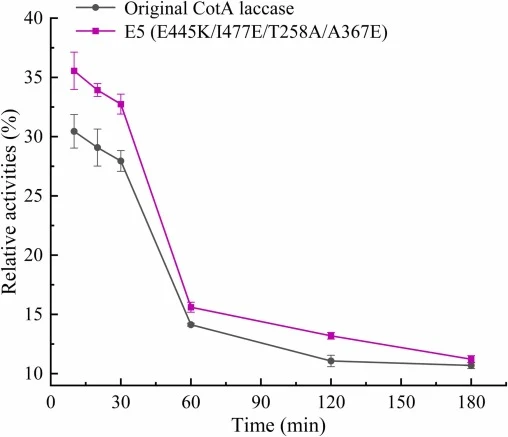
【数据】突变组合:E445K/I477E/T258A/A367E;最适条件:pH 9、80 °C;比活力(pH 9、37 °C、30 min):0.70 U/mg;较野生型提高:11.7倍;热稳定性(pH 9、80 °C、10 min):E5保留35%;AFB1降解率:30 min内98%(pH 9、37 °C);单位点突变体热稳定性:E1、E2>45%,E3、E4>50%(10 min);E5热稳定性低于单位点突变体。
3.3 CotA漆酶E5的动力学参数
为定量了解催化改善,在pH 9和37 °C下测定动力学参数(图5,表2)。野生型酶的Km、kcat和kcat/Km值分别为177 ± 40 μM、0.050 ± 0.007 s−1和(2.8 ± 0.8) × 10² M−1 s−1,而E5的相应值为146 ± 37 μM、0.77 ± 0.11 s−1和(5.3 ± 1.5) × 10³ M−1 s−1。由于Km反映底物亲和力,kcat/Km反映整体催化效率,这些数据表明E5更紧密地结合AFB1,更重要的是,底物转换速率大幅……
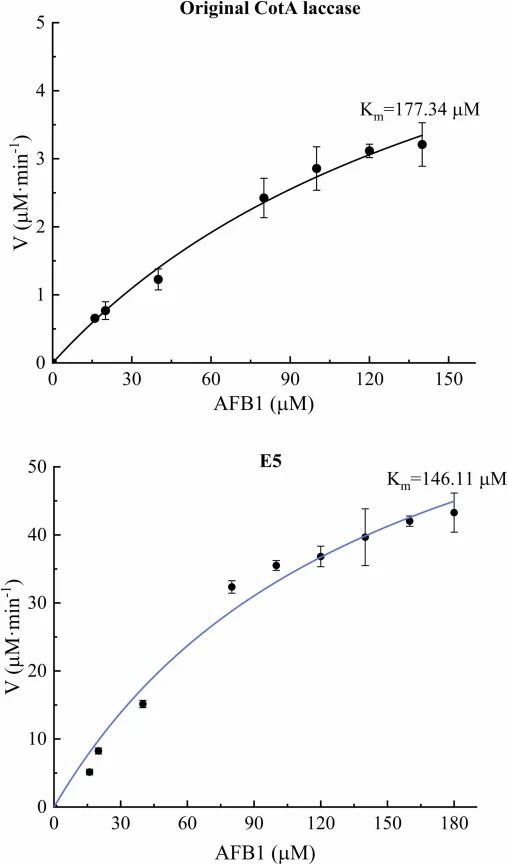
【数据】野生型:Km=177 ± 40 μM,kcat=0.050 ± 0.007 s−1,kcat/Km=(2.8 ± 0.8) × 10² M−1 s−1;E5:Km=146 ± 37 μM,kcat=0.77 ± 0.11 s−1,kcat/Km=(5.3 ± 1.5) × 10³ M−1 s−1;测定条件:pH 9、37 °C;原文此段末尾不完整。
讨论与解读
本研究采用结构导向的理性设计,在体外定义条件下工程化改造CotA漆酶,增强其无介体AFB1降解活性。四个理性选择的突变(E445K、I477E、T258A、A367E)组合产生四重突变体E5,其比活力(0.70 U/mg)、热稳定性和催化效率(kcat/Km提高18.8倍)均较野生型酶大幅改善。E5在标准测定体系(50 mM甘氨酸-NaOH缓冲液,pH 9,37 °C)中无介体条件下30 min内降解98%的AFB1。对接分析显示,突变通过新增1个氢键和3个范德华接触扩展了酶-底物相互作用网络。两个主要氧化产物鉴定为AFQ1及其C-3差向异构体epi-AFQ1。这些结果表明E5具有增强的AFB1降解能力,并指向其作为食品和饲料应用中无介体生物催化剂进行AFB1脱毒的潜力,这一前景得到以下发现的支持:这两种产物不降低人肝细胞活力或诱导凋亡。然而,本研究中AFB1降解产物的毒性迄今仅由支持性文献验证,酶尚未在真实食品或饲料基质中测试。直接毒性评估(Ames试验、基于细胞的测定和动物研究)以及验证……
编译者解读:该研究以计算辅助的理性设计替代定向进化,用四个突变实现11.7倍比活力提升和18.8倍催化效率提升,且无需介体,在成本敏感的食品饲料领域具有吸引力。但E5最适pH为9,与多数食品基质和消化道的中酸性环境错配,实际应用需依赖工艺pH调控或固定化策略。此外,产物毒性仅靠文献支撑,缺乏真实基质验证,距离工业落地仍有距离。
参考来源
期刊:Biochemical Engineering Journal, 2027
DOI: 10.1016/j.bej.2026.110427
DOI: 10.1016/j.bej.2026.110427