来源:Production of phloretin by multi-module carbon flux rewiring in Saccharomyces cerevisiae(Bioresource Technology)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
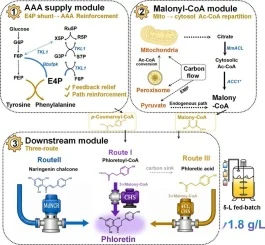
根皮素是一种高价值的二氢查尔酮,在医药、化妆品和食品行业需求旺盛,但植物提取受限于产量低、纯化复杂。本研究在酿酒酵母中通过多模块碳流重编程实现了根皮素的高水平从头合成:下游模块构建了包含两条直接成根皮素路线和一条根皮酸回收路线的三路线网络,上游模块强化了芳香族氨基酸和胞质丙二酰辅酶A的供给。最终工程菌株在摇瓶中产量达460.6 mg/L,5 L补料分批发酵达1.817 g/L,为目前酵母中报道的最高从头合成滴度。
研究背景
根皮素具有抗氧化、抗炎、抗癌和抗菌等多种生物活性。目前商业化供应仍主要依赖植物提取,受制于植物中含量低、季节波动大以及纯化成本高等问题。化学合成虽可行,但多步反应和选择性难题使其难以用于可持续的大规模生产。微生物生物合成因此成为有吸引力的替代方案。酿酒酵母因能支持真核膜蛋白表达,已被广泛用于黄酮类化合物的生产,尤其适合植物苯丙烷代谢途径的重建。
然而,酵母中高效的根皮素从头合成仍面临困难。在经典路线中,4-香豆酰辅酶A被还原为根皮酰辅酶A,再与丙二酰辅酶A缩合形成根皮素。但查尔酮合酶也可将4-香豆酰辅酶A导向柚皮素查尔酮进而生成柚皮素,形成强竞争分支。同时,根皮酰辅酶A可被水解为根皮酸,构成第二大碳汇。已有微生物研究尚未实现高滴度根皮素生产,亟需对分支点通量、副产物回收和前体供给进行协同调控。
研究方法
2.1 菌株、质粒与生化试剂
所有工程酵母菌株均源自酿酒酵母BY4741。菌株Y22为前期构建并保存于菌种保藏库中。大肠杆菌DH5α用作质粒扩增和构建的宿主。本研究所用质粒、菌株、向导RNA、引物及密码子优化基因均见补充材料。高保真DNA聚合酶购自ABclonal(中国武汉)。Rapid Taq预混液、BsaI限制性内切酶和T4 DNA连接酶购自Vazyme(中国南京)。根皮素(SP8230)、柚皮素(SN8020)、p-香豆酸(SC8030)和根皮酸(IP0890)分析标准品购自Solarbio(中国北京)。所有寡核苷酸引物由GENEWIZ(中国苏州)商业合成。
【数据】菌株:酿酒酵母BY4741、Y22、大肠杆菌DH5α;试剂:高保真DNA聚合酶(ABclonal)、Rapid Taq预混液、BsaI、T4 DNA连接酶(Vazyme);标准品:根皮素SP8230、柚皮素SN8020、p-香豆酸SC8030、根皮酸IP0890(Solarbio);引物合成:GENEWIZ
2.2 培养条件
携带染色体基因整合或敲除的工程酵母菌株常规培养于YPD培养基(10 g/L酵母提取物、20 g/L蛋白胨和20 g/L葡萄糖)。携带KanMX标记过表达质粒的菌株培养于添加G418(200 μg/mL)的YPD中以维持质粒保留。酿酒酵母培养物在30 °C、250 rpm振荡条件下孵育。YPD培养基灭菌前pH调节至5.8–6.0。携带成功基因整合或敲除的酵母转化子在添加G418(400 μg/mL)的SD–Ura琼脂平板上筛选。SD固体培养基组成如下:20 g/L葡萄糖、1.7 g/L不含硫酸铵和氨基酸的酵母氮源(YNB)、1.1 g/L谷氨酸钠和20 g/L琼脂。大肠杆菌培养于Luria-Bertani(LB)液体培养基,含10 g/L胰蛋白胨、5 g/L酵母提取物和10 g/L NaCl。阳性大肠杆菌转化子在添加氨苄青霉素(100 μg/mL)的LB琼脂平板上筛选,随后在LB液体培养基中于37 °C、220 rpm振荡培养以扩增质粒。
【数据】培养基:YPD(10 g/L酵母提取物、20 g/L蛋白胨、20 g/L葡萄糖);G418浓度:200 μg/mL(液体培养)、400 μg/mL(SD–Ura筛选);温度:30 °C(酵母)、37 °C(大肠杆菌);转速:250 rpm(酵母)、220 rpm(大肠杆菌);pH:5.8–6.0;SD培养基:20 g/L葡萄糖、1.7 g/L YNB、1.1 g/L谷氨酸钠、20 g/L琼脂;氨苄青霉素:100 μg/mL
2.3 分子操作
常规分子生物学操作如基因克隆、质粒转化和琼脂糖凝胶电泳采用已有方法进行。用于模板扩增的质粒通过Gibson组装构建。所有启动子、内源基因和终止子均以酿酒酵母BY4741基因组为模板扩增。质粒骨架pCEV-G1-Km通过同源重组将其天然启动子PTEF1和PPGK1替换为半乳糖诱导型启动子PGAL1和PGAL10,生成质粒pCEV-Gal-Km。该质粒作为组装MdNCR表达盒的穿梭载体;异源基因克隆于PGAL1启动子和TCYC1终止子之间,构建酿酒酵母功能表达载体。底盘菌株中GAL80被敲除,解除了Gal80对Gal4的抑制。但葡萄糖阻遏在葡萄糖存在时仍活跃;因此,强PGAL1/PGAL10驱动的表达主要在葡萄糖接近耗尽时启动,根皮素生产相应地在培养约11–16 h时开始(见补充材料)。酿酒酵母中的遗传修饰包括基因敲除和染色体整合,通过CRISPR-Cas9系统实现。DNA导入酵母细胞采用标准醋酸锂/单链载体DNA/聚乙二醇(LiAc/SS-DNA/PEG)化学转化方案,稳定的基因组修饰由酵母内源同源重组机制介导。对于基因敲除,用于同源重组的线性DNA片段使用约90个碱基长度的引物扩增。对于基因整合,含完整表达盒的供体DNA片段通过PCR从质粒模板扩增,使用约90 bp引物,设计有侧翼于目标基因组位点的5′同源臂(60–75 bp)。所有sgRNA序列使用CHOPCHOP在线工具设计。构建特定gRNA质粒时,互补sgRNA寡核苷酸退火后使用T4 DNA连接酶连接至BsaI消化的线性化p426-SgSH载体片段中。
【数据】质粒骨架:pCEV-G1-Km改造为pCEV-Gal-Km;启动子:PGAL1、PGAL10;终止子:TCYC1;敲除基因:GAL80;同源臂长度:60–75 bp;引物长度:约90 bp;转化方法:LiAc/SS-DNA/PEG;sgRNA设计工具:CHOPCHOP;限制性内切酶:BsaI;连接酶:T4 DNA连接酶;根皮素生产起始时间:培养约11–16 h
2.4 摇瓶发酵
为启动预培养,从YPD琼脂平板(或含G418的YPD琼脂平板用于携带质粒的菌株)上挑取酿酒酵母单菌落,接种至2 mL YPD液体培养基。对于携带质粒的菌株,G418添加至终浓度200 μg/mL。培养24 h后(OD600 ≈ 8),将10%(v/v)培养物转接至新鲜YPD培养基(需要时含200 μg/mL G418)生成二级种子培养物,继续孵育12 h。二级种子培养物随后用于接种25 mL发酵培养基至初始OD600为0.05。摇瓶发酵在30 °C、250 rpm轨道振荡条件下进行96 h。
【数据】预培养体积:2 mL YPD;G418浓度:200 μg/mL;预培养时间:24 h(OD600 ≈ 8);转接比例:10%(v/v);二级种子培养时间:12 h;发酵体积:25 mL;初始OD600:0.05;温度:30 °C;转速:250 rpm;发酵时间:96 h
2.5 代谢物提取与HPLC分析
代谢物提取时,向发酵液样品中加入等体积无水乙醇,涡旋30 s,12,000 rpm离心5 min。收集上清液,通过0.22-μm膜过滤,−20 °C保存待分析。色谱分离和定量使用Agilent 1260 Infinity II HPLC系统,配备Thermo Scientific C18柱(150 mm × 4.6 mm,5 μm)。流动相A为含0.1%(v/v)甲酸的水溶液,流动相B为乙腈。梯度洗脱程序如下:0–10 min,10%流动相B;10–20 min,10%–40%流动相B;20–23 min,40%流动相B;23–25 min,40%–10%流动相B;25–30 min,10%流动相B。柱温维持30 °C,流速0.5 mL/min,进样体积10 μL,UV检测波长280 nm。定量使用标准品外标校准曲线。代表性发酵样品进一步通过液相色谱-质谱联用确认(见补充材料)。
【数据】提取方法:等体积无水乙醇、涡旋30 s、12,000 rpm离心5 min、0.22-μm过滤、−20 °C保存;HPLC系统:Agilent 1260 Infinity II;色谱柱:Thermo Scientific C18(150 mm × 4.6 mm,5 μm);流动相A:0.1%甲酸水溶液;流动相B:乙腈;流速:0.5 mL/min;柱温:30 °C;进样量:10 μL;检测波长:280 nm;梯度:0–10 min 10%B,10–20 min 10%–40%B,20–23 min 40%B,23–25 min 40%–10%B,25–30 min 10%B
2.6 5 L补料分批发酵
补料分批发酵过程通过选取工程酿酒酵母菌株新鲜菌落接种10 mL YPD预培养物,培养24 h启动。将全部预培养物转接至500 mL摇瓶中的100 mL YPD培养基,继续孵育24 h生成二级种子。取10%(v/v)二级种子接种至含1.5 L YPD培养基的5 L生物反应器(T&J Bioengineering,中国上海),初始OD600为1.0–1.5。初始批次培养基组成为10 g/L酵母提取物、20 g/L蛋白胨和25 g/L葡萄糖。发酵在30 °C进行132 h。pH使用40% NH4OH和10% HCl自动维持于5.0。恒定空气流速1.5 vvm,搅拌速度从200调整至900 rpm以维持溶解氧水平高于30%。为支持高密度细胞生长,从12至72 h每6 h脉冲补加酵母提取物至终浓度10 g/L。初始葡萄糖耗尽后,启动浓缩补料液以维持残糖浓度低于0.5 g/L。补料液含500 g/L葡萄糖、7 g/L K2SO4、18 g/L KH2PO4、5 g/L MgSO4、0.56 g/L Na2SO4、10 mL/L微量元素溶液和24 mL/L维生素溶液。微量元素溶液含15 g/L EDTA、10.2 g/L ZnSO4·7H2O、0.5 g/L MnCl2·4H2O、0.5 g/L CuSO4、0.86 g/L CoCl2·6H2O、0.56 g/L Na2MoO4·2H2O、3.84 g/L CaCl2·2H2O和5.12 g/L FeSO4·7H2O。维生素溶液含0.05 g/L生物素、1 g/L泛酸钙、1 g/L烟酸、25 g/L肌醇、1 g/L盐酸硫胺素、1 g/L盐酸吡哆醇。
【数据】预培养:10 mL YPD、24 h;二级种子:100 mL YPD、500 mL摇瓶、24 h;接种比例:10%(v/v);生物反应器:5 L(T&J Bioengineering);装液量:1.5 L YPD;初始OD600:1.0–1.5;初始培养基:10 g/L酵母提取物、20 g/L蛋白胨、25 g/L葡萄糖;温度:30 °C;时间:132 h;pH:5.0(40% NH4OH/10% HCl);空气流速:1.5 vvm;搅拌:200–900 rpm;溶解氧:>30%;酵母提取物脉冲补加:12–72 h每6 h至终浓度10 g/L;残糖:<0.5 g/L;补料液:500 g/L葡萄糖、7 g/L K2SO4、18 g/L KH2PO4、5 g/L MgSO4、0.56 g/L Na2SO4、10 mL/L微量元素、24 mL/L维生素
研究结果
3.1 通过柚皮素查尔酮还原酶途径将柚皮素通量重定向至根皮素
前期开发的菌株Y22首先作为从头合成柚皮素的基线底盘,通过表达FjTAL、At4CL1和HyaCHS建立柚皮素形成途径(NAR途径)。在该系统中,柚皮素查尔酮可自发环化为柚皮素,导致柚皮素滴度为8.9 mg/L(图1B)。值得注意的是,在同一菌株中,酿酒酵母天然酶Tsc13催化p-香豆酰辅酶A还原为根皮酰辅酶A(图1A,路线I),该产物也可被HyaCHS接受,导致根皮素滴度为8.5 mg/L(图1B)。由于HyaCHS可同时接受p-香豆酰辅酶A(形成柚皮素查尔酮)和根皮酰辅酶A(形成根皮素),柚皮素(8.9 mg/L)和根皮素(8.5 mg/L)的相似滴度表明CHS步骤是主要通量分配节点,底物竞争将碳从根皮素形成中分流。
因此,引入一条非经典还原路线将柚皮素查尔酮直接转化为根皮素。近期在苹果中鉴定到一条根皮素生物合成旁路,其中柚皮素查尔酮被柚皮素查尔酮还原酶MdNCR还原为根皮素。为测试该旁路能否在有氧酵母底盘中有功能,首先在菌株Y22中从质粒过表达两个同源苹果柚皮素查尔酮还原酶异构体MdNCRa和MdNCRb,分别生成Y22Nap和Y22Nbp。与亲本Y22相比,MdNCR过表达使根皮素滴度增至11.8 mg/L和12.5 mg/L,同时柚皮素滴度降至7.7 mg/L和6.9 mg/L(图1B)。产物谱的此消彼长与查尔酮节点的通量重定向一致,表明MdNCR开始将柚皮素查尔酮导向根皮素而非使其环化为柚皮素(图1A,路线II)。然而,提升幅度仍然有限,暗示质粒表达下MdNCR表达稳定性可能限制有效途径导向。
因此,为减少质粒维持负担并稳定表达,将MdNCRa或MdNCRb分别整合到Y22基因组中,得到Y22Na和Y22Nb。基因组整合显著将通量转向根皮素,滴度显著增至34.2 mg/L和35.0 mg/L,同时柚皮素急剧降至1.3 mg/L和1.1 mg/L(图1B)。总体而言,MdNCR异源表达通过在查尔酮节点截获柚皮素查尔酮并将通量重新导向根皮素形成,在酿酒酵母中建立了更高效的根皮素生物合成路线,从而减少了对CHS特异性工程的依赖,并将途径限制转向下游碳损失反应和上游前体供给,特别是源自芳香族氨基酸的p-香豆酸。相比之下,根皮酸和p-香豆酸维持在相对较低水平,在此阶段未显示显著再分配。这表明MdNCR的主要效应发生在查尔酮节点,而非通过上游前体积累或下游副产物形成的广泛变化(见补充材料)。
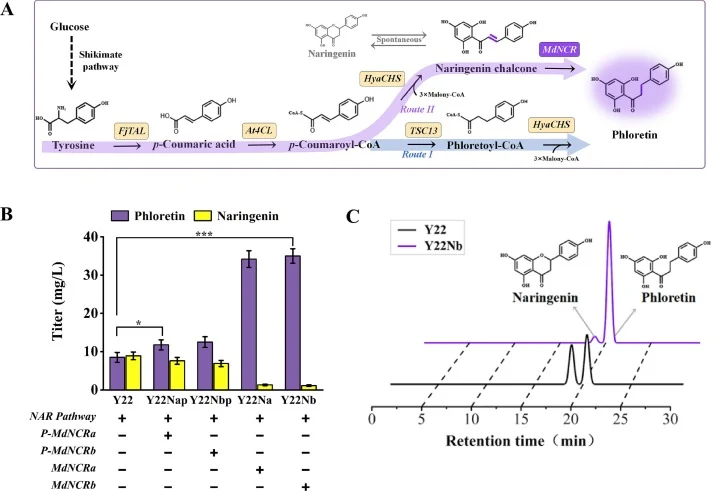
【数据】基线菌株Y22:柚皮素8.9 mg/L、根皮素8.5 mg/L;Y22Nap(质粒MdNCRa):根皮素11.8 mg/L、柚皮素7.7 mg/L;Y22Nbp(质粒MdNCRb):根皮素12.5 mg/L、柚皮素6.9 mg/L;Y22Na(基因组整合MdNCRa):根皮素34.2 mg/L、柚皮素1.3 mg/L;Y22Nb(基因组整合MdNCRb):根皮素35.0 mg/L、柚皮素1.1 mg/L;菌株:Y22、Y22Nap、Y22Nbp、Y22Na、Y22Nb;基因:FjTAL、At4CL1、HyaCHS、MdNCRa、MdNCRb、Tsc13
3.2 PAL途径强化后将根皮酸通量导向根皮素
为增加p-香豆酸供给并驱动通量流向根皮素,通过整合来自拟南芥的AtPAL2、AtC4H和AtATR2以及酿酒酵母天然细胞色素b5(CYB5),将经典苯丙氨酸至p-香豆酸模块(PAL途径)引入Y22Nb(图2A),生成菌株Y222。出乎意料的是,根皮素滴度仅增至45.7 mg/L(+30.6%),而柚皮素仍维持在1.5 mg/L的低水平(图2B)。相比之下,PAL途径强化在酵母和其他宿主中通常导致黄酮类产量提升≥2倍,表明前体供给并非该底盘的唯一限制。
为探究此有限增益的代谢基础,对途径中间体和主要副产物进行了定量(图2B)。值得注意的是,Y222中p-香豆酸仍维持低位(0.94 mg/L),相对Y22Nb(0.53 mg/L)仅增加0.41 mg/L,表明引入的PAL模块未导致明显的前体积累。前期工作提示根皮酰辅酶A可通过酿酒酵母中未知酶快速脱辅酶A化生成根皮酸。苯丙氨酸/酪氨酸衍生通量可转化为p-香豆酸,随后被4CL活化为p-香豆酰辅酶A并被天然酶Tsc13还原为根皮酰辅酶A。与此路线一致,HPLC分析显示Y222中根皮酸显著积累,达291.2 mg/L,较Y22Nb的142.3 mg/L增加105.1%(图2B)。这些结果支持以下假说:PAL途径引入的上游通量增加大部分被导向根皮酸碳汇,从而将碳从生产性根皮素形成中分流。因此,优先采取减轻根皮酸形成的策略以提高途径效率。
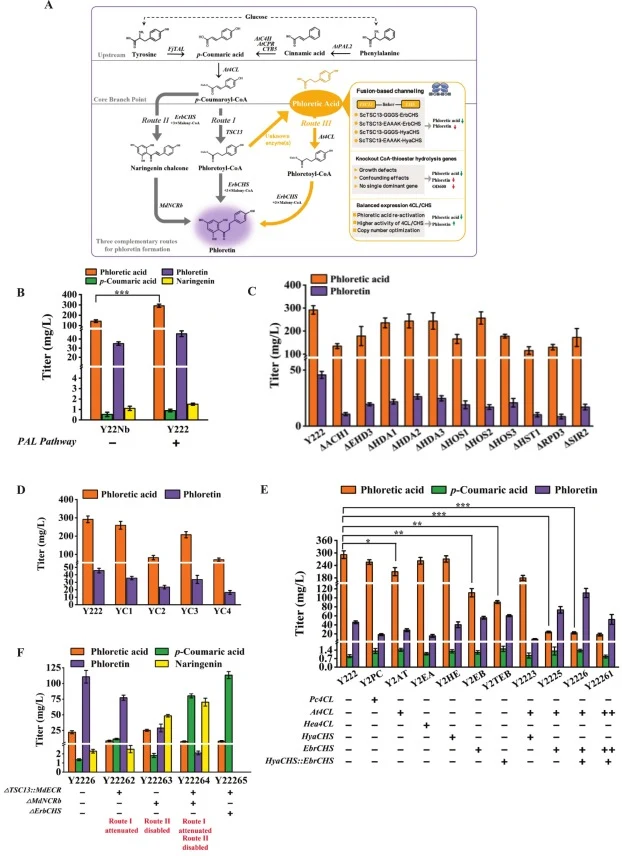
【数据】菌株Y222:根皮素45.7 mg/L(+30.6%)、柚皮素1.5 mg/L、p-香豆酸0.94 mg/L;Y22Nb:p-香豆酸0.53 mg/L、根皮酸142.3 mg/L;Y222根皮酸:291.2 mg/L(+105.1%);基因:AtPAL2、AtC4H、AtATR2、CYB5;p-香豆酸增量:0.41 mg/L
3.2.1 基于TSC13-CHS融合的通道化及候选CoA硫酯水解基因筛选
根皮酸积累的一个可能原因是CHS对根皮酰辅酶A的捕获效率低,使该反应性中间体被导向CoA硫酯水解。为促进根皮酰辅酶A的快速利用,采用基于邻近效应的通道化策略,在菌株Y222中构建TSC13–CHS融合蛋白(图2A)。具体而言,将TSC13与ErbCHS(据报道有利于根皮素形成)或HyaCHS融合,使用柔性连接肽(GGGS)或刚性连接肽(EAAAK)。与预期相反,TSC13–CHS融合未增强通向根皮素的通量(图2C)。尽管融合菌株YC1、YC2、YC3和YC4中根皮酸滴度下降(259.2 mg/L、82.5 mg/L、207.9 mg/L和71.2 mg/L),根皮素滴度也下降而非上升(35.6 mg/L、23.6 mg/L、33.8 mg/L和16.4 mg/L)。这些结果表明,Tsc13与CHS之间的强制邻近不足以改善生产性导向,在某些配置中可能损害了整体途径容量。CHS作为同源二聚体发挥功能,具有复杂的活性位点结构以支持多次脱羧缩合。融合蛋白策略可能干扰了CHS四级结构的正确组装,或刚性/柔性连接肽可能限制了活性位点内必需的构象动态。此外,Tsc13是内质网膜定位蛋白,而CHS通常位于胞质。强制共定位可能导致空间位阻或阻碍底物进入。总体而言,这些观察表明直接TSC13–CHS融合不是缓解该底盘中根皮酸碳汇的有效方法。
由于根皮酸被认为来自根皮酰辅酶A的CoA硫酯水解,通过敲除参与CoA硫酯水解的候选基因来靶向该碳损失路线(图2D)。在敲除面板中,许多靶标对细胞适应性至关重要,其缺失导致生长缺陷并伴随产量下降。尽管若干敲除显示较低的根皮酸水平(图2D),但相关的活力丧失和代谢能力下降使得难以区分直接稳定化效应与间接效应。
【数据】融合菌株:YC1(259.2 mg/L根皮酸、35.6 mg/L根皮素)、YC2(82.5 mg/L根皮酸、23.6 mg/L根皮素)、YC3(207.9 mg/L根皮酸、33.8 mg/L根皮素)、YC4(71.2 mg/L根皮酸、16.4 mg/L根皮素);连接肽:GGGS(柔性)、EAAAK(刚性);融合蛋白:TSC13–ErbCHS、TSC13–HyaCHS;菌株:Y222
3.3 强化芳香族氨基酸供给以提高根皮素形成
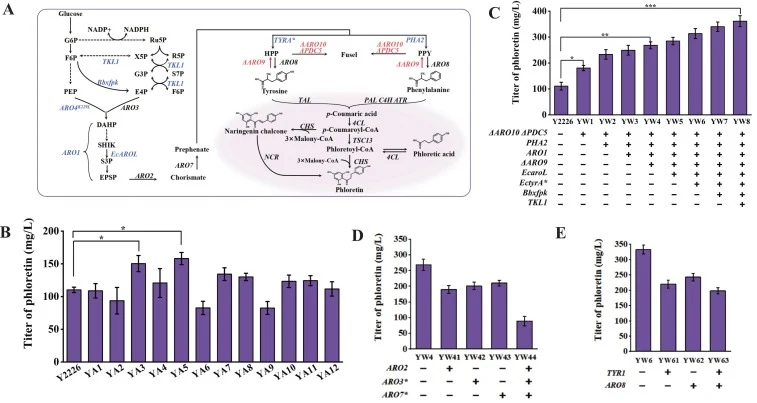
(图3展示了增加酪氨酸和苯丙氨酸前体供给的代谢工程策略,包括通过突变酶表达解除反馈抑制等关键干预。)
3.4 增强胞质丙二酰辅酶A供给以促进根皮素生物合成
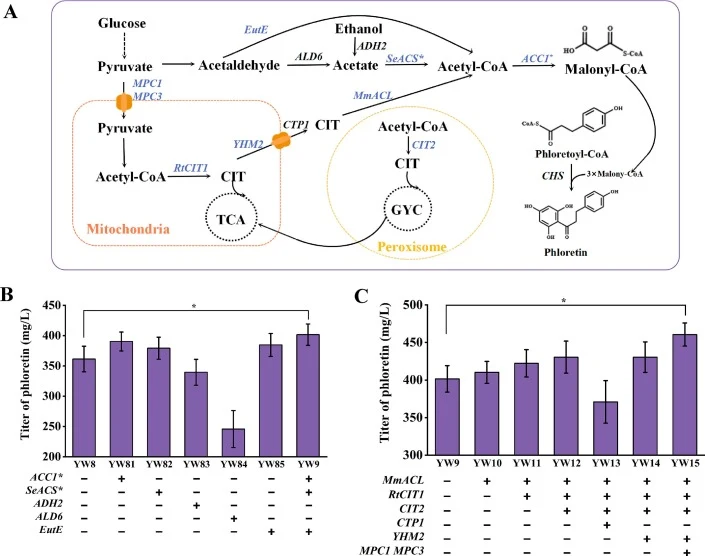
(图4展示了增强丙二酰辅酶A供给的三种工程策略:1)强化内源途径(ACC1启动子替换和S659A/S1157A突变);2)重编程细胞器至胞质的碳分配等。)
3.5 最终工程菌株YW15在5 L生物反应器中的补料分批发酵性能
(图5监测了补料分批发酵过程中根皮素、根皮酸、残糖和生物量的变化。根皮素最高滴度在120 h达到1.817 g/L。)
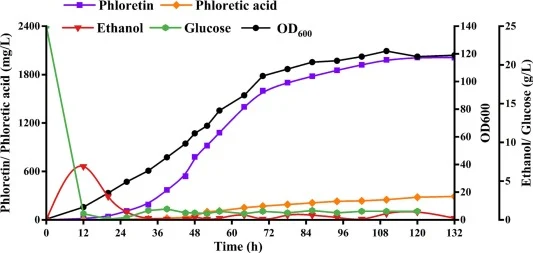
最终菌株YW15在摇瓶中产生460.6 mg/L根皮素,在5 L补料分批发酵中产生1.817 g/L,为目前酵母中报道的最高从头合成根皮素滴度。
【数据】菌株:YW15;摇瓶根皮素滴度:460.6 mg/L;5 L补料分批发酵根皮素最高滴度:1.817 g/L(120 h);发酵体积:5 L
讨论与解读
本研究开发了一个酿酒酵母从头合成根皮素的工程化平台。首先,引入柚皮素查尔酮还原酶建立了酵母兼容的有氧旁路,将柚皮素查尔酮转化为根皮素,减少了流向竞争性柚皮素分支的碳损失。其次,通过对4-香豆酸:辅酶A连接酶和查尔酮合酶的酶筛选和剂量优化,提高了途径选择性并显著促进了根皮酸回收。第三,芳香族氨基酸供给的平衡强化和胞质丙二酰辅酶A可用性的区室化改善进一步增加了前体通量。最终菌株YW15在摇瓶中产生460.6 mg/L根皮素,在5 L补料分批发酵中产生1.817 g/L,为目前酵母中报道的最高从头合成根皮素滴度。该工作的关键进展在于将酵母兼容的查尔酮还原旁路、下游三路线工程和上游前体重编程整合到单一的从头合成根皮素生产平台中。
编译者解读:该研究的核心策略在于"堵漏"与"开源"并举——通过MdNCR旁路截获查尔酮节点通量、筛选4CL/CHS拷贝数回收根皮酸碳汇,同时强化芳香族氨基酸和丙二酰辅酶A供给。1.817 g/L的发酵滴度在酵母根皮素合成领域具有标杆意义。但摇瓶与发酵罐之间近4倍的产量差距提示放大过程中氧传递和碳代谢平衡仍是瓶颈。此外,TSC13-CHS融合策略的失败也说明,在多酶级联途径中,简单的空间邻近策略未必优于对酶表达水平和催化特性的精细调控。
参考来源
期刊:Bioresource Technology, 2026
DOI: 10.1016/j.biortech.2026.135217
DOI: 10.1016/j.biortech.2026.135217