来源:Metabolic and transport engineering enable efficient de novo biosynthesis of patchoulol in Saccharomyces cerevisiae(Synthetic and Systems Biotechnology)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
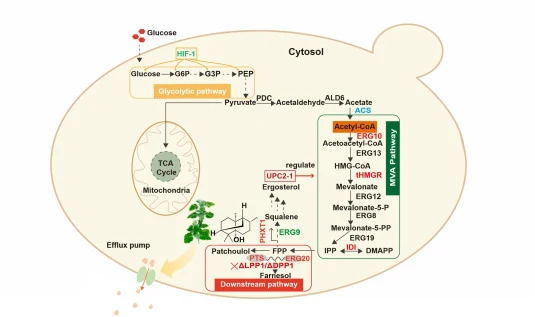
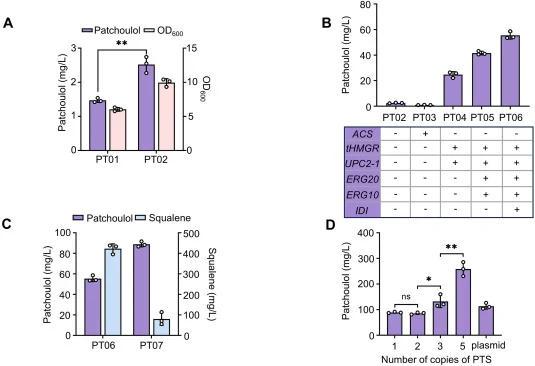
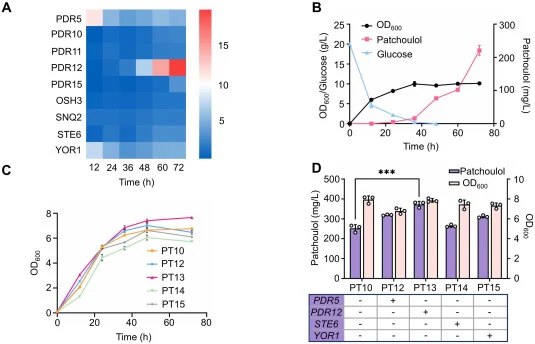
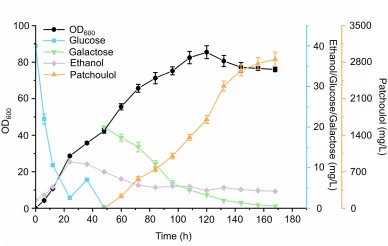
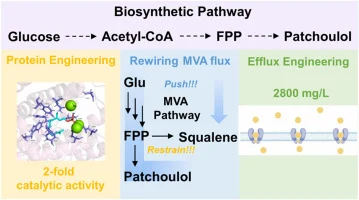
广藿香醇是一种广泛应用于香精香料和化妆品领域的高价值倍半萜,但植物提取效率低、资源消耗大。本研究将酶工程、途径工程与转运工程相结合,在酿酒酵母中构建了广藿香醇高产底盘。通过对广藿香醇合酶(PTS)的半理性设计提升催化效率,结合多拷贝表达,摇瓶效价从0.40 ± 0.05 mg/L提升至258.72 ± 27.35 mg/L;强化糖酵解和甲羟戊酸途径并下调ERG9后,进一步将代谢通量导向FPP。基于分子对接与转录分析,研究者鉴定出PDR12为有效外排泵,诱导型过表达使效价达到372.80 ± 14.92 mg/L。在5 L生物反应器两阶段补料分批发酵中,最优菌株产量达2.86 g/L(2856.25 mg/L)。
研究背景
广藿香醇是广藿香油中的核心倍半萜成分,具有抗菌、抗肿瘤和抗氧化等多种生物活性,是广藿香油药理作用和香气特征的主要物质基础。传统上广藿香醇依赖植物提取,但常规提取方法效率低、资源依赖性强;化学合成路线则往往步骤冗长且对环境不友好。因此,亟需一种绿色高效的植物天然产物生产方法。合成生物学通过设计微生物细胞工厂,利用微生物固有代谢途径合成异源植物天然产物,可减少对自然资源的依赖,推动绿色生产策略的发展。近年来,工程化微生物异源发酵合成已成功用于多种植物天然产物的生产。本研究即在此背景下,通过代谢工程与转运工程相结合的策略,系统提升酿酒酵母中广藿香醇的产量。
研究方法
2.1 菌株、培养基与试剂
大肠杆菌TOP10用于载体构建和质粒扩增,培养和筛选在Luria-Bertani(LB)培养基(10 g/L胰蛋白胨、5 g/L酵母提取物、10 g/L NaCl)中进行,并添加100 mg/L羧苄青霉素。酿酒酵母CEN.PK2–1C用作亲本菌株。本研究所使用和构建的酵母菌株见表S1。酵母菌株在酵母膏胨葡萄糖(YPD)培养基(10 g/L酵母提取物、20 g/L蛋白胨、20 g/L葡萄糖)中培养。酵母转化子在不含组氨酸、亮氨酸、色氨酸和尿嘧啶的合成完全培养基(1.7 g/L无氨基酸酵母氮源、5 g/L硫酸铵、20 g/L葡萄糖、1.3 g/L酵母合成缺陷培养基补充物)上筛选。广藿香醇标准品和十二烷分别购自Solarbio(北京)和Aladdin(上海)。
【数据】菌株:大肠杆菌TOP10、酿酒酵母CEN.PK2–1C;培养基:LB(10 g/L胰蛋白胨、5 g/L酵母提取物、10 g/L NaCl)、YPD(10 g/L酵母提取物、20 g/L蛋白胨、20 g/L葡萄糖)、合成完全培养基(1.7 g/L酵母氮源、5 g/L硫酸铵、20 g/L葡萄糖、1.3 g/L补充物);抗生素:100 mg/L羧苄青霉素;试剂来源:Solarbio(北京)、Aladdin(上海)
2.2 质粒构建
本研究所构建的所有质粒见表S2。用于质粒构建和基因组整合的所有引物见表S3。广藿香醇合酶基因(PTS,GenBank ID: MG386648.1)经密码子优化以适应酿酒酵母表达,由生工生物(上海,中国)合成。内源基因通过PCR扩增从CEN.PK2–1C基因组中获得。
【数据】基因:PTS(GenBank ID: MG386648.1);密码子优化:针对酿酒酵母;合成公司:生工生物(上海);内源基因来源:CEN.PK2–1C基因组PCR扩增;质粒列表:表S2;引物列表:表S3
2.3 酵母菌株构建
将至少与整合位点具有40 bp重叠的基因表达扩增盒通过醋酸锂方案[19]转化到酿酒酵母中,然后在氨基酸缺陷培养基上平板培养2–3天。带有同源臂的基因表达盒通过PCR扩增,并通过同源重组整合到相应的基因组位点。采用Cre/loxP重组系统进行标记回收。为实现连续基因编辑,将工程菌株交叉划线到YPD + 5-FOA(5-氟乳清酸)平板上以去除pSH65质粒。
【数据】同源臂长度:至少40 bp;转化方法:醋酸锂方案;平板培养时间:2–3天;标记回收系统:Cre/loxP;质粒去除:YPD + 5-FOA平板;质粒:pSH65
2.4 摇瓶培养
从SD平板上挑取单菌落,接种到装有3 mL合成完全培养基的试管中,30 °C、220 rpm过夜培养。然后将种子培养物接种到装有50 mL YPD的250 mL摇瓶中,初始光密度(OD600)为0.1,在30 °C、220 rpm下培养120 h。对于进行两相发酵的菌株,加入10%(v/v)十二烷作为有机相。所有600 nm光密度均使用Thermo Scientific BioMate 160紫外分光光度计测量。
【数据】种子培养基:3 mL合成完全培养基;种子培养条件:30 °C、220 rpm、过夜;摇瓶体积:250 mL;装液量:50 mL YPD;初始OD600:0.1;培养温度:30 °C;转速:220 rpm;培养时间:120 h;有机相:10%(v/v)十二烷;OD测量仪器:Thermo Scientific BioMate 160
2.5 分析方法
对于广藿香醇分析,将酵母培养物(50 mL)以4500 rpm离心10 min。用注射器取出上层十二烷相,通过0.22 μm尼龙膜过滤到GC-MS样品瓶中。GC-MS(Agilent 5977B GC/MSD;30 m × 0.25 mm × 0.25 μm色谱柱)在250 °C下操作(分流比10:1;进样量1 μL),氦气流速1.0 mL/min。程序升温:120 °C保持1 min,以3 °C/min升至260 °C(保持30 s),再以10 °C/min升至270 °C(保持5 min);接口温度220 °C。广藿香醇在约9.0 min洗脱,对照外标定量。除非另有说明,本研究报告的广藿香醇效价均指从十二烷覆盖层中定量的浓度;水相和胞内组分未定量。
【数据】离心:4500 rpm、10 min;过滤膜:0.22 μm尼龙膜;GC-MS型号:Agilent 5977B GC/MSD;色谱柱:30 m × 0.25 mm × 0.25 μm;进样口温度:250 °C;分流比:10:1;进样量:1 μL;载气:氦气、1.0 mL/min;升温程序:120 °C 1 min → 3 °C/min → 260 °C(30 s)→ 10 °C/min → 270 °C(5 min);接口温度:220 °C;广藿香醇保留时间:约9.0 min;定量方式:外标法
2.6 分子对接
使用AutoDock Tools 1.5.6进行分子对接,预测广藿香醇与转运蛋白(PDR5、PDR12、STE6、YOR1)之间的结合构象和结合自由能。转运蛋白的预测结构从PDB数据库(https://www.rcsb.org/)或AlphaFold数据库(https://alphafold.ebi.ac.uk/)获得。广藿香醇的分子结构从ZINC数据库检索。蛋白质结构通过去除水分子、添加氢原子和计算Gasteiger电荷进行预处理。配体通过添加极性氢原子制备。对接网格设置为覆盖转运蛋白的跨膜胞内区域,对接盒参数总结于表1。PTS的预测结构(Uniprot编号:Q49SP3)来源于Uniprot蛋白结构数据库(https://www.uniprot.org/)。FPP的分子结构从Pubchem数据库(https://pubchem.ncbi.nlm.nih.gov/)获得。分子对接结果使用PyMOL 3.0.3软件可视化,并列于图S3。
【数据】对接软件:AutoDock Tools 1.5.6;靶蛋白:PDR5、PDR12、STE6、YOR1;结构来源:PDB、AlphaFold、Uniprot(Q49SP3);配体来源:ZINC(广藿香醇)、Pubchem(FPP);可视化软件:PyMOL 3.0.3;对接盒参数:表1;对接结果:图S3
2.7 实时定量PCR(qRT-PCR)分析
按照制造商说明,使用Spin Column Yeast Total RNA Purification Kit(生工生物,上海,中国)提取总RNA。使用Accurate Biology的Evo M-MLV反转录预混示踪试剂盒(gDNA wiper)和SYBR Green Pro Taq HS预混qPCR试剂盒进行反转录和RT-qPCR。设计用于基因表达分析的特异性引物并用于qRT-PCR(表S3)。以ACT1作为内参基因,使用Roche荧光定量PCR仪进行荧光检测。实验结果采用2-ΔΔCt方法[20]分析。
【数据】RNA提取试剂盒:Spin Column Yeast Total RNA Purification Kit(生工生物);反转录试剂盒:Evo M-MLV(Accurate Biology);qPCR试剂盒:SYBR Green Pro Taq HS(Accurate Biology);内参基因:ACT1;仪器:Roche荧光定量PCR仪;分析方法:2-ΔΔCt法;引物:表S3
2.8 补料分批发酵
广藿香醇生产的补料分批发酵在5 L生物反应器中进行,装有2 L发酵培养基(40 g/L葡萄糖、6 g/L酵母提取物、12 g/L硫酸铵、1.5 g/L MgSO4·7H2O、6 g/L KH2PO4、3 g/L Na2HPO4·12H2O、3 mg/L CaCl2·2H2O、1 mL/L微量元素储备液(1000 × )和1 mL/L维生素储备液(1000 × ))。将单克隆培养物接种到4 mL SD培养基中过夜培养。随后,将1 mL种子培养物转移到四个250 mL摇瓶中,每个摇瓶含50 mL SD培养基,在30 °C、220 rpm下培养至光密度达到2–3。之后,以10%的接种量将二级种子培养物接种到含2 L发酵培养基的5 L发酵罐中。pH维持在5.5,发酵温度设定为30 °C,搅拌转速200–600 rpm,确保溶解氧水平保持在30%以上。发酵24 h后,补充营养物质,并再加入10%十二烷。开始补料后,每12 h补充酵母提取物粉末作为氮源,至终浓度6 g/L。葡萄糖耗尽后,加入20 g/L半乳糖以刺激广藿香醇的积累。在后续发酵阶段,乙醇替代葡萄糖作为碳源,乙醇浓度维持在10 g/L以下。
【数据】反应器体积:5 L;发酵培养基体积:2 L;培养基组成:40 g/L葡萄糖、6 g/L酵母提取物、12 g/L硫酸铵、1.5 g/L MgSO4·7H2O、6 g/L KH2PO4、3 g/L Na2HPO4·12H2O、3 mg/L CaCl2·2H2O、1 mL/L微量元素、1 mL/L维生素;种子培养:4 mL SD、过夜;二级种子:1 mL转接至4×250 mL摇瓶(50 mL SD)、30 °C、220 rpm、OD 2–3;接种量:10%;pH:5.5;温度:30 °C;搅拌:200–600 rpm;溶解氧:>30%;补料起始:24 h;十二烷添加:10%;氮源补加:每12 h、终浓度6 g/L;诱导剂:20 g/L半乳糖;碳源切换:乙醇、<10 g/L
2.9 统计分析
结果以三次生物学重复的平均值 ± 标准差表示。所有统计评估(p值)使用双尾t检验进行(∗P < 0.05,∗∗P < 0.01,∗∗∗P < 0.001)。
【数据】重复数:3次生物学重复;数据表示:平均值 ± 标准差;统计方法:双尾t检验;显著性水平:∗P < 0.05、∗∗P < 0.01、∗∗∗P < 0.001
研究结果
3.1 广藿香醇合酶的蛋白质工程改造以提高其催化活性
酿酒酵母含有内源性MVA途径,为广藿香醇合成提供了重要潜力。为建立广藿香醇从头生物合成途径,将来自广藿香(Pogostemon cablin (Blanco) Benth.)的PTS基因按照酿酒酵母偏好进行密码子优化,然后整合到CEN.PK2–1C菌株的染色体中。工程菌株P01在摇瓶中产生0.40 ± 0.05 mg/L广藿香醇(图S1)。通过表达异源关键酶,广藿香醇生物合成途径在酿酒酵母中成功构建。
天然广藿香醇合酶催化效率和特异性较低,PTS酶在催化FPP转化为广藿香醇的同时,还会产生至少13种额外的倍半萜副产物[21]。PTS的低催化效率和特异性是广藿香醇生物合成的主要限制因素。定点突变是一种分子生物学技术,通过精确修饰基因编码序列中的特定核苷酸,在酶蛋白的特定氨基酸位点引入预定突变。通过改变催化活性中心的关键残基,可以优化酶与底物之间的结合亲和力,提高酶的催化效率[22,23]。天然变体PTS1(GenBank: MG386648.1)的酶学改造尚未在酿酒酵母中报道。PTS var.1[24]的催化效率显著高于其他天然变体。PTS var.1与PTS1仅有两个氨基酸残基的差异:S103 N和G457E突变。
采用半理性设计策略增强PTS合成广藿香醇的催化性能。通过分子对接预测PTS(受体)与FPP(配体)之间的相互作用。突变热点残基的选择基于其是否位于口袋或活性位点中。根据文献报道的酶工程策略[25]和对接模型(图2A),选择PTS催化结构域中的七个关键残基(S103、W276、T404、Y407、G457、Y525、Y531)作为理性设计靶点。
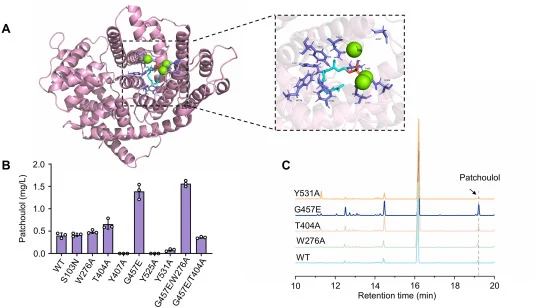
在FPP周围的残基中,氨基酸残基N448、D304和D306参与三个镁离子的配位,这些镁离子是催化所必需的。这些残基的替换可能导致酶活性完全丧失。氨基酸W276、Y407、Y525和Y531具有大而刚性的芳香环,可能阻碍FPP与PTS在其活性位点的结合。因此,将这些残基替换为侧链较小的氨基酸。将突变体Y407A、W525A和W531A转化到PT01菌株中,导致广藿香醇效价显著降低。这表明这些残基与FPP之间形成的相互作用对PTS的催化效率有显著影响。对W276、T404和G457进行的突变产生了比野生型PTS更高的催化活性。G457E突变体将广藿香醇产量最高提高了244%,浓度为1.39 mg/L(相比野生型)。G457E位于Mg2+结合位点附近,通过其带负电荷的侧链促进Mg2+配位的增强。因此,这通过电荷平衡机制促进了广藿香醇合酶催化效率的提高。
结构引导的芳樟醇合酶t67OMcLIS工程化改造通过修饰底物结合口袋附近的残基实现,以F447E突变为代表[26]。这种改变降低了空间位阻和疏水性,从而改善了酶性能并提高了芳樟醇产量。活性口袋的空间尺寸决定反应中间体(特别是C态碳正离子)的构象灵活性。通过工程化F441突变来调节酶活性位点的结构架构,可以精确改变这些中间体的构象动力学,从而实现对檀香烯比例的精细调控[27]。在(+)-瓦伦烯合酶(EgVS)中,底物结合口袋内关键残基的替换,如CnVS中的I533V,可能增加结合腔体积并导致瓦伦烯产量提高[28]。
与携带野生型广藿香醇合酶(PTS)的菌株相比,PTST404S突变株中的主要代谢物被鉴定为α-布藜烯。该菌株中α-布藜烯的色谱峰面积是特征性广藿香醇峰面积的3.1–3.3倍,显著超过PTSG457E突变体中观察到的1.0–1.3倍比率。这一观察表明T404S突变特异性增强了向α-布藜烯生物合成的代谢通量。随后,以突变体G457E为模板进行第二轮饱和突变。出乎意料的是,突变体G457E/W276A与单突变体相比略微提高了广藿香醇效价,但突变体G457E/T404A表现出显著降低的催化活性。
我们使用PTS的理性设计实现了产物的定向重分布和催化效率的协同增强。G457E/W276A替换位于PTS的催化结构域内,而非宿主特异性调控元件。因此,这些突变预计具有可移植性,当引入其他高流通量酵母底盘时也可能增强广藿香醇产量。然而,最终改善可能取决于前体可用性(FPP供应)、竞争性甾醇生物合成以及分泌/耐受能力;因此,应在不同生产背景中评估这些效应。
【数据】基础菌株:CEN.PK2–1C;初始效价:0.40 ± 0.05 mg/L(PT01);突变位点:S103、W276、T404、Y407、G457、Y525、Y531;副产物:至少13种倍半萜;G457E效价提升:244%、1.39 mg/L;α-布藜烯峰面积比:3.1–3.3倍(T404S)vs 1.0–1.3倍(G457E);Mg2+配位残基:N448、D304、D306
3.2 优化广藿香醇生物合成的代谢网络
乙酰辅酶A是MVA途径的起始原料,连接酵母的中心碳代谢。为增强乙酰辅酶A可用性,先前研究表明在酿酒酵母中过表达人缺氧诱导因子HIF-1可促进糖酵解相关酶的表达,导致胞质丙酮酸增加,进而促进乙酰辅酶A积累[29]。因此,将HIF-1表达盒整合到菌株PT01的基因组中,获得菌株PT02,其过表达PTSG457E/W276A。HIF-1的过表达导致广藿香醇产量显著增加,达到2.52 ± 0.23 mg/L。丙酮酸是糖酵解途径后碳代谢的主要分支点。丙酮酸脱氢酶旁路通过丙酮酸脱羧酶、胞质醛脱氢酶(ALD6)和乙酰辅酶A合成酶(ACS)的作用将丙酮酸转化为乙酰辅酶A[30]。为增强进入甲羟戊酸途径的碳通量,在PT02基础上引入了来自沙门氏菌的乙酰辅酶A合成酶突变体SeACSL641P。出乎意料的是,PT03菌株中广藿香醇效价从2.52 ± 0.23降至0.98 ± 0.12 mg/L。在酿酒酵母中,甲羟戊酸(MVA)途径是萜类化合物生物合成的基础代谢路线。该途径以乙酰辅酶A为底物,经过多个酶催化反应生成异戊烯基焦磷酸(IPP)和二甲基烯丙基焦磷酸(DMAPP),它们是萜类骨架组装的关键前体[31]。MVA途径的代谢通量受关键限速酶(如HMG-CoA还原酶)直接调控,其动态平衡显著影响下游倍半萜的合成效率和最终产量。
【数据】HIF-1过表达效价:2.52 ± 0.23 mg/L(PT02);SeACSL641P引入后效价:0.98 ± 0.12 mg/L(PT03);关键酶:丙酮酸脱羧酶、ALD6、ACS;前体:IPP、DMAPP;限速酶:HMG-CoA还原酶
3.3 “推-拉-限制”策略提高广藿香醇效价
3.4 ABC转运蛋白对广藿香醇生产的影响
3.5 工程菌株PT13在5 L生物反应器中的高密度发酵
讨论与解读
本研究通过模块化代谢工程、蛋白质工程和转运工程的结合,实现了广藿香醇的高水平生产,效价达到2.86 g/L(2856.25 mg/L)。如表2所示,该效价与其他工程化微生物宿主中报道的最高水平相当,据我们所知,这是酿酒酵母中达到的最高广藿香醇效价之一。本研究首次系统探索了广藿香醇的跨膜转运机制,采用“计算预测-实验验证”闭环策略,旨在解决萜类合成中产物转运效率低的核心挑战。展望未来,进一步的改进可通过以下途径实现:(i)动态平衡甾醇/萜类通量(如ERG9和下游甾醇生物合成的分阶段调控);(ii)扩展和精细调控外排转运蛋白及膜工程以改善分泌和耐受性;(iii)改善乙酰辅酶A/NADPH供应,同时优化生物反应器中的两相萃取工艺。这些策略为其他萜类化合物的胞外转运提供了参考。
编译者解读:该研究的方法论价值在于将转运工程纳入萜类合成的限速环节,而非仅聚焦于途径通量。PDR12的鉴定依托计算预测与转录数据的交叉验证,为疏水性产物外排提供了可复制的筛选逻辑。但需注意,研究仅对十二烷覆盖层中的广藿香醇定量,胞内与水相分布未纳入分析,这限制了对转运效率的精确评估。此外,G457E/W276A突变的可移植性尚需在其他底盘验证。总体而言,该工作为倍半萜类化合物的代谢-转运协同工程提供了可借鉴的范式。
参考来源
期刊:Synthetic and Systems Biotechnology, 2026
DOI: 10.1016/j.synbio.2026.01.026
DOI: 10.1016/j.synbio.2026.01.026