来源:Metabolic engineering of Saccharomyces cerevisiae sphingolipid pathways for enhanced phytoceramide production(New Biotechnology)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
植物神经酰胺是维持皮肤屏障完整性与水分的关键鞘脂,在化妆品和医药领域价值显著。但其结构复杂、天然丰度低,规模化生产困难重重。本研究在酿酒酵母中整合了代谢工程与脂质组学策略,通过过表达 SUR2、敲除 SCS7 以及过表达 ISC1 三条路径重定向鞘脂代谢流。其中 scs7Δ 菌株的植物神经酰胺丰度较野生型提升 15 倍,在定量神经酰胺库中的占比从 5% 跃升至 75%。研究还通过高分辨率质谱建立了野生型鞘脂参考图谱,为鞘脂通路调控提供了系统性数据支撑。
研究背景
鞘脂是真核细胞膜的基本组分,负责维持膜结构、调控通透性并赋予膜刚性。其核心结构由鞘氨醇碱基骨架与脂肪酸共价连接形成神经酰胺,再通过磷酸或糖基等极性头基修饰获得两亲性,从而参与膜微域(脂筏)的形成与细胞信号区室化。
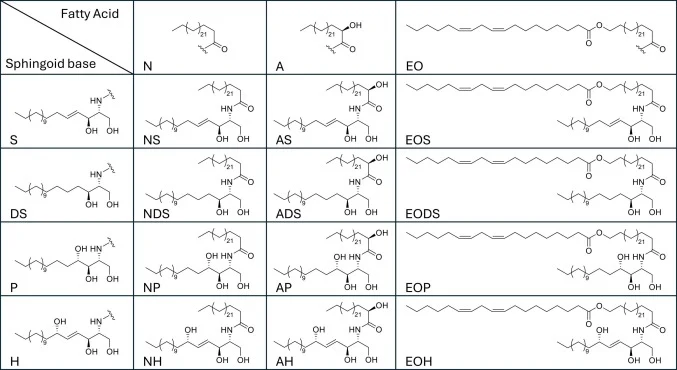
神经酰胺的结构多样性主要源于鞘氨醇碱基与脂肪酸两部分的变化(图1)。主要鞘氨醇碱基包括二氢鞘氨醇(DS,即鞘氨醇),其特点是缺少鞘氨醇(S)中的反式双键;植物鞘氨醇(P)在 C4 位多一个羟基;6-羟基鞘氨醇(H)则在 C6 位带羟基。这些碱基在植物、酵母及人体表皮等组织中尤为常见。脂肪酸组分同样贡献了神经酰胺的异质性,可为非羟基化脂肪酸,也可为 α-羟基化或酯化 ω-羟基化形式。
植物神经酰胺因其在皮肤屏障中的核心作用而备受关注,但天然含量低、结构复杂,限制了规模化获取。酿酒酵母的鞘脂通路与人表皮神经酰胺合成存在可比性,且遗传操作成熟,是研究植物神经酰胺代谢调控的理想底盘。本研究提出三种此前未被组合检验过的工程策略,旨在将代谢通量导向植物神经酰胺及其前体。
研究方法
2.1 菌株与培养条件
DH5α 大肠杆菌(Thermo Fisher)用于克隆和分子生物学操作。大肠杆菌在 37°C 下培养于液体或固体(含 1.5% 琼脂)LB 培养基中,并添加相应抗生素(氨苄青霉素 100 μg/mL 或卡那霉素 50 μg/mL)。
酿酒酵母方面,RH6082 菌株由 Howard Riezman 博士惠赠,用作代谢工程改造的宿主(野生型,Wt)。此外,酿酒酵母菌株 Sc1170(CECT 1170)用于基因组 DNA 提取。酿酒酵母在 30°C 下培养于液体或固体(含 2% 琼脂)YPD 培养基中,该培养基含酵母提取物(Panreac, 403687)、蛋白胨(Panreac, 403695)和葡萄糖(Panreac, 141341),并补充尿嘧啶(0.003%)和腺嘌呤(0.003%)(也称 YPDAU)。选择培养基为合成定义(SD)培养基,由不含氨基酸但含硫酸铵的酵母氮源(YNB; DIFCO, 291940; 0.67%)和葡萄糖(2%)配制。氨基酸通过商业酵母合成缺陷型(SDO; Merck, Y0750)混合物以 0.14%(w/v)终浓度供应,并根据营养缺陷型筛选标记(LEU2)省略相应氨基酸。
【数据】菌株:DH5α E. coli、RH6082、Sc1170;培养基:LB、YPD、YPDAU、SD;温度:37°C(大肠杆菌)、30°C(酵母);琼脂浓度:1.5%(大肠杆菌固体)、2%(酵母固体);抗生素:氨苄青霉素 100 μg/mL、卡那霉素 50 μg/mL;尿嘧啶:0.003%;腺嘌呤:0.003%;YNB:0.67%;葡萄糖:2%;SDO:0.14%(w/v)
2.2 LC–MS 化学品与试剂
LC-MS 分析所用流动相由以下试剂配制:甲醇(LC–MS 级,99.9%;VWR Chemicals, ref. 83638320)、乙腈(LC–MS 级,99.9%;VWR Chemicals, ref. 83640.320)、2-丙醇(LC-MS 级,99%;Merck, ref. 1027812500)、甲酸(Optima® LC/MS 级,99.5%;Thermo Fisher Scientific, ref. A117–50)、乙酸铵(LC-MS 级;Merck, ref. 5330040050)以及超纯水(Milli-Q®, Millipore, Bedford, MA, USA)。与 X500B 系统兼容的电喷雾电离(ESI)校准溶液(正离子模式,ref. 5049910)购自 AB Sciex Spain S.L.
【数据】甲醇纯度:99.9%;乙腈纯度:99.9%;2-丙醇纯度:99%;甲酸纯度:99.5%;ESI 校准:正离子模式,ref. 5049910;仪器:X500B 系统、Milli-Q® 超纯水系统
2.3 质粒构建
ISC1 和 SUR2 基因从酿酒酵母 Sc1170 菌株中扩增。异源表达使用质粒 pTDH3-dCas9(Addgene #46920)作为表达载体,该质粒含 TDH3 启动子和终止子,携带 LEU2 营养缺陷型筛选标记。对于 SUR2 表达,将 dCas9 替换为 SUR2 编码序列,克隆至 pTDH3 骨架中,由天然 TDH3 启动子和 ADH1 终止子控制。对于 ISC1 构建体,将骨架质粒的 TDH3 启动子和终止子分别替换为 TEF2 启动子和 PGK1 终止子。两个调控元件均从酿酒酵母 Sc1170 基因组中扩增,以确保强组成型表达。所有克隆步骤均采用 CPEC 组装完成。相应克隆所用引物列于补充表 S1。
SCS7 敲除通过共转化质粒 p414-TEF1p-CAS9-CYCt(Addgene #43802)和 p426-SNR52p-gRNA.CAN1.Y-SUP4t(Addgene #43803)实现,其中 SCS7 特异性 gRNA 通过 CPEC 组装插入,同时导入供体 DNA(序列见补充表 S1)。含 SCS7 敲除同源区和优化卡那霉素抗性盒的合成供体 DNA 序列购自 Twist Bioscience HQ。gRNA 靶序列设计在 SCS7 编码区内,起始密码子下游约 220 bp 处。gRNA_half_fw/rv 寡核苷酸用于将 SCS7 特异性 gRNA 经 CPEC 介导插入 p426-SNR52p-gRNA.CAN1.Y-SUP4t 载体骨架。Donor_linear_fw/rv 引物用于线性化含卡那霉素抗性盒的供体 DNA,其两侧带 60 bp 同源臂,以实现同源重组介导的 SCS7 替换。转化子基于抗生素抗性筛选。所有构建体在转化酿酒酵母细胞生成工程菌株前均经 Sanger DNA 测序验证。敲除策略示意图见补充图 S1。
【数据】菌株:Sc1170;质粒:pTDH3-dCas9(Addgene #46920)、p414-TEF1p-CAS9-CYCt(Addgene #43802)、p426-SNR52p-gRNA.CAN1.Y-SUP4t(Addgene #43803);启动子:TDH3、TEF2;终止子:ADH1、PGK1;筛选标记:LEU2、卡那霉素抗性;gRNA 靶位:SCS7 编码区起始密码子下游约 220 bp;同源臂:60 bp;组装方法:CPEC;验证方法:Sanger 测序
2.4 酿酒酵母转化与培养
酿酒酵母转化采用 Gietz 方法。简言之,将野生型菌株在 YPDAU 培养基中培养并收获于对数中期。细胞用无菌水洗涤后重悬于含煮沸单链 DNA、醋酸锂和质粒 DNA 的混合物中,随后加入聚乙二醇(PEG)3350。转化混合物依次在 30°C 孵育并进行 42°C 热激。洗涤后,细胞涂布于选择培养基(SD-Leu)上,30°C 孵育三天以形成菌落。本研究中所有培养均在 30°C、250 rpm 振荡条件下进行。生长曲线通过分光光度计测定 600 nm 光密度(OD600)获得,设三个生物学重复。生长速率通过对 OD600 随时间变化拟合 S 形模型估算,最大比生长速率(µmax)由拟合曲线指数期的斜率计算。
【数据】转化方法:Gietz 法;PEG:3350;热激温度:42°C;孵育温度:30°C;选择培养基:SD-Leu;孵育时间:3 天;振荡转速:250 rpm;OD 测定波长:600 nm;生物学重复:3 个
2.5 RT-qPCR 分析
RNA 提取时,酿酒酵母细胞先在定义培养基中培养(野生型和 scs7Δ 用 SD-完全培养基,ISC1-OE 和 SUR2-OE 用 SD-Leu)。培养物(10 mL)在 30°C 振荡培养至指数期(OD600 ∼1.0)。RT-qPCR 分析在指数生长期进行,以确保 RNA 质量并确认基因过表达或缺失成功。根据 OD600 估算收集对应 1 × 10⁸ 细胞的体积(1 OD600 = 3 × 10⁷ 细胞/mL),用裂解酶(1 mg/mL)处理 30 分钟,随后加入 1 mL Trizol 试剂。RNA 使用 RNeasy Mini Kit(Qiagen)按厂家方案纯化。下游分析中,cDNA 使用 NZY First-Strand cDNA Synthesis Kit(NZYtech)合成,定量 PCR(qPCR)在 QuantStudio™ 3 实时 PCR 系统(96 孔,0.2 mL 格式)上进行,引物见补充表 S2。相对表达倍数采用 delta-delta Ct 法计算。
【数据】培养体积:10 mL;温度:30°C;OD600:∼1.0(指数期);细胞数:1 × 10⁸;细胞浓度换算:1 OD600 = 3 × 10⁷ 细胞/mL;裂解酶浓度:1 mg/mL;裂解时间:30 min;Trizol 体积:1 mL;试剂盒:RNeasy Mini Kit、NZY First-Strand cDNA Synthesis Kit;仪器:QuantStudio™ 3;计算方法:delta-delta Ct
2.6 总脂质提取
脂质组学分析每菌株使用五个独立生物学重复,每个重复在 LC–MS/MS 分析前进行三次技术提取重复。总脂质提取采用改良 Bligh–Dyer 法。细胞培养物先在 5 mL 相应培养基中过夜培养,随后接种至 100 mL 培养物中,维持于最小培养基条件(SD 含或不含所需筛选氨基酸)。野生型和 scs7Δ 菌株在 SD 完全培养基中生长,ISC1-OE、SUR2-OE 和 scs7Δ SUR2-OE 在 SD-Leu 中培养。培养物在稳定期(过夜)收获。细胞通过离心(10,000 × g,5 min,4°C)沉淀,重悬于 0.9%(w/v)NaCl 中,分装至三个离心管。再次沉淀(10,000 × g,10 min,4°C)后,细胞沉淀冻干并称重。约 50 mg 干细胞(0.1 g 湿沉淀)与 100 mg 玻璃珠在 1.5 mL 氯仿:甲醇(2:1,v/v)中破碎。对于不同生物量,溶剂体积按比例调整以维持生物量-溶剂比。样品涡旋 6 分钟,置于冰控超声浴中 30 分钟(每 10 分钟冷却 1 分钟),随后加入 0.5 mL 氯仿和 0.5 mL 水,每次加入后涡旋(1.5 分钟)。通过离心(5000 × g,4 min)或静置 10 分钟实现相分离。小心回收下层氯仿相,避免玻璃珠,转移至新瓶,氮气下蒸干。干燥提取物……
【数据】生物学重复:5 个;技术重复:3 次;培养体积:5 mL(预培养)、100 mL(主培养);培养基:SD、SD-Leu;离心条件:10,000 × g,5 min,4°C(初次沉淀)、10,000 × g,10 min,4°C(二次沉淀)、5000 × g,4 min(相分离);NaCl 浓度:0.9%(w/v);干细胞量:约 50 mg;湿沉淀:0.1 g;玻璃珠:100 mg;溶剂:1.5 mL 氯仿:甲醇(2:1,v/v);涡旋时间:6 min;超声时间:30 min;冷却间隔:每 10 分钟 1 分钟;氯仿追加:0.5 mL;水追加:0.5 mL;涡旋时间:1.5 min;静置时间:10 min
研究结果
3.1 植物神经酰胺生产酿酒酵母菌株的新工程改造
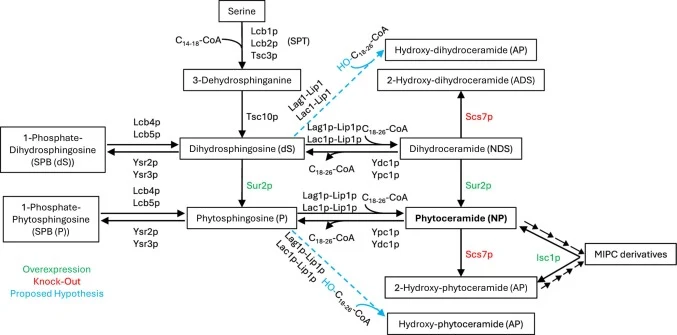
代谢工程改造酿酒酵母以增强植物神经酰胺生产,需要详细了解鞘脂生物合成及遗传修饰的后果(图2)。本研究开发了新策略,将代谢通量导向植物神经酰胺及其前体。
第一种策略考虑过表达 SUR2,以增强二氢鞘氨醇和二氢神经酰胺向各自羟基化对应物——植物鞘氨醇和植物神经酰胺——的转化。Sur2p 是一种定位于内质网的鞘氨醇 C4-羟化酶,特异性作用于二氢鞘氨醇碱基和神经酰胺中间体,在长链碱基的 C4 位引入羟基。该酶对缺乏 C4 双键的底物具有高特异性,确保选择性形成植物鞘脂。因此,我们提出 SUR2 过表达将增加植物神经酰胺种类的库池。
第二种策略基于敲除 SCS7,该基因编码微粒体脂肪酸 α-羟化酶,负责在神经酰胺酰胺连接脂肪酸的 C2 位引入羟基。Scs7p 是一种内质网相关双铁酶,特异性羟化神经酰胺结合的极长链脂肪酸(VLCFA),生成 α-羟基神经酰胺。由于这些 α-羟基化将通量从目标植物神经酰胺种类分流,SCS7 敲除将阻止该副反应,有利于非 α-羟基化植物神经酰胺的积累。
第三种策略聚焦于增加神经酰胺可用性,代价是减少复杂肌醇磷酸神经酰胺(IPC)衍生物。Isc1p 是一种定位于线粒体和内质网的肌醇磷酸鞘脂磷脂酶 C,水解复杂鞘脂如甘露糖肌醇磷酸神经酰胺(MIPC)或其前体肌醇磷酸神经酰胺(IPC),释放植物神经酰胺和 2-羟基植物神经酰胺。因此,我们提出过表达 ISC1 以增强这些复杂鞘脂向神经酰胺库的回收,促进植物神经酰胺生物合成。
以往研究使用了相关遗传组合,但分析集中在神经酰胺(NS)上,当时仍假设其在结构上与人神经酰胺类似。在酿酒酵母中,同时敲除 SCS7 和 SUR2 导致二氢鞘氨醇(DHS)积累,并在异源表达人二氢神经酰胺去饱和酶 1(Des1)时形成 NS。此外,将碱性神经酰胺酶敲除(YDC1,图2)与 ISC1 过表达结合进一步增加了 NS 水平,但未评估对其他神经酰胺类别的影响。根据三种不同策略构建了新菌株(表1)。重要的是,本研究提出的遗传组合此前均未被检验,提供了超越早期工作的新见解,并且据我们所知,代表了首个以植物神经酰胺为目标分子的代谢工程策略。
具体而言,所有菌株均在定义培养基中培养。仅 Wt 和 scs7Δ 菌株添加亮氨酸补充以补偿其营养缺陷,而过表达 ISC1 和 SUR2 的菌株携带 LEU2 筛选标记,因此无需添加亮氨酸。培养物以约 0.10–0.15 的初始 OD600 接种,30°C 孵育 24 小时。生长速率表明亮氨酸可用性未限制任何菌株的生物量积累,仅 scs7Δ SUR2-OE(菌株 #4,表1)——结合 SCS7 敲除与 SUR2 过表达——表现出指数生长速率降低,尽管 24 小时后最终 OD600 值仅略低于其他菌株(补充图 S2)。
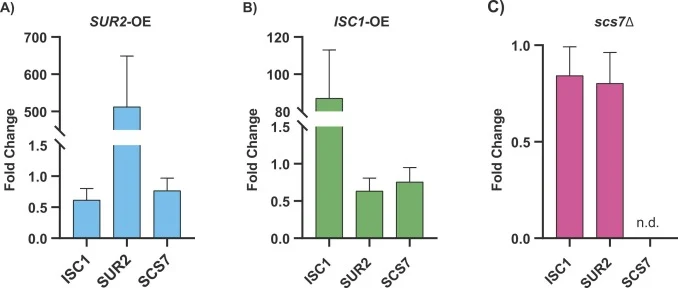
重组菌株的表型表征通过基因表达和脂质组学分析进行。为评估所用遗传工程策略的效果,使用 RT-qPCR 定量 ISC1、SUR2 和 SCS7 的转录水平,统计差异通过 ANOVA 检验评估。表达数据以 ACT1 管家基因归一化,并与 Wt 菌株比较(图3)。SUR2 过表达导致转录本丰度显著增加,较 Wt 水平提高约 500 倍(图3A)。相比之下,ISC1 过表达产生更温和的增加,转录水平较 Wt 菌株高约 84 倍(图3B)。正如预期,scs7Δ 菌株中 SCS7 转录本检测不到,确认基因完全破坏,验证了敲除策略的有效性(图3C)。在每个工程菌株中,还定量了另外两个基因的转录水平,显示与 Wt 菌株无差异。
【数据】菌株:Wt、ISC1-OE、SUR2-OE、scs7Δ、scs7Δ SUR2-OE;初始 OD600:0.10–0.15;培养温度:30°C;培养时间:24 h;SUR2 转录本倍数:约 500 倍(vs Wt);ISC1 转录本倍数:约 84 倍(vs Wt);SCS7 转录本:scs7Δ 中检测不到;管家基因:ACT1;统计方法:ANOVA
3.2 通过脂质组学建立野生型鞘脂参考图谱
鉴于目标脂质分子的结构复杂性,首先对 Wt 菌株(表1,菌株 #0)进行初始脂质组学分析。来自五个独立生物培养物的 15 份脂质提取物,每份三次技术重复,使用 Zeno-TOF 平台进行高分辨率质谱分析。原始数据通过 MS-DIAL 处理,实现脂质种类的详细鉴定和注释。该方法检测到超过 1100 个不同的库命中,有效揭示了天然脂质组成的多样性。从该综合脂质池中,选择鞘脂进行后续分析。根据定义的注释标准(见材料与方法),78 种鞘脂化合物被可靠注释,凸显了所实现的覆盖范围(补充表 S3)。
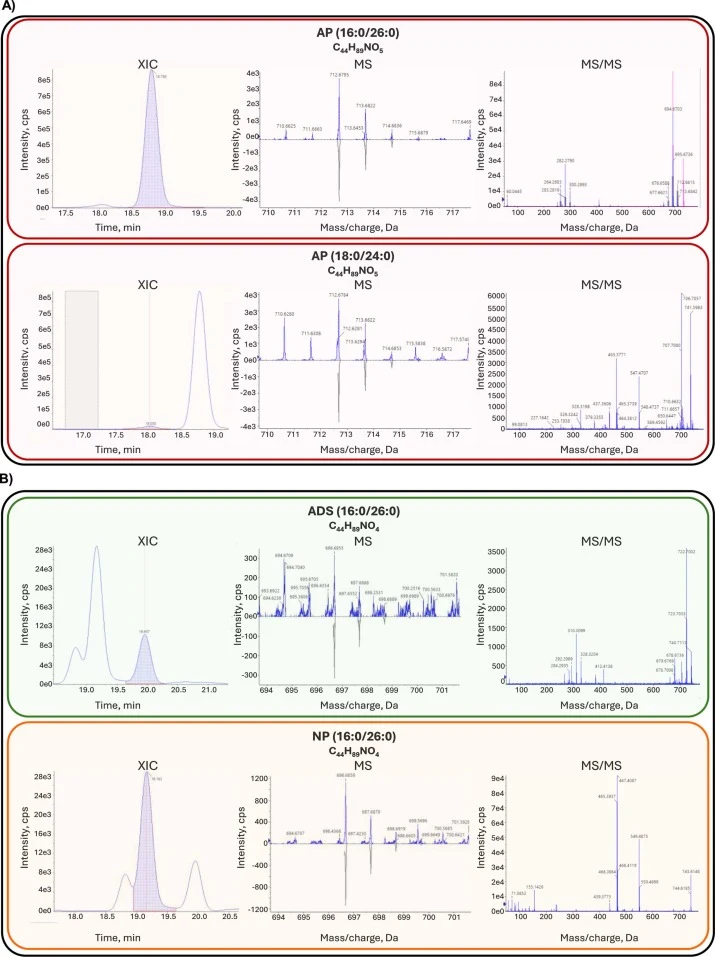
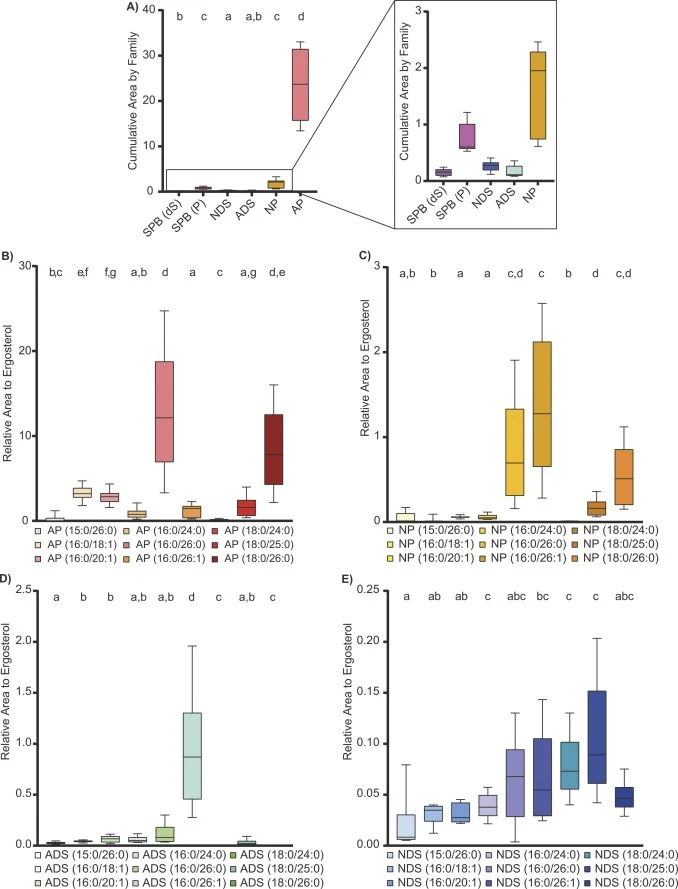
MS/MS 碎裂对于区分密切相关的同系物不可或缺,例如 16:26 与 18:24 种类,以及 2-羟基二氢神经酰胺与植物神经酰胺亚类——其中羟基分别位于鞘氨醇碱基或酰基链上(补充表 S4)。所有这些鉴定均在图4中展示,使用从 Wt 重复样本获得的代表性 MS 和 MS/MS 谱图。主要家族为植物神经酰胺和二氢神经酰胺及其羟基化变体,它们共同构成酵母鞘脂生物合成通路的核心亚类。此外,仅检测到少量对应于磷酸鞘脂、磷酸植物神经酰胺(PP)和磷酸二氢神经酰胺(PD)以及鞘氨醇碱基-1-磷酸(SPB)的额外种类。值得注意的是,任何提取物中均未检测到鞘氨醇碱基植物鞘氨醇和二氢鞘氨醇,而仅在 Wt 菌株中观察到下游神经酰胺种类(二氢神经酰胺和植物神经酰胺及其羟基化形式)。在整个脂质组学分析中,α-羟基化植物神经酰胺在中性神经酰胺亚类中丰度最高,而鞘氨醇-1-磷酸是最普遍的磷酸衍生物,尽管其水平远低于 α-羟基化植物神经酰胺(准确定量数据见下文)。在所有神经酰胺亚类中系统检查了酰基链和鞘氨醇碱基部分的所有可能组合(补充表 S3)。鞘氨醇碱基主要范围为 C14 至 C18,其中 C16:0 和 C18:0 最为丰富。相比之下,酰基部分分布更广,从 C12 到 C37。大多数鞘脂种类含极长链脂肪酸(VLCFA),其中 C26:0 为主要酰基链。含 C24:0 VLCFA 的种类也纳入分析,因其在人皮肤神经酰胺结构中重要,尽管其含量较低。
【数据】菌株:Wt(菌株 #0);生物学重复:5 个;技术重复:3 次;脂质提取物:15 份;质谱平台:Zeno-TOF;数据处理软件:MS-DIAL;库命中:>1100 个;注释鞘脂:78 种;鞘氨醇碱基范围:C14–C18;主要鞘氨醇碱基:C16:0、C18:0;酰基链范围:C12–C37;主要酰基链:C26:0;次要酰基链:C24:0
3.3 工程菌株的脂质组学分析
对 Wt、ISC1-OE、SUR2-OE、scs7Δ 和 scs7Δ SUR2-OE 菌株进行了脂质组学分析,以评估遗传修饰对鞘脂谱的影响。多变量分析显示菌株间清晰分离(图6)。Wt、ISC1-OE、SUR2-OE 和 scs7Δ 菌株在得分图中明显区分(图6A),Wt、SUR2-OE、scs7Δ 和 scs7Δ SUR2-OE 之间同样如此(图6B)。神经酰胺家族的相对丰度分析(图6C)揭示了不同菌株间神经酰胺谱的显著差异。
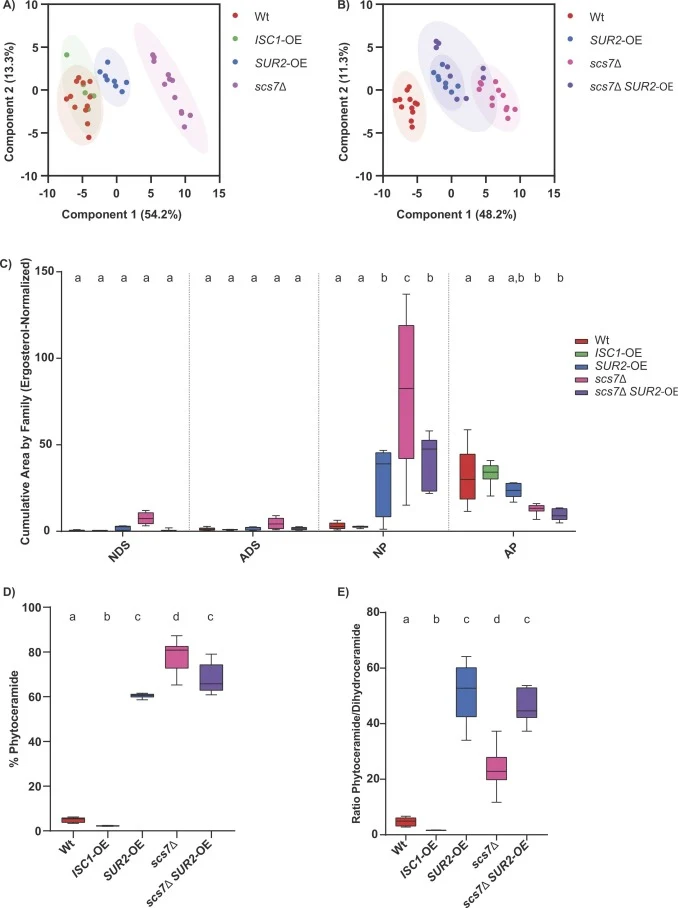
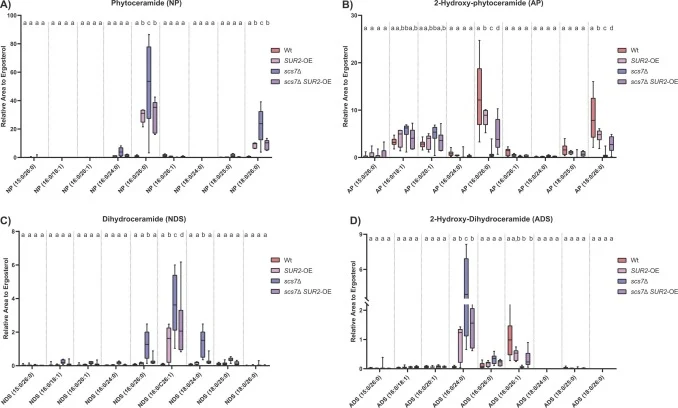
半定量分析复杂鞘脂种类,包括神经酰胺及其羟基化衍生物,凸显了菌株间不同的脂质组学谱(图7)。各面板展示中性神经酰胺如下:A)植物神经酰胺,B)2-羟基植物神经酰胺,C)二氢神经酰胺,D)2-羟基二氢神经酰胺。scs7Δ 菌株产生最高的植物神经酰胺富集,植物神经酰胺丰度较野生型增加 15 倍。就定量神经酰胺库中的相对丰度而言,植物神经酰胺从野生型的 5% 增加到 SUR2-OE 菌株的 46% 和 scs7Δ 菌株的 75%。组合 scs7Δ SUR2-OE 菌株未表现出对脂质谱的加性代谢效应。残留羟基化神经酰胺的存在表明内在调控约束,与本文提出的旁路机制一致,即神经酰胺合酶可利用预羟基化的酰基-CoA。
【数据】菌株:Wt、ISC1-OE、SUR2-OE、scs7Δ、scs7Δ SUR2-OE;植物神经酰胺丰度增加:15 倍(scs7Δ vs Wt);植物神经酰胺相对丰度:Wt 5%、SUR2-OE 46%、scs7Δ 75%;组合菌株:scs7Δ SUR2-OE 无加性效应;分析方法:多变量分析、半定量脂质组学
讨论与解读
本研究证明,对酿酒酵母进行靶向遗传工程可有效将鞘脂代谢重定向至植物神经酰胺积累,同时基本保持细胞活力。全面的脂质组学分析不仅揭示了神经酰胺亚类的结构分辨率和同系物多样性,还揭示了代谢通量分布和酶特异性活性模式的关键生物学见解。
Wt 和工程菌株均主要合成含棕榈酰和硬脂酰鞘氨醇碱基的神经酰胺。关于酰基-CoA 底物偏好,从体内野生型数据看,考虑 AP(16:0/26:0)和 AP(18:0/26:0)种类的丰度,棕榈酰转移活性约比硬脂酰转移高 1.5 倍。这为 C16-CoA 优于 C18-CoA 的偏好提供了直接证据和参考值。此外,Wt 和工程菌株均主要产生含极长链脂肪酸(VLCFA)的神经酰胺,特别是 C26 和较少量的 C24 酰基链。这一观察与酵母神经酰胺合酶复合物 Lac1p–Lip1p 和 Lag1p–Lip1p 的底物偏好一致,两者对 C26-CoA 活性最高,对 C24-CoA 约 20% 活性。
编译者解读
该研究的三条工程策略——SUR2 过表达、SCS7 敲除、ISC1 过表达——在酵母中实现了植物神经酰胺从 5% 到 75% 的占比跃升,scs7Δ 单敲除即达 15 倍丰度提升,效果显著。但组合菌株缺乏加性效应,提示通路存在调控瓶颈,单纯叠加遗传修饰未必线性增益。残留羟基化神经酰胺暗示神经酰胺合酶可利用预羟基化酰基-CoA 的旁路机制,这为后续改造提供了新靶点。从应用角度看,酵母底盘虽与人皮肤鞘脂有差异,但其遗传可操作性和脂质组学可解析性使其成为植物神经酰胺通路研究的理想模型。局限在于产量绝对值未报道,且未验证规模化发酵条件下的表现。
参考来源
期刊:New Biotechnology, 2026
DOI: 10.1016/j.nbt.2026.06.005
DOI: 10.1016/j.nbt.2026.06.005