来源:Rhizospheric Bacillus subtilis and Bacillus stercoris suppress Heterodera schachtii and promote Arabidopsis thaliana growth(Biological Control)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
孢囊线虫是威胁全球作物生产的重要病原,化学杀线虫剂的环境代价催生了对可持续替代方案的需求。本研究从巴基斯坦木尔坦地区棉花和小麦根际分离获得7株根际细菌,系统评价了其活菌细胞和无细胞上清液对甜菜孢囊线虫(Heterodera schachtii)的杀线虫活性、对拟南芥的促生效果及生防相关生化特性。研究发现活菌和无细胞上清液均能显著提高线虫二龄幼虫死亡率,其中SW83使雌虫数量降低约69%,所有菌株均产生生物膜和铁载体。16S rRNA测序将SC11、SW33、SW53鉴定为枯草芽孢杆菌(Bacillus subtilis),SW44、SW69、SW73、SW83鉴定为粪堆芽孢杆菌(Bacillus stercoris)。该研究首次报道了粪堆芽孢杆菌对植物寄生线虫的拮抗活性。
研究背景
植物寄生线虫主要栖息于土壤中,攻击植物地下结构,这使得检测、鉴定和有效治理都格外困难。根结线虫(Meloidogyne spp.)、孢囊线虫(Heterodera 和 Globodera spp.)以及短体线虫(Pratylenchus spp.)引起的线虫病害严重威胁全球作物生产和粮食安全。其中,甜菜孢囊线虫(H. schachtii)、大豆孢囊线虫(H. glycines)和马铃薯金线虫(Globodera rostochiensis)在温带地区尤为棘手。
目前线虫治理依赖栽培措施、遗传手段和化学防治。轮作和抗性品种的长期效果不稳定,且对专业技能和劳动力要求较高;合成杀线虫剂虽能快速压制线虫种群,但其经济成本和环境代价日益受到质疑。植物促生根际细菌(PGPR)兼具促进植物生长和抑制线虫的双重功能,被视为一种有前景的可持续策略。芽孢杆菌属(Bacillus spp.)因能产生多种次生代谢产物、形成抗逆芽孢,在生物防治领域备受关注。然而,关于粪堆芽孢杆菌(B. stercoris)对植物寄生线虫的拮抗活性,此前尚无报道。本研究旨在系统评价7株根际芽孢杆菌对甜菜孢囊线虫的生防潜力及其促生特性。
研究方法
2.1 细菌分离株
二十五株根际细菌此前已从巴基斯坦旁遮普省木尔坦地区四个不同田块的棉花或小麦根际分离获得。这些分离株最初针对其拮抗甜菜孢囊线虫在拟南芥上寄生的能力进行了筛选(数据未展示)。其中七株被证实能有效降低甜菜孢囊线虫对拟南芥的感染:SC11分离自棉花根际,SW33、SW44、SW53、SW69、SW73和SW83分离自小麦根际。
【数据】菌株数:25株初筛,7株入选;来源:棉花根际(SC11)、小麦根际(SW33、SW44、SW53、SW69、SW73、SW83);地点:巴基斯坦旁遮普省木尔坦地区
2.2 基于16S rRNA基因测序的分离株分子鉴定
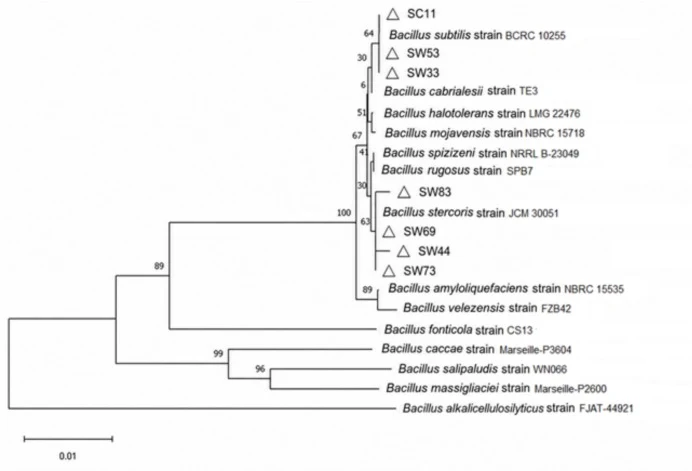
SC11此前已被鉴定为与枯草芽孢杆菌高度同源(Aslam et al., 2025)。其余六株分离株通过16S rRNA基因扩增子测序进行鉴定。从每个分离株中挑取单菌落,悬浮于100 µL无菌无核酸酶H₂O中,在99 °C孵育20分钟,然后以4000 × g离心2分钟。所得上清液含细菌基因组DNA,用于聚合酶链式反应(PCR)扩增,使用通用引物对fD1(5′-AGAGTTTGATCCTGGCTCAG-3′)和rD1(5′-AAGGAGGTGATCCAGC-3′)(Weisburg et al., 1991)。PCR反应体系为50 µL总体积,包含16 µL无核酸酶H₂O、24 µL DreamTaq PCR Master Mix(Thermo Fisher Scientific)、2 µL 10 µM反向引物rD1、2 µL 10 µM正向引物fD1和6 µL细菌DNA模板。扩增程序包括:95 °C初始变性5分钟,随后35个循环的95 °C变性1分钟、56 °C退火30秒、72 °C延伸1分钟,最后72 °C终延伸10分钟。PCR产物在1% TAE-琼脂糖凝胶上以80 V恒压电泳50分钟。从凝胶中切出约1.5 kbp的DNA片段,转移至高压灭菌的Eppendorf管中。使用DNA纯化试剂盒(Thermo Fisher Scientific)按制造商方案进行纯化,纯化后的DNA送至Eurofins Genomics(德国)进行测序。所得序列使用NCBI BLAST工具与GenBank数据库中的已提交序列进行比对分析。初步BLAST分析针对整个NCBI数据库进行,以确定分离株的初步身份。随后针对相关分类群内的模式菌株进行BLAST分析,以排除错误注释的条目。使用MEGA 11软件中的ClustalW对高度同源区域进行序列比对。系统发育树采用邻接法(neighbor-joining method)生成,节点支持率通过1000次重复的bootstrap分析评估(Ki et al., 2009)。
【数据】裂解温度:99°C;裂解时间:20min;离心:4000×g,2min;PCR体积:50µL;DNA模板:6µL;引物浓度:10µM;变性:95°C 5min(初始),95°C 1min(循环);退火:56°C 30s;延伸:72°C 1min(循环),72°C 10min(终);循环数:35;电泳:1% TAE-琼脂糖,80V,50min;片段大小:~1.5kbp;bootstrap:1000次重复
2.3 细菌细胞和次生代谢产物对线虫死亡率的影响
#### 2.3.1 线虫制备
从无菌培养的芥菜(Sinapsis alba cv. Albatros)根部收集约300个甜菜孢囊线虫孢囊,浸入无菌3 mM ZnCl₂溶液(以刺激J2孵化)中,置于Baermann漏斗内(Wyss & Grundler, 1992)。7天后收集J2,用无菌自来水冲洗4次以去除ZnCl₂,J2立即用于后续分析。
【数据】孢囊数:约300个;ZnCl₂浓度:3mM;孵化时间:7天;冲洗次数:4次;寄主植物:芥菜(Sinapsis alba cv. Albatros)
#### 2.3.2 细菌细胞培养和次生代谢产物制备
所有根际细菌分离株以20%甘油菌种保存于LB肉汤(1 L dH₂O中含10 g胰蛋白胨、5 g酵母提取物、5 g NaCl)中,置于−80 °C。培养开始时,将3 µL甘油菌种划线接种于LB琼脂平板(LB肉汤中加入15 g琼脂/L dH₂O),在28 ± 2 °C孵育24小时。挑取单菌落接种至含100 mL LB肉汤的500 mL锥形瓶中,在28 ± 2 °C、150 rpm振荡条件下过夜培养(Edmund Buhler GmbH,德国)。次日早晨,将主培养物在LB肉汤中稀释至600 nm光密度(OD₆₀₀)为0.1,再在28 ± 2 °C、150 rpm振荡条件下培养72小时。随后,将细菌培养物收集至15 mL离心管中,以4000 × g离心5分钟。上清液收集至单独的无菌15 mL离心管中。各根际细菌的上清液通过0.22 µm无菌滤膜过滤,获得含细菌次生代谢产物的无细胞上清液(CFS)。根际细菌细胞沉淀用无菌自来水洗涤一次,悬浮于无菌自来水中。测定OD₆₀₀,根据后续应用需求调整至所需OD₆₀₀后用于进一步研究。
【数据】甘油浓度:20%;保存温度:−80°C;LB配方:10g胰蛋白胨+5g酵母提取物+5g NaCl/L;琼脂浓度:15g/L;接种量:3µL;初培养温度:28±2°C;初培养时间:24h;主培养体积:100mL/500mL锥形瓶;振荡速度:150rpm;主培养OD₆₀₀:0.1;主培养时间:72h;离心:4000×g,5min;滤膜孔径:0.22µm
#### 2.3.3 细菌细胞和次生代谢产物对线虫死亡率的影响
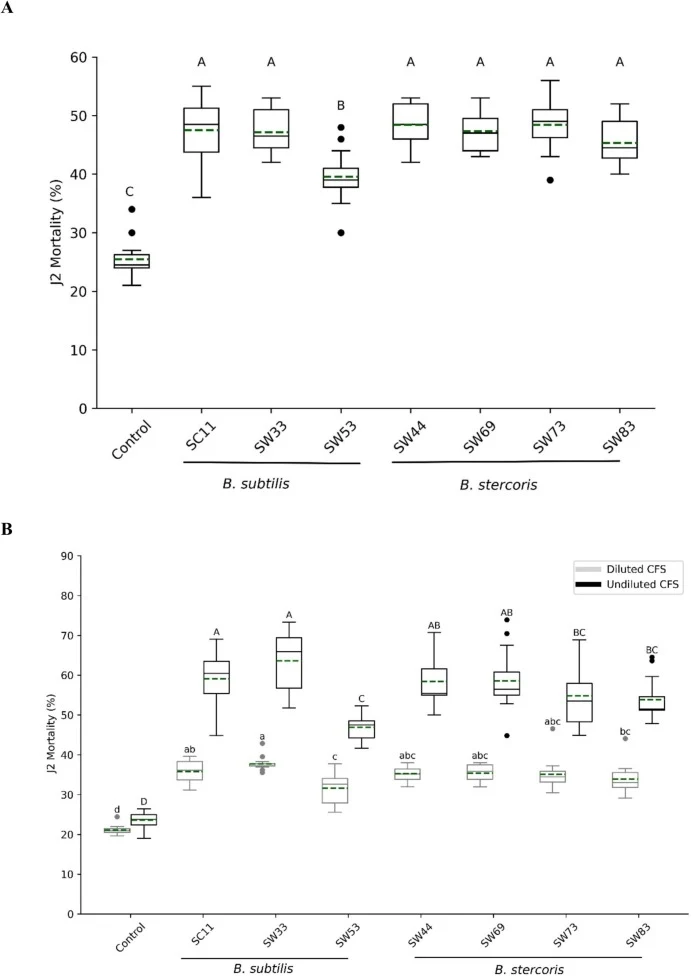
活根际细菌细胞对甜菜孢囊线虫J2死亡率的影响在24孔板中测定。作为处理,将各细胞培养物的OD₆₀₀用1/3强度LB肉汤调整至0.1(分光光度法验证),每孔加入1 mL细菌培养物,同时加入5 µL含约60条J2的无菌自来水悬浮液。以不含细菌培养物的1/3强度LB肉汤作为阴性对照。为测定所有七株分离株次生代谢产物的效果,使用两种不同浓度的次生代谢产物(100%纯滤液和用无菌自来水50%稀释的滤液)处理甜菜孢囊线虫J2。将约60条J2悬浮于5 µL无菌自来水中,加入96孔板各孔,孔中含有100 µL未稀释或50%稀释的CFS。对照包括标准LB肉汤(未稀释和50%稀释)。制备完成后,所有平板在25 °C孵育,在处理后96小时通过加入10 µL 1 M NaOH溶液评估线虫死亡率(Matera et al., 2021)。加入1 M NaOH后30–60秒内立即在体视显微镜下观察线虫。对NaOH加入后发生卷曲反应的线虫视为存活(补充图1A),而保持伸直不动的线虫视为死亡(补充图1B)。死亡率(%)使用以下公式计算:死亡率% = [(死亡线虫数)/(总线虫数)] × 100。所有处理每组设四个技术重复和三个独立生物学重复,实验在不同时间用新鲜制备的细菌细胞培养物、无细胞上清液和J2分别进行,以验证实验系统的可重复性和独立性。
【数据】培养板:24孔板(活菌)、96孔板(CFS);活菌OD₆₀₀:0.1(1/3强度LB稀释);活菌体积:1mL/孔;J2数量:约60条/孔;J2悬浮体积:5µL;CFS浓度:100%和50%;CFS体积:100µL/孔;孵育温度:25°C;评估时间:处理后96h;NaOH浓度:1M;NaOH体积:10µL;观察时间:30–60s;技术重复:4;生物学重复:3
2.4 细菌细胞对线虫寄生和植物生长的影响
拟南芥Col-0种子用0.7%次氯酸钠表面消毒5分钟,随后用70%乙醇消毒1分钟,再用无菌dH₂O冲洗5次。消毒后的种子在层流超净台中干燥4小时,避光保存于4 °C。然后将这些种子在改良Knop培养基中培养(Sijmons et al., 1991)。由于本研究中所有根际细菌在pH 7.5时生长速率最高(补充图2),Knop培养基制备时pH值调整为7.5而非6.4,但不含蔗糖以避免细菌过度生长。该方法与Huang等人(2021)的植物–微生物–线虫互作研究一致,其中枯草芽孢杆菌I-1582在细菌最适pH条件下实现了对甜菜孢囊线虫的有效抑制。首先,将培养皿(直径90 mm)填充改良Knop培养基,然后在凝固的培养基上滴加两滴50 µL标准改良Knop培养基(含蔗糖,pH 6.4)作为播种消毒拟南芥种子的位点。平板水平放置于气候室中,在红/蓝光下、16/8光暗周期、24 °C条件下培养。4天后将平板倾斜一定角度。
【数据】消毒剂:0.7%次氯酸钠(5min)+70%乙醇(1min);冲洗次数:5次;干燥时间:4h;保存温度:4°C;培养基:改良Knop;pH:7.5(改良)vs 6.4(标准);培养皿直径:90mm;种子播种滴液:50µL×2;光照:红/蓝光,16/8光暗周期;温度:24°C;倾斜时间:4天后
研究结果
3.1 基于16S rRNA测序的分离株鉴定
经初步筛选抑制甜菜孢囊线虫感染的能力后,选出了七株根际细菌分离株,命名为SC11、SW33、SW44、SW53、SW69、SW73和SW83。其中一株分离株SC11(16S rRNA基因序列1260 bp)此前已报道为枯草芽孢杆菌(登录号:PV147760.1),与枯草芽孢杆菌菌株BCRC 10255(NR_116017.1)相似性达99.75%,查询覆盖度100%,E值为0.0(Aslam et al., 2025)。通过16S rRNA基因测序和NCBI BLAST分析的分子鉴定显示,其余六株分离株也属于芽孢杆菌属。随后的模式菌株比较发现,SW33(16S rRNA基因序列1461 bp)和SW53(16S rRNA基因序列1464 bp)与枯草芽孢杆菌菌株BCRC 10255(NR_116017.1)亲缘关系密切,序列相似性分别为99.79%和99.86%,查询覆盖度分别为99%和100%,两者E值均为0.0。类似地,SW44(1188 bp)、SW69(1467 bp)、SW73(1216 bp)和SW83(1473 bp)与粪堆芽孢杆菌菌株JCM 30051(NR_180796.1)亲缘关系密切。这些分离株的序列相似性分别为99.58%、99.66%、99.51%和99.32%,查询覆盖度均为100%,E值均为0.0(图1)。SW33、SW44、SW53、SW69、SW73和SW83的16S rRNA序列已提交至GenBank,登录号分别为PV905101、PV905102、PV905103、PV905104、PV905105和PV905106。
【数据】SC11序列长度:1260bp;SW33:1461bp,相似性99.79%,覆盖度99%;SW53:1464bp,相似性99.86%,覆盖度100%;SW44:1188bp,相似性99.58%;SW69:1467bp,相似性99.66%;SW73:1216bp,相似性99.51%;SW83:1473bp,相似性99.32%;所有E值:0.0;登录号:PV905101–PV905106
3.2 细菌细胞和次生代谢产物对线虫死亡率的影响
所有处理均显示死亡率显著高于对照。对照死亡率约为25%,而处理组死亡率根据算术平均值约为39%(枯草芽孢杆菌SW53)至48%(粪堆芽孢杆菌SW44和SW73)(图2A)。这表明活菌细胞具有杀线虫效果。类似地,在体外实验中评估了各根际细菌未稀释和50%稀释CFS对甜菜孢囊线虫J2死亡率的影响。未稀释CFS和稀释CFS均显著提高死亡率。未稀释CFS引起的J2死亡率较高,范围为47%(枯草芽孢杆菌SW53)至64%(枯草芽孢杆菌SW33),对照为24%(补充图3)。CFS稀释50%后J2死亡率降低,范围为32%(枯草芽孢杆菌SW53)至38%(枯草芽孢杆菌SW33),但仍显著高于对照(21%)(图2B)。这表明CFS具有杀线虫效果,且死亡率呈剂量依赖性。
【数据】对照死亡率:约25%(活菌实验)、24%(未稀释CFS)、21%(50%稀释CFS);活菌处理死亡率范围:约39%(SW53)至48%(SW44和SW73);未稀释CFS死亡率范围:47%(SW53)至64%(SW33);50%稀释CFS死亡率范围:32%(SW53)至38%(SW33)
3.3 根际细菌对线虫寄生和植物生长的影响
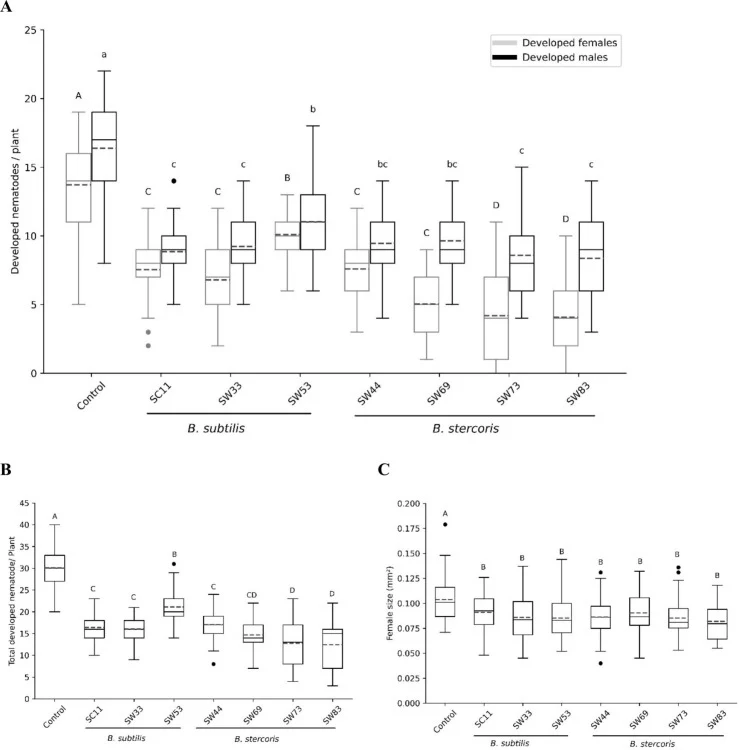
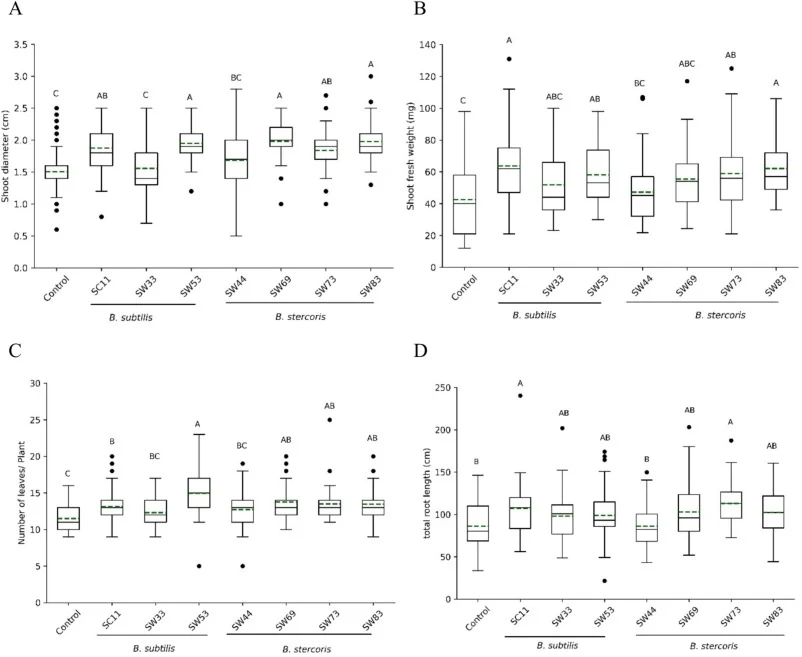
在拟南芥上进行的活体实验评估了各根际细菌对甜菜孢囊线虫寄生的影响。结果显示,与对照相比,各处理显著降低了雌虫、雄虫和总线虫数量。雌虫数量(补充图4A)降低27%(枯草芽孢杆菌SW53)至69%(粪堆芽孢杆菌SW83),雄虫数量(补充图4B)降低34%(枯草芽孢杆菌SW53)至49%(枯草芽孢杆菌SW83)(图3A)。类似地,总线虫数量也降低30%(枯草芽孢杆菌SW53)至58%(粪堆芽孢杆菌SW83)(图3B)。此外,在14 dpi时,所有处理组雌虫尺寸均显著小于对照,与对照雌虫尺寸相比减小约12%(枯草芽孢杆菌SC11)至18%(粪堆芽孢杆菌SW83)(图3C和补充图5)。除了根际细菌对线虫寄生的影响外,还评估了其在感染压力下对寄主植物发育的影响。在播种后28天测量了地上部相关变量(茎直径和鲜重、叶片数)和地下部相关变量(总根长)。大多数细菌处理对茎直径和茎鲜重产生了积极影响(补充图6)。茎直径在枯草芽孢杆菌分离株SC11和SW53中分别显著增加约24.6%和29.3%,在SW69、SW73和SW83中分别增加约31.4%、22.1%和31.4%(图4A);茎鲜重在枯草芽孢杆菌分离株SC11和SW53中分别显著增加约49.7%和36.5%,在粪堆芽孢杆菌分离株SW73和SW83中分别增加约38.6%和45.9%(图4B)。类似地,叶片数在枯草芽孢杆菌分离株SC11和SW53中分别显著增加约14%和30%,在粪堆芽孢杆菌分离株SW69和SW83中分别增加约19%和17%(图4C);总根长在枯草芽孢杆菌SC11和粪堆芽孢杆菌SW73中分别显著增加约24%和31%(图4D)。
【数据】雌虫降低:27%(SW53)至69%(SW83);雄虫降低:34%(SW53)至49%(SW83);总线虫降低:30%(SW53)至58%(SW83);雌虫尺寸减小:约12%(SC11)至18%(SW83);茎直径增加:SC11约24.6%,SW53约29.3%,SW69约31.4%,SW73约22.1%,SW83约31.4%;茎鲜重增加:SC11约49.7%,SW53约36.5%,SW73约38.6%,SW83约45.9%;叶片数增加:SC11约14%,SW53约30%,SW69约19%,SW83约17%;总根长增加:SC11约24%,SW73约31%;测量时间:播种后28天;雌虫尺寸测量时间:14 dpi
3.3.1 根际细菌对线虫侵入的影响
由于发现根部处理分离株后成虫数量较对照减少,我们旨在确定细菌分离株的拮抗效应在植物–线虫互作的哪个阶段显现。因此,首先研究了根际细菌对J2侵入植物根部组织的影响。早在1 dpi时,所有处理的侵入率即显著低于对照。在2 dpi和3 dpi时也持续显著较低。在对照组中,甜菜孢囊线虫侵入率在3 dpi时达到约46%,而处理组侵入率约为25%(枯草芽孢杆菌SC11)至32%(粪堆芽孢杆菌SW83),相当于与对照成功侵入事件数相比最大降低约46%(枯草芽孢杆菌SC11)(图5)。在12 dpi时计数雄虫和雌虫,并计算成虫(12 dpi)与侵入J2(3 dpi)的比率(图6)。发现未处理对照中J2发育为雄虫和雌虫的比率为61%,而在枯草芽孢杆菌SW33、粪堆芽孢杆菌SW73和粪堆芽孢杆菌SW83处理中,基于算术平均值分别较对照显著降低约26%、34%和36%。
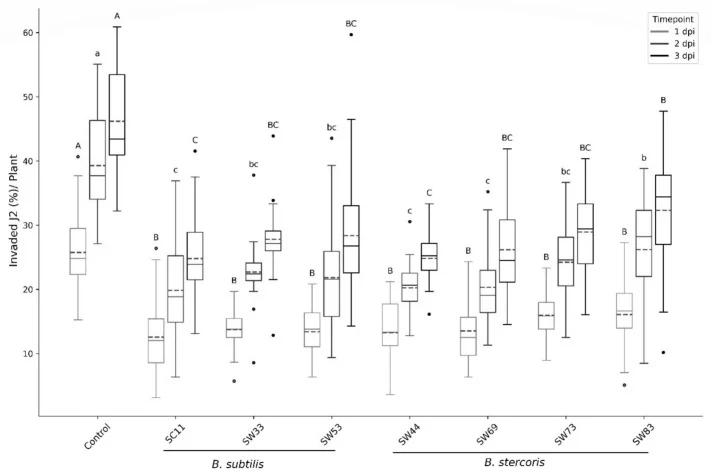
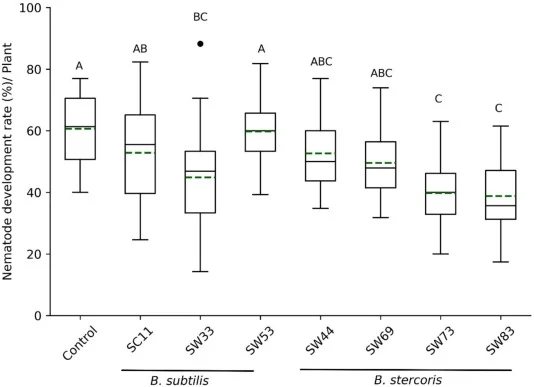
【数据】对照3 dpi侵入率:约46%;处理组3 dpi侵入率:约25%(SC11)至32%(SW83);最大降低:约46%(SC11);对照成虫发育比率:61%;发育比率降低:SW33约26%,SW73约34%,SW83约36%;评估时间点:1、2、3 dpi(侵入),12 dpi(成虫计数)
3.4 生化特性
评估了根际细菌产生几丁质酶、蛋白酶、铁载体、HCN和IAA以及溶解磷的能力。Aslam等人(2025)已报道枯草芽孢杆菌SC11能够产生几丁质酶和铁载体。三株粪堆芽孢杆菌分离株SW44、SW73和SW83也证实能产生几丁质酶,同时所有六株分离株均产生铁载体,约为18–27 psu。没有分离株产生蛋白酶。仅一株分离株——枯草芽孢杆菌SW33产生HCN,浓度约为47 µg/mL。Aslam等人(2025)已报道枯草芽孢杆菌SC11具有溶磷能力。枯草芽孢杆菌SW33和粪堆芽孢杆菌SW44也证实具有此能力。没有分离株产生IAA(表1,补充图7)。
【数据】几丁质酶:SW44、SW73、SW83(+),SC11(已报道+);铁载体:所有6株测试菌株+,约18–27 psu;蛋白酶:无;HCN:仅SW33,约47 µg/mL;溶磷:SC11(已报道)、SW33、SW44;IAA:无
3.5 生物膜形成
我们观察到所有七株根际细菌均产生生物膜。通过测量590 nm处OD值量化生物膜形成,结果显示处理组吸光度显著高于对照(添加2%葡萄糖的LB肉汤)。枯草芽孢杆菌SC11和粪堆芽孢杆菌SW44表现出最高的OD₅₉₀,约为2.7(图7)。
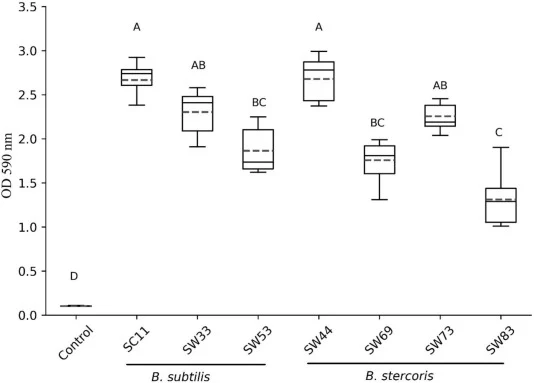
【数据】生物膜定量波长:590nm;对照培养基:LB肉汤+2%葡萄糖;最高OD₅₉₀:约2.7(SC11和SW44);生物学重复:3;总n=9
讨论与解读
本研究证明七株根际细菌分离株均对甜菜孢囊线虫表现出强效拮抗活性,其中SC11、SW53、SW69、SW73和SW83在感染压力下同时促进植物生长。这些发现印证了植物促生根际细菌作为可持续生防剂的潜力——既能增强植物表现,又能抑制线虫寄生。系统发育分析将SC11、SW33、SW53归为枯草芽孢杆菌,SW44、SW69、SW73、SW83归为粪堆芽孢杆菌。
作者指出本研究的一个显著局限:所有可培养和测序的根际细菌均属于芽孢杆菌属,这可能反映了对LB培养基分离的单一依赖。芽孢杆菌在LB培养基上的快速生长和竞争 dominance 可能抑制了营养需求不同或生长较慢的其他根际细菌的检出。未来研究应使用更广泛的选择性和富集培养基,以涵盖不同细菌类群的生理多样性。
芽孢杆菌属已被报道能促进植物生长并作为生防剂对抗植物病原体。不同芽孢杆菌包括枯草芽孢杆菌已被描述在多种病害管理中有效。本研究首次提供了粪堆芽孢杆菌对植物寄生线虫拮抗活性的证据。
编译者解读
该研究的方法学亮点在于将体外杀线虫活性(活菌与CFS并行)、活体寄生抑制、侵入动力学和生化表型进行了系统串联,为菌株筛选提供了多层次证据链。但所有菌株均来自LB培养基分离,分类多样性受限,且杀线虫活性成分(CFS中的具体代谢物)未做鉴定。从合成生物学角度看,若能将几丁质酶、HCN合成等关键基因簇异源表达或进行启动子工程改造,有望构建活性更强的工程菌株。此外,田间条件下的定殖效率和生态兼容性仍是走向应用的关键瓶颈。
参考来源
期刊:Biological Control, 2026
DOI: 10.1016/j.biocontrol.2026.106075
DOI: 10.1016/j.biocontrol.2026.106075