来源:Co-administration of recombinant Pichia pastoris-CXCL20a and immunostimulatory polysaccharides enhances resistance to Aeromonas hydrophila in grass carp (Ctenopharyngodon idella)(Fish & Shellfish Immunology)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
嗜水气单胞菌是水产养殖中的重大威胁。本研究评估了重组毕赤酵母表达CXCL20a(Pp-C20a)单独或联合β-葡聚糖、壳聚糖(CS)和黄芪多糖(APS)口服免疫草鱼的效果。结果显示,Pp-C20a单独使用可将存活率从对照组的20%提升至32%,而与β-葡聚糖联用后存活率进一步提高至46%。联合处理还增强了血清SOD、溶菌酶和补体C3水平,上调了头肾、脾脏和肠道中免疫相关基因表达,并降低了组织细菌载量,减轻了脾脏和肠道组织损伤。该策略为水产养殖提供了无抗生素的可持续防病方案。
研究背景
水产品是人类优质蛋白和营养素的重要来源。草鱼(Ctenopharyngodon idella)因产量高而成为最具经济价值的淡水养殖品种之一。据联合国粮农组织统计,2023年全球草鱼产量达624万吨,在所有水产动物中排名第三。然而,集约化和半集约化养殖模式的快速扩张不断损害鱼类健康和环境质量,增加了传染病的易感性。嗜水气单胞菌是肠炎和败血症的病原体,因其分布广、毒力强、经济损失大,对草鱼养殖构成严重威胁。目前抗生素和化学药物仍是主要防控手段,但过度使用已导致耐药性、药物残留和环境污染等问题,引发食品安全和可持续养殖的重大关切。因此,开发安全、有效、环境友好的免疫增强剂成为迫切需求。多糖因其天然来源、生物相容性和低耐药诱导风险而成为有前景的免疫增强剂。这些由单糖通过糖苷键连接而成的大分子能够……
研究方法
2.1 鱼类与菌株
健康草鱼平均体重10 ± 1 g,购自华中农业大学淡水水产健康养殖协同创新中心(中国武汉)。在投喂试验前,所有鱼在循环水养殖系统中暂养两周。随后28天实验期内,每天投喂两次(09:00和17:00),投喂量为体重的2%。实验期间水温和溶解氧维持在最适范围(28 ± 1 °C;9 ± 0.5 mg/L)。实验方案经华中农业大学动物研究伦理委员会审查批准(批准号:HZAUFI-2026-0005)。毕赤酵母GS115(NRR01030)购自Thermo Fisher Scientific,在酵母提取物-蛋白胨-葡萄糖(YPD)液体培养基(1%酵母提取物,2%蛋白胨,2%葡萄糖)中28 °C培养24 h。嗜水气单胞菌(ATCC 7966)取自实验室保藏,在Luria-Bertani(LB)培养基(Sigma,上海,中国)中28 °C培养至对数期。
【数据】鱼体重:10 ± 1 g;水温:28 ± 1 °C;溶解氧:9 ± 0.5 mg/L;投喂频率:2次/天;投喂量:体重2%;驯化时间:2周;实验周期:28天;YPD培养基:1%酵母提取物+2%蛋白胨+2%葡萄糖;酵母培养温度:28°C;培养时间:24h;嗜水气单胞菌培养温度:28°C
2.2 重组Pp-C20a的表达与鉴定
高效表达CXCL20a的重组毕赤酵母GS115菌株在前期研究中构建[19]。将该菌株接种至25 mL缓冲甘油复合(BMGY)培养基(1%酵母提取物,2%蛋白胨,1.34% YNB,0.00004%生物素,1%甘油,pH 8.0)中,28 °C振荡培养至OD600达到2.0–6.0。随后,室温下3000 × g离心5 min收集酵母细胞,重悬于缓冲甲醇复合(BMMY)培养基(以甲醇替代甘油的BMGY)中至OD600为1.0。为诱导表达,培养物在28 °C振荡培养,每24 h加入100%甲醇至终浓度1.0%。诱导后收集酵母细胞,裂解并在SDS样品缓冲液(5×)中100 °C加热10 min。蛋白质经15% SDS-PAGE分离后转移至硝酸纤维素膜。室温下用TBST中5%脱脂奶粉封闭1 h后,膜与兔抗CXCL20a多克隆抗血清(1:200稀释)在25 °C孵育2 h。TBST洗涤三次后,膜与HRP偶联的山羊抗兔IgG(1:5000稀释;ABclonal,北京,中国)在25 °C孵育1 h。使用Clarity™ Western ECL底物(Bio-Rad)检测蛋白条带,并用Amersham Imager 600可视化。
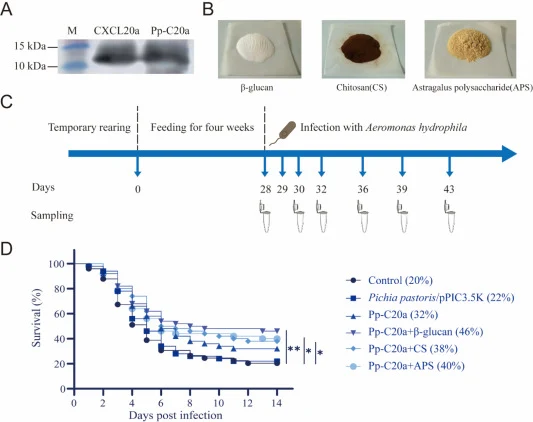
【数据】BMGY培养基:1%酵母提取物+2%蛋白胨+1.34% YNB+0.00004%生物素+1%甘油,pH 8.0;诱导OD600:2.0–6.0;离心条件:3000 × g,5 min,室温;诱导OD600:1.0;诱导温度:28°C;甲醇补加:每24h至终浓度1.0%;SDS-PAGE浓度:15%;加热条件:100°C,10 min;封闭:5%脱脂奶粉,室温1h;一抗:1:200,25°C,2h;二抗:1:5000,25°C,1h
2.3 实验饲料与投喂试验
诱导后,3000 × g离心5 min收集酵母细胞,用磷酸盐缓冲液(PBS;Beyue Biotechnology,上海,中国)洗涤两次,重悬于PBS中。将悬浮液转移至冻干瓶(TRUKING,长沙,中国)中,使用实验室冻干机冻干过夜。用于饲料配制的Pp-C20a制剂的最终状态为完整的冻干重组酵母细胞。饲料中100 mg/kg Pp-C20a的剂量严格代表每千克基础饲料中添加的冻干酵母制剂的总干重。本研究所用多糖包括:β-葡聚糖(产品号1048288,Sigma,北京,中国)、CS(产品号C3646,Sigma,北京,中国)和APS(货号GC34407,GlpBio,上海,中国)。这些多糖的饲料添加水平依据前期研究确定[16,23,24]。每种添加剂与0.5%淀粉溶液混合,按此前描述均匀喷涂到商业基础饲料上[22]。饲料储存在密封袋中4 °C保存至使用。投喂试验包括六组:对照组(基础饲料);毕赤酵母/pPIC3.5K组(基础饲料添加100 mg/kg毕赤酵母/pPIC3.5K);Pp-C20a组(基础饲料添加100 mg/kg Pp-C20a);Pp-C20a + β-葡聚糖组(基础饲料添加100 mg/kg Pp-C20a和200 mg/kg β-葡聚糖);Pp-C20a + CS组(基础饲料添加100 mg/kg Pp-C20a和200 mg/kg CS);Pp-C20a + APS组(基础饲料添加100 mg/kg Pp-C20a和200 mg/kg APS)。共600尾健康草鱼随机分配到六个实验缸(每缸100尾),代表六个饲料组。所有缸维持严格相同的环境条件。
【数据】离心条件:3000 × g,5 min;Pp-C20a剂量:100 mg/kg;β-葡聚糖剂量:200 mg/kg;CS剂量:200 mg/kg;APS剂量:200 mg/kg;淀粉溶液浓度:0.5%;饲料储存温度:4°C;实验分组:6组;每组鱼数:100尾;总鱼数:600尾
2.4 细菌制备与攻毒
为确定嗜水气单胞菌对草鱼的半数致死量(LD50),将80尾鱼随机分为四组(每组n = 20)。每组腹腔注射100 μL不同浓度的嗜水气单胞菌悬液:1.0 × 10⁵、1.0 × 10⁶、1.0 × 10⁷和1.0 × 10⁸ CFU/mL。每天监测死亡率,持续7天,最终确定LD50为1.0 × 10⁷ CFU/mL。28天投喂试验后,每个实验组的100尾鱼完全随机分为两个子缸(每缸50尾):一个子缸用于死亡率评估,另一个用于采样。攻毒试验中,两个子缸的鱼均腹腔注射100 μL预定浓度1.0 × 10⁷ CFU/mL的嗜水气单胞菌悬液。攻毒后每天记录死亡率,持续14天。
【数据】LD50测定鱼数:80尾;分组:4组,每组20尾;注射体积:100 μL;攻毒浓度梯度:1.0 × 10⁵、1.0 × 10⁶、1.0 × 10⁷、1.0 × 10⁸ CFU/mL;LD50监测时间:7天;确定LD50:1.0 × 10⁷ CFU/mL;攻毒后监测时间:14天;每子缸鱼数:50尾
2.5 采样
在口服给药后28(0 dpi)、30(2 dpi)、32(4 dpi)、36(8 dpi)、39(11 dpi)和43(15 dpi)天,从采样子缸中随机选取鱼作为独立生物学重复。采集血样用于血清分离和后续生化检测(n = 4)。采集头肾、脾脏和肠道部分组织,−80 °C保存用于RNA提取和RT-qPCR分析(n = 4)。用于细菌载量分析,无菌采集头肾、脾脏和肝胰腺部分组织(n = 4)。用于组织病理学评估,在感染后7天采集脾脏和肠道样本(n = 6),4%多聚甲醛固定。所有采样鱼在采样前用100 mg/L三卡因甲磺酸盐(MS-222)麻醉。
【数据】采样时间点:28(0 dpi)、30(2 dpi)、32(4 dpi)、36(8 dpi)、39(11 dpi)、43(15 dpi)天;血清样本n=4;RNA样本n=4;细菌载量样本n=4;组织病理样本n=6;组织病理采样时间:感染后7天;固定液:4%多聚甲醛;麻醉剂:100 mg/L MS-222;RNA保存温度:−80°C
2.6 血清生化分析
在指定时间点,血样室温凝固1 h。4 °C下3000 × g离心10 min分离血清,小心转移至无菌微量离心管中。血清总超氧化物歧化酶(SOD)、溶菌酶和补体C3水平使用以下商业检测试剂盒测定:总超氧化物歧化酶(SOD)检测试剂盒(羟胺法)(南京建成生物工程研究所);鱼补体C3 ELISA试剂盒(江苏酶免实业有限公司,盐城,中国);溶菌酶检测试剂盒(南京建成生物工程研究所)。所有检测按制造商说明书进行。
【数据】凝血条件:室温1h;离心条件:3000 × g,10 min,4°C;检测指标:总SOD、溶菌酶、补体C3;SOD试剂盒:羟胺法(南京建成);补体C3试剂盒:ELISA(江苏酶免);溶菌酶试剂盒:南京建成
2.7 RT-qPCR
使用RNAiso Plus试剂盒(TaKaRa,北京,中国)从头肾、脾脏和肠道样本中提取总RNA。每组每组织分析四个生物学重复。RNA质量通过1%琼脂糖凝胶电泳评估,每个样本1000 ng总RNA使用ABScript Neo RT Master Mix(ABclonal,北京,中国)逆转录为cDNA。所得cDNA稀释至终浓度100 ng/μL,使用QuantStudio™ 6 Flex实时PCR系统(Thermo Fisher Scientific)和BrightCycle Universal SYBR Green qPCR Mix(ABclonal,北京,中国)进行RT-qPCR。相对表达水平采用2−ΔΔCt方法计算,以18S rRNA为内参基因。RT-qPCR所用引物序列见表1。所有反应进行三次技术重复。
【数据】RNA提取试剂盒:RNAiso Plus;生物学重复:每组每组织4个;RNA上样量:1000 ng;琼脂糖凝胶浓度:1%;cDNA终浓度:100 ng/μL;PCR系统:QuantStudio™ 6 Flex;荧光染料:SYBR Green;计算方法:2−ΔΔCt;内参基因:18S rRNA;技术重复:3次
2.8 组织细菌载量
从每组无菌采集头肾、脾脏和肝胰腺样本(0.1 g),在PBS中匀浆并稀释。
【数据】组织样本量:0.1 g;稀释液:PBS
研究结果
3.1 实验饲料制备及抗嗜水气单胞菌感染保护效果
Western blot分析验证了CXCL20a在毕赤酵母中的成功表达,在新鲜和冻干Pp-C20a中均在约12 kDa处检测到特异性条带,证实冻干后重组蛋白的存在(图1A)。用于饲料添加的三种免疫调节多糖(β-葡聚糖、CS和APS)的示意图见图1B。体内实验流程包括4周口服给药期,随后进行嗜水气单胞菌攻毒和14天感染后监测及采样(图1C)。六个组之间观察到感染后存活率差异(图1D)。对照组和毕赤酵母/pPIC3.5K组最终存活率最低,分别仅为20%和22%。单独口服Pp-C20a将存活率提高至32%,较两个对照组均有明显改善。更重要的是,三个多糖联用组均优于单独Pp-C20a组。其中,Pp-C20a + β-葡聚糖组存活率最高(46%),其次为Pp-C20a + APS(40%)和Pp-C20a + CS(38%)。这些存活数据表明,饲料中添加Pp-C20a联合多糖,特别是β-葡聚糖,对草鱼抗嗜水气单胞菌感染具有显著保护作用。
【数据】CXCL20a分子量:约12 kDa;口服给药期:4周;感染后监测:14天;对照组存活率:20%;空载体组存活率:22%;Pp-C20a组存活率:32%;Pp-C20a + β-葡聚糖组存活率:46%;Pp-C20a + APS组存活率:40%;Pp-C20a + CS组存活率:38%
3.2 Pp-C20a联合多糖增强嗜水气单胞菌感染后血清免疫参数
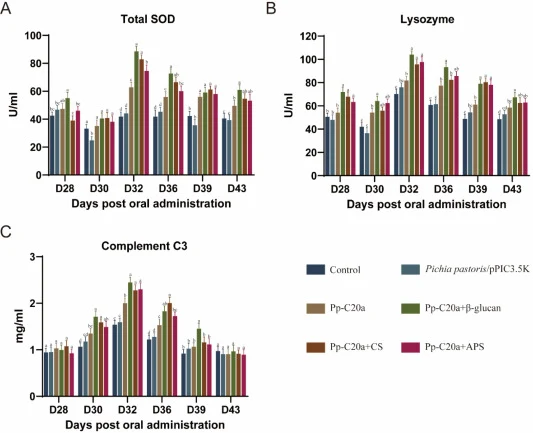
为评估存活率改善背后的系统性免疫和抗氧化相关应答,在感染后14天内分析了总SOD活性、溶菌酶活性和补体C3含量(图2)。如图2A所示,所有组的总SOD活性在细菌攻毒后逐渐升高,在D32(4 dpi)达到峰值后下降。所有处理组在D32(4 dpi)的总SOD活性均显著高于对照组(p < 0.05;图2A)。在D32(4 dpi)和D36(8 dpi),Pp-C20a + β-葡聚糖组在所有处理组中维持最高的总SOD活性水平(图2A)。溶菌酶活性在攻毒后逐步升高,在D32(4 dpi)达到最大值(图2B)。Pp-C20a + β-葡聚糖组在整个感染期表现出最显著的溶菌酶活性升高,Pp-C20a + APS和Pp-C20a + CS组在D32(4 dpi)、D36(8 dpi)和D39(11 dpi)的溶菌酶活性均显著高于对照组(p < 0.05;图2B)。对于补体C3含量,所有联合处理组在D32(4 dpi)均显著高于对照组和单独Pp-C20a组(p < 0.05;图2C)。总体而言,增强的血清免疫活性与观察到的存活趋势密切相关(图1)。
【数据】SOD峰值时间:D32(4 dpi);SOD显著差异时间点:D32(4 dpi),p < 0.05;溶菌酶峰值时间:D32(4 dpi);溶菌酶显著差异时间点:D32(4 dpi)、D36(8 dpi)、D39(11 dpi),p < 0.05;补体C3显著差异时间点:D32(4 dpi),p < 0.05
3.3 Pp-C20a与多糖同时给药上调组织中关键免疫相关基因
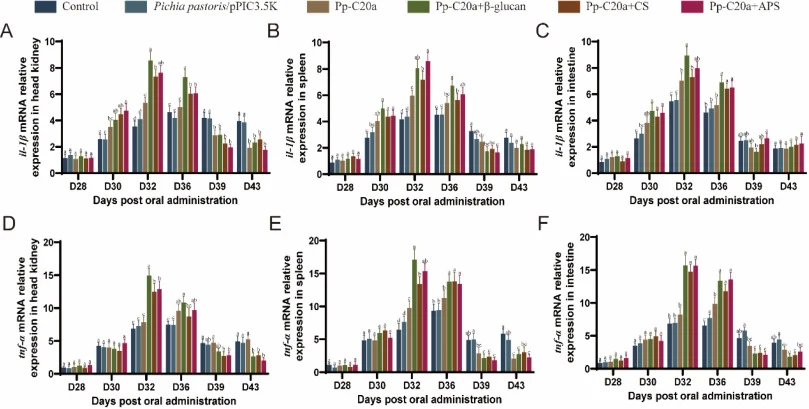
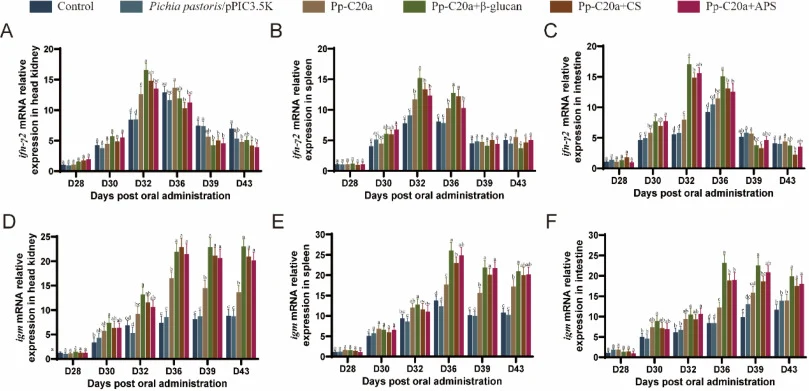
为评估免疫相关基因表达谱,我们检测了嗜水气单胞菌攻毒后头肾、脾脏和肠道中四个关键免疫相关基因(il-1β、tnf-α、ifn-γ2和igm)的mRNA表达(图3和图4)。促炎细胞因子(il-1β和tnf-α)被显著诱导,尤其是在Pp-C20a + β-葡聚糖组(图3)。联合给药组在D32(4 dpi)的表达显著高于单独Pp-C20a组,Pp-C20a + β-葡聚糖组在所有组织中通常表现出最强的上调(p < 0.05;图3)。ifn-γ2的表达在所有处理组中均升高,β-葡聚糖组观察到最高水平(图4A–C)。相比之下,三个多糖组之间igm表达无显著差异,尤其是在头肾和脾脏中(图4D–F)。总体而言,这些结果表明Pp-C20a与免疫刺激多糖联合给药增强了涉及多种免疫相关通路的基因表达,包括炎症反应(il-1β、tnf-α)以及细胞(ifn-γ2)和体液相关防御(igm)。
【数据】检测基因:il-1β、tnf-α、ifn-γ2、igm;检测组织:头肾、脾脏、肠道;显著差异时间点:D32(4 dpi),p < 0.05;ifn-γ2最高水平组:β-葡聚糖组;igm组间差异:不显著
3.4 Pp-C20a与多糖同时递送降低嗜水气单胞菌攻毒后组织细菌载量
为直接评估饲料干预的抗菌效果,我们在嗜水气单胞菌攻毒后多个时间点定量了头肾、脾脏和肝胰腺中的细菌载量(图5)。细菌载量分析显示,所有处理组头肾中的细菌计数均显著低于对照组(p < 0.05;图5)。重要的是,联合给药组比单独Pp-C20a组表现出更明显的降低,尤其是在脾脏中(图5)。此外,其中Pp-C20a + β-葡聚糖组在后期所有检测组织中表现出最低的细菌载量(图5)。Pp-C20a与免疫刺激多糖联合给药与主要免疫和代谢组织中细菌载量的降低相关。在所有组合中,Pp-C20a + β-葡聚糖表现出最强效和持久的组织细菌载量降低。
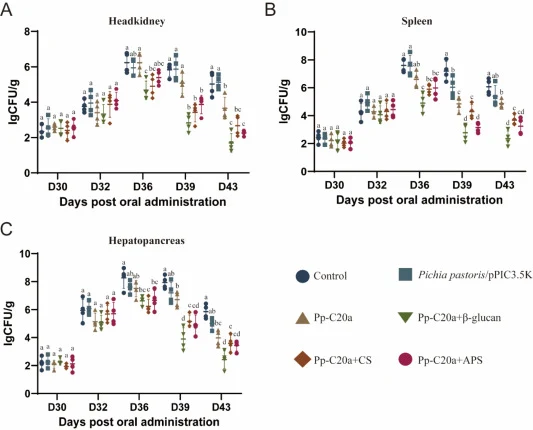
【数据】检测组织:头肾、脾脏、肝胰腺;头肾细菌载量显著降低:p < 0.05;后期最低细菌载量组:Pp-C20a + β-葡聚糖组
3.5 双重免疫刺激策略减轻嗜水气单胞菌感染诱导的组织损伤
为在组织学水平直观评估饲料干预的保护效果,我们检测了感染后7天的脾脏和肠道组织切片(图6)。在脾脏中(图6A),对照组和空载体组(毕赤酵母/pPIC3.5K)在嗜水气单胞菌感染后表现出严重的组织病理学变化,特征为广泛的细胞空泡化和明显的含铁血黄素沉积。在肠道中(图6B),嗜水气单胞菌攻毒后,对照组观察到严重的肠道损伤,包括上皮细胞广泛空泡化、黏膜下水肿和黏膜层结构解体。相比之下,单独Pp-C20a处理的鱼表现出部分组织损伤减轻,炎症浸润减少,组织结构改善。值得注意的是,联合给药组表现出明显改善的组织学特征。Pp-C20a + β-葡聚糖组显示近乎完整的组织结构,炎症细胞浸润极少,细胞形态保存良好。Pp-C20a + APS组也显示出明显的保护效果,但仍观察到轻度炎症反应。Pp-C20a + CS组表现出中度改善,残留病理改变。这些结果表明联合处理,特别是与β-葡聚糖联用,减轻了嗜水气单胞菌诱导的组织损伤。
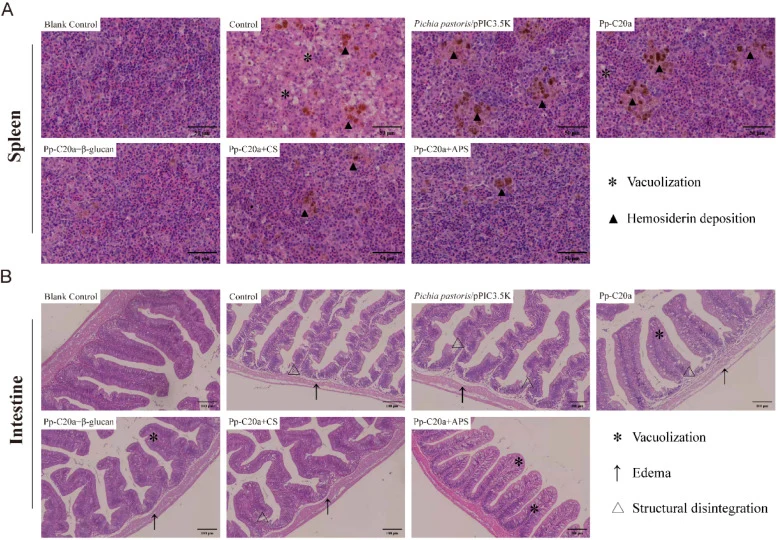
【数据】组织病理检测时间:感染后7天;检测组织:脾脏、肠道;对照组病理特征:细胞空泡化、含铁血黄素沉积、黏膜下水肿、黏膜层结构解体;Pp-C20a + β-葡聚糖组:近乎完整组织结构,炎症浸润极少;Pp-C20a + APS组:明显保护效果,轻度炎症;Pp-C20a + CS组:中度改善,残留病理改变
讨论与解读
前期工作中,我们成功在毕赤酵母中表达了CXCL20a并证明了其剂量依赖性抗病毒活性[19]。在此基础上,本研究首次评估了Pp-C20a对鱼类细菌感染的保护效果,并进一步探索了其与多种免疫调节多糖的联合效应。Pp-C20a与β-葡聚糖、CS或APS联合给药显著增强了宿主对嗜水气单胞菌的抵抗力,表明联合免疫增强剂给药可能提供更好的免疫保护效果。这些增强效应可能与多种免疫通路的潜在调节有关,从而有助于更强的系统性保护[25]。类似的联合策略已被报道可通过整合先天免疫激活和免疫调节信号来改善水产养殖物种的疾病抵抗力[8,26,27]。因此,我们的发现为开发水产养殖中的多组分口服免疫增强剂提供了理论和实践基础。鱼类中的抗菌肽和趋化因子,包括CXCL20a,已知具有直接抗菌活性和免疫调节的双重功能,如促进白细胞募集和激活[20,28]。然而,趋化因子通常易受蛋白水解降解,在体内特别是胃肠道中稳定性有限,这限制了其应用[28,29]。在本研究中……
编译者解读
该研究将重组蛋白与天然多糖联用,走了一条"生物制剂+天然免疫增强剂"的组合路线。选择毕赤酵母作为口服递送载体是务实之举——冻干酵母细胞既保护了CXCL20a免受胃肠降解,又省去了蛋白纯化成本。β-葡聚糖表现最优并非偶然,其与CXCL20a在免疫信号通路上可能存在协同。但研究止步于表型观察,未深入解析两者协同的分子机制,且仅在单一鱼种中验证。从合成生物学视角看,未来可考虑将多糖受体识别通路与趋化因子信号进行工程化耦合设计。
参考来源
期刊:Fish & Shellfish Immunology, 2026
DOI: 10.1016/j.fsi.2026.111473
DOI: 10.1016/j.fsi.2026.111473