来源:Novel R2R3-MYB transcription factor CsMYB39 influences epigallocatechin gallate biosynthesis in tea plant (Camellia sinensis) by regulating CsSCPL11-IA gene expression(Industrial Crops and Products)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
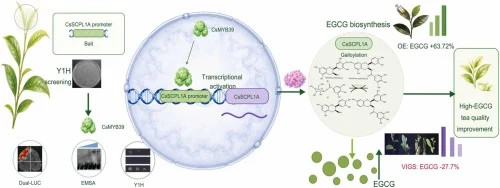
表没食子儿茶素没食子酸酯(EGCG)是茶树中生物活性最强的没食子酰化儿茶素,其合成受转录因子精密调控。本研究以EGCG合成关键酶基因CsSCPL11-IA的启动子为诱饵,利用酵母单杂交技术筛选并鉴定了一个全新的R2R3-MYB转录因子CsMYB39。该基因定位于细胞核,瞬时过表达使茶树叶片总儿茶素含量提高0.28倍、EGCG提高0.64倍;病毒诱导基因沉默后儿茶素和EGCG含量分别下降79%和71%。双荧光素酶报告、凝胶迁移和酵母单杂交实验证实CsMYB39直接结合CsSCPL11-IA启动子特定区域并强激活其转录。该研究为茶树分子育种改良品质提供了新基因资源。
研究背景
茶树(Camellia sinensis (L.) O. Kuntze)是中国重要的多年生经济作物,兼具文化、经济和健康价值。儿茶素是茶叶中主要的类黄酮成分,占干重的12–24%、占茶多酚总量的70%以上,是决定茶叶独特风味与健康功效的核心物质基础。EGCG是茶树中含量最丰富、生物活性最强的没食子酰化儿茶素,具有抗氧化、抗炎、抗肿瘤和心血管保护等生理功能,因而成为茶叶品质改良的重要靶标。
儿茶素的生物合成是一个涉及多途径、多步骤、多酶协同催化的复杂过程,依次通过莽草酸途径、苯丙烷途径和黄酮途径完成,形成高度精确的代谢调控网络。莽草酸途径是连接植物初生代谢与次生代谢的关键桥梁,为儿茶素合成提供苯丙氨酸等芳香族氨基酸前体。苯丙烷途径由苯丙氨酸解氨酶、肉桂酸4-羟化酶等酶催化。转录因子在该网络中扮演精密调控角色,其中R2R3-MYB家族是植物类黄酮代谢调控的重要成员。然而,调控EGCG合成的转录因子及其分子机制仍有待深入解析。
研究方法
2.1 植物材料
选用三年生茶树品种'乌牛早'(具有高遗传转化效率)和'福鼎大白'(广泛栽培的茶树品种)幼苗作为所有涉及茶树实验的材料。这些品种来源于贵州大学位于贵阳(中国贵州省)的茶园(26°24′ N, 106°11′ E,平均海拔1132 m)。此外,本氏烟草(Nicotiana benthamiana)幼苗叶片用于双荧光素酶表达和亚细胞定位实验。所有幼苗均在贵州大学茶学院温室中培养,培养条件受控(白天16 h为25 ℃,夜间8 h为18 ℃)。新鲜样品在采收后直接分析,或在液氮中速冻后于−80 °C保存备用。
【数据】材料:三年生'乌牛早'和'福鼎大白'茶树幼苗、本氏烟草幼苗;产地坐标:26°24′ N, 106°11′ E;海拔:1132 m;培养温度:白天25 ℃/夜间18 ℃;光周期:16 h光照/8 h黑暗;保存温度:−80 °C
2.2 候选基因筛选
本研究所用cDNA文库由GenScript Biotech Corporation定制构建。起始材料包括'福鼎大白'茶树的芽、幼叶、成熟叶和根。构建流程遵循GenScript标准cDNA文库构建方案:提取总RNA,通过Oligo(dT)亲和层析纯化mRNA,经反转录合成双链cDNA,连接合适接头后重组入质粒载体,最后转化建立质粒cDNA文库。采用Y1H技术筛选候选基因。将获得的重组质粒pAbAi-CsSCPL11-IA线性化后转化Y1HGold酵母感受态细胞,涂布于缺尿嘧啶的合成定义培养基(SD/−Ura)上。菌落生长表明线性化诱饵质粒已成功导入宿主细胞且对宿主无毒。将空 prey 质粒pGADT7转化入含诱饵质粒的感受态细胞,分别涂布于SD/−Leu和SD/−Leu/AbA平板。结果显示SD/−Leu/AbA平板(含100 ng/mL AbA)上无菌落生长,表明AbA最低抑制浓度为100 ng/mL。诱饵质粒未激活报告基因AbAr表达,宿主细胞对AbA无抗性,故无法在这些平板上生长。随后采用100 ng/mL AbA进行筛选实验。从SD/−Ura平板上挑取单菌落,在液体SD/−Ura培养基中振荡培养至OD600达0.6–0.8。用无菌水洗涤细胞,重悬于0.1 M TE/LiAc溶液(Solarbio, 北京, 中国)制备酵母感受态细胞。将感受态细胞与文库质粒、载体DNA和LiAc/PEG混合,30 °C孵育,42 °C热激,离心收集,重悬于YPD Plus培养基(酵母提取物/蛋白胨/葡萄糖)。将细胞悬液梯度稀释后涂布于SD/−Leu和SD/−Leu/AbA平板。30 °C培养3天后计数菌落,计算筛选文库大小。挑取SD/−Leu/AbA平板上的阳性菌落,进行多轮划线纯化验证其对AbA的抗性。将验证的阳性克隆接种于SD/−Leu/AbA液体培养基中过夜培养。使用酵母质粒小提试剂盒提取质粒。以通用引物T7和3AD进行PCR扩增,总反应体积20 μL,20个循环。扩增产物经琼脂糖凝胶电泳分析。显示阳性条带的样品送测序,测序结果经BLAST分析(补充表1)鉴定目标基因。
【数据】培养基:SD/−Ura、SD/−Leu、SD/−Leu/AbA、YPD Plus;AbA浓度:100 ng/mL;OD600:0.6–0.8;TE/LiAc浓度:0.1 M;热激温度:42 °C;培养温度:30 °C;培养时间:3天;PCR反应体积:20 μL;循环数:20
2.3 CsMYB39亚细胞定位与异源过表达
亚细胞定位实验:首先从茶树叶片cDNA中克隆CsMYB39全长序列,插入GFP表达载体pCAMBIA2301,获得融合构建体35S-CsMYB39-GFP,随后转化根癌农杆菌GV3101菌株,空载体pCAMBIA2301-GFP作为阴性对照。p2300–35S-NLS-mCherry作为核定位标记。将农杆菌悬浮液缓慢注射入本氏烟草叶片。注射农杆菌悬浮液48 h后进行亚细胞定位观察。将注射的烟草叶片切片,按照Zeiss LSM900(ZEISS Group)激光共聚焦显微镜操作说明观察荧光信号(激发光源:GFP 488 nm,mCherry/RFP 560–610 nm;强度:5–20%;采集带宽:GFP 500–550 nm,mCherry/RFP 580–650 nm;增益:500–700)。
烟草(Nicotiana tabacum L.)异源过表达采用农杆菌介导的叶盘法。烟草种子用75%乙醇和0.1%升汞表面消毒,播种于MS固体培养基(含3%蔗糖、0.8%琼脂,pH 5.8)。幼苗在25 ± 2 °C、16 h光照/8 h黑暗光周期下培养,随后移栽至灭菌营养土(蛭石:泥炭土 = 1:1)。将目标基因编码区克隆入植物双元表达载体pCAMBIA2301。序列验证后,采用冻融法将重组质粒转化根癌农杆菌GV3101感受态细胞。阳性克隆在YEB液体培养基(补充利福平和卡那霉素)中28 °C振荡培养至OD₆₀₀达0.6–0.8。离心收集菌体,重悬于含100 μmol/L乙酰丁香酮的MS液体培养基中至OD₆₀₀为0.5,室温活化2–4 h。取4–6周龄烟草健康叶片表面消毒,切成约1 cm直径叶盘。叶盘浸入菌悬液10–15 min,用无菌滤纸吸干,远轴面朝下置于共培养培养基(MS + 乙酰丁香酮)。22–25 °C黑暗培养2–3天。共培养后将叶盘转移至筛选再生培养基(MS + 2.0 mg/L 6-BA + 0.2 mg/L NAA + 100 mg/L潮霉素 + 100 mg/L特美汀,pH 5.8)。外植体每2–3周继代一次以诱导抗性不定芽。当芽长至2–3 cm时切下转移至生根培养基(MS + 0.2 mg/L NAA + 100 mg/L潮霉素)。生根后移栽至营养土,收获T₀种子。T₀再生植株基因组DNA用载体特异性引物进行PCR鉴定。从确认的T₀株系获得阳性T₁种子,在含潮霉素的MS培养基上筛选,随后收集T₂种子。所有T₂植株均表现潮霉素抗性的株系鉴定为T₂转基因株系,用于后续基因功能分析。所有转基因材料在人工气候室中25 ± 2 °C、16 h光照/8 h黑暗光周期下培养。
【数据】载体:pCAMBIA2301、35S-CsMYB39-GFP、p2300–35S-NLS-mCherry;农杆菌菌株:GV3101;共聚焦参数:GFP激发488 nm,mCherry/RFP激发560–610 nm,强度5–20%,采集带宽GFP 500–550 nm/mCherry 580–650 nm,增益500–700;观察时间:注射后48 h;烟草种子消毒:75%乙醇+0.1%升汞;MS培养基:3%蔗糖、0.8%琼脂、pH 5.8;培养温度:25 ± 2 °C;光周期:16 h光照/8 h黑暗;营养土配比:蛭石:泥炭土=1:1;YEB培养温度:28 °C;OD₆₀₀:0.6–0.8(培养)/0.5(重悬);乙酰丁香酮浓度:100 μmol/L;活化时间:2–4 h;叶盘直径:约1 cm;浸染时间:10–15 min;共培养温度:22–25 °C;共培养时间:2–3天;再生培养基:MS + 2.0 mg/L 6-BA + 0.2 mg/L NAA + 100 mg/L Hygromycin + 100 mg/L Timentin,pH 5.8;继代周期:2–3周;生根培养基:MS + 0.2 mg/L NAA + 100 mg/L Hygromycin
2.4 茶树VIGS实验
基因沉默实验以'乌牛早'茶树品种的CsMYB39为靶标进行VIGS。首先将适合VIGS的CsMYB39片段插入TRV2病毒载体构建pTRV2-CsMYB39载体(长沙科文生物技术有限公司)。随后将pTRV1、pTRV2和pTRV2-CsMYB39分别转化农杆菌GV3101化学感受态细胞(Bio-Transduction Lab, 武汉, 中国)。
【数据】茶树品种:'乌牛早';载体:pTRV2-CsMYB39、pTRV1、pTRV2;农杆菌菌株:GV3101;载体构建公司:长沙科文生物技术有限公司;感受态细胞来源:Bio-Transduction Lab, 武汉, 中国
研究结果
3.1 茶树EGCG生物合成候选基因的筛选与鉴定
为筛选和鉴定调控EGCG合成的关键转录因子,我们利用Y1H技术成功分离并鉴定了CsMYB39基因。CsSCPL11-IA是EGCG合成的关键酶,以其启动子为诱饵筛选调控EGCG生物合成的转录因子。从'福鼎大白'品种基因组DNA中成功扩增CsSCPL11-IA启动子序列,构建诱饵质粒pAbAi-Pro-CsSCPL11-IA并经测序验证(图1A)。线性化后,诱饵质粒整合入Y1HGold酵母菌株,测定抑制诱饵菌株生长的最低AbA浓度为100 ng/mL(图1B)。随后将茶树cDNA文库转化入诱饵报告菌株,在含100 ng/mL AbA的SD/−Leu培养基上筛选阳性克隆(图1C)。PCR验证结果显示所有阳性克隆均含特异性插入片段(图1D)。Sanger测序和序列比对分析表明,一个阳性克隆编码的蛋白具有完整MYB DNA结合结构域。结构分析鉴定该基因为R2R3-MYB转录因子家族的新成员,命名为CsMYB39。对MYB39基因进行了生物信息学分析(补充图2)。
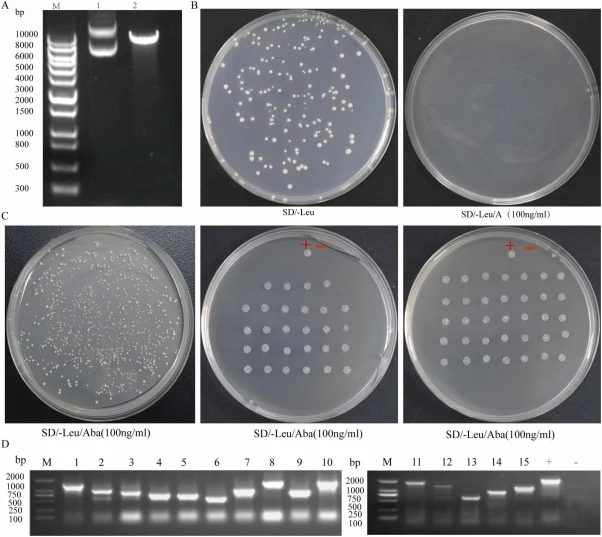
【数据】诱饵质粒:pAbAi-Pro-CsSCPL11-IA;酵母菌株:Y1HGold;AbA最低抑制浓度:100 ng/mL;筛选培养基:SD/−Leu + 100 ng/mL AbA;测序方法:Sanger测序;基因长度:1739 bp;编码氨基酸:328 aa
3.2 CsMYB39亚细胞定位、烟草异源过表达及其对类黄酮代谢的影响
CsMYB39基因全长1739 bp,编码328个氨基酸的蛋白。基于CELLO v2.5在线软件预测,CsMYB39定位于细胞核。为验证该预测,将融合表达载体pCAMBIA2301–35S-CsMYB39-GFP和空载体pCAMBIA2301–35S-GFP分别转化本氏烟草叶片。激光共聚焦显微镜观察显示,空载体的绿色荧光信号分布于细胞膜和细胞质,而CsMYB39-GFP融合蛋白的绿色荧光信号特异性定位于细胞核(图2A)。该结果证实CsMYB39是核定位蛋白,与转录因子执行DNA结合和转录调控功能的结构特征一致。
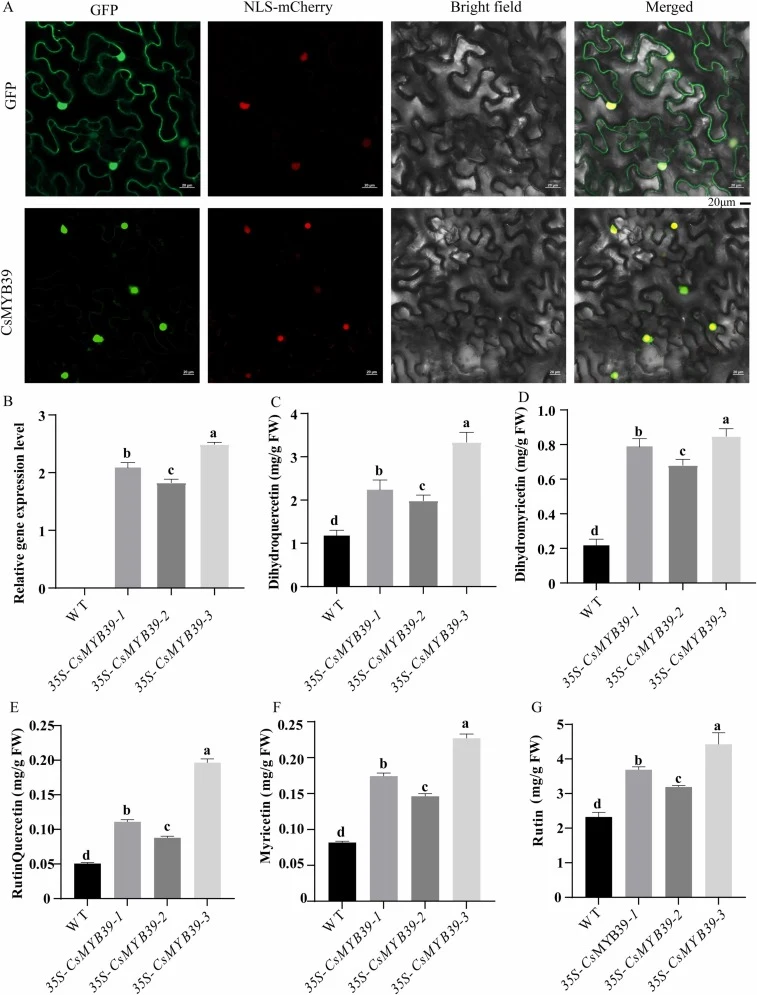
分析显示,三个代表性过表达株系(35S-CsMYB39–1、35S-CsMYB39–2、35S-CsMYB39–3)中CsMYB39转录水平显著高于野生型(WT)(P < 0.01)(图2B)。表型观察显示转基因烟草株系与WT在株高、叶形态和整体生长方面无显著差异(补充图3),表明CsMYB39过表达不影响烟草正常生长发育。由于烟草中儿茶素含量极低,通过测定类黄酮前体含量研究CsMYB39对类黄酮代谢的调控作用。结果显示,CsMYB39过表达显著促进烟草叶片中槲皮素、杨梅素、芦丁、二氢槲皮素和二氢杨梅素的积累(P < 0.05)。过表达株系中二氢槲皮素、二氢杨梅素和芦丁含量较WT分别增加25.3–38.6%、30.5–42.1%和28.7–40.3%(图2C–G)。这些结果表明CsMYB39能在异源植物中激活类黄酮生物合成途径并促进类黄酮前体积累,显示其在类黄酮代谢中具有保守的调控功能。
【数据】基因长度:1739 bp;编码氨基酸:328 aa;亚细胞定位:细胞核;过表达株系:35S-CsMYB39–1/2/3;CsMYB39表达量:显著高于WT(P < 0.01);二氢槲皮素增加:25.3–38.6%;二氢杨梅素增加:30.5–42.1%;芦丁增加:28.7–40.3%;显著性:P < 0.05
3.3 CsMYB39调控茶树EGCG生物合成
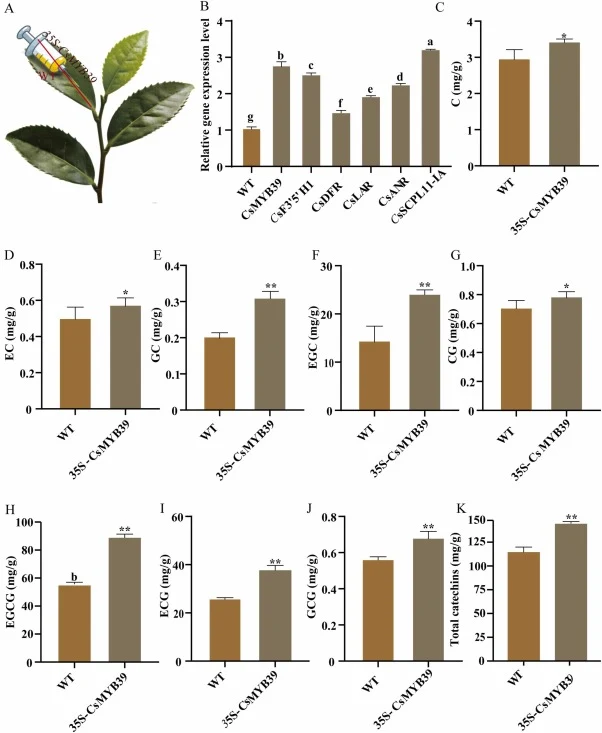
为研究CsMYB39在茶树儿茶素生物合成中的调控功能,利用农杆菌介导的瞬时转化系统在茶树叶片中过表达CsMYB39(图3A),系统测定基因表达水平和儿茶素含量。RT-qPCR结果显示,35S-CsMYB39过表达株系中CsMYB39相对表达水平较WT上调约2.8倍(图3B),证实瞬时转化系统能高效实现CsMYB39高水平过表达。进一步测定各儿茶素单体和总儿茶素含量(图3C–K)发现,与WT相比,35S-CsMYB39过表达株系中8种儿茶素单体含量均显著增加(P < 0.05)。具体而言,儿茶素(C)含量增加0.21倍,表儿茶素(EC)增加0.16倍,没食子儿茶素(GC)增加0.5倍,表没食子儿茶素(EGC)增加0.57倍,儿茶素没食子酸酯(CG)增加0.08倍,EGCG增加0.64倍,表儿茶素没食子酸酯(ECG)增加0.61倍,没食子儿茶素没食子酸酯(GCG)增加0.28倍。总儿茶素含量增加0.28倍(图3K)。在所有检测的儿茶素组分中,EGCG增幅最高,而C和CG增幅相对较低,表明CsMYB39对不同儿茶素组分具有差异化调控效应。总之,CsMYB39过表达能全面激活茶树儿茶素生物合成途径,显著促进各儿茶素单体和总儿茶素的积累。
为从反向遗传学角度进一步验证CsMYB39功能,采用病毒诱导基因沉默(VIGS)技术利用pTRV2载体沉默茶树中CsMYB39表达,系统检测下游结构基因表达和儿茶素含量变化(图4)。RT-qPCR结果显示(图4A),与pTRV2空载体对照相比,pTRV2-CsMYB39沉默株系中类黄酮生物合成途径多个关键结构基因(CsF3′5′H1、CsDFR、CsLAR、CsANR和CsSCPL11-IA)表达显著下调。儿茶素含量分析(图4B–K)显示,pTRV2-CsMYB39沉默株系总儿茶素含量较对照平均下降79%,各儿茶素单体均表现一致下降趋势:C下降35%,EC下降22%,GC下降19%,EGC下降55%,EGCG下降71%,ECG下降21.4%,GCG下降26.4%,CG下降50%。其中EGCG降幅最大,与过表达实验中观察到的差异化调控趋势一致(图3)。这些结果表明VIGS介导的CsMYB39沉默不仅在转录水平抑制下游结构基因表达,还在代谢水平导致各儿茶素单体和总儿茶素含量普遍下降。综合以上结果,CsMYB39被确认为茶树儿茶素生物合成途径的关键正调控转录因子。
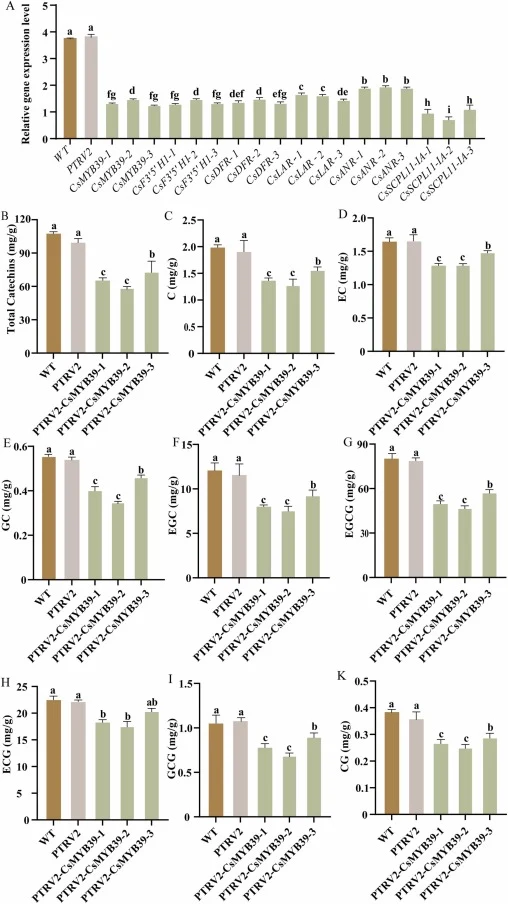
【数据】CsMYB39过表达倍数:约2.8倍;C增加:0.21倍;EC增加:0.16倍;GC增加:0.5倍;EGC增加:0.57倍;CG增加:0.08倍;EGCG增加:0.64倍;ECG增加:0.61倍;GCG增加:0.28倍;总儿茶素增加:0.28倍;显著性:P < 0.05;沉默后总儿茶素下降:79%;C下降:35%;EC下降:22%;GC下降:19%;EGC下降:55%;EGCG下降:71%;ECG下降:21.4%;GCG下降:26.4%;CG下降:50%;下调基因:CsF3′5′H1、CsDFR、CsLAR、CsANR、CsSCPL11-IA
3.4 CsMYB39介导EGCG生物合成关键基因调控的分子机制
为研究CsMYB39与儿茶素生物合成关键结构基因的关联(图5A),本研究选取不同发育阶段的茶树新梢(包括嫩梢)进行分析。
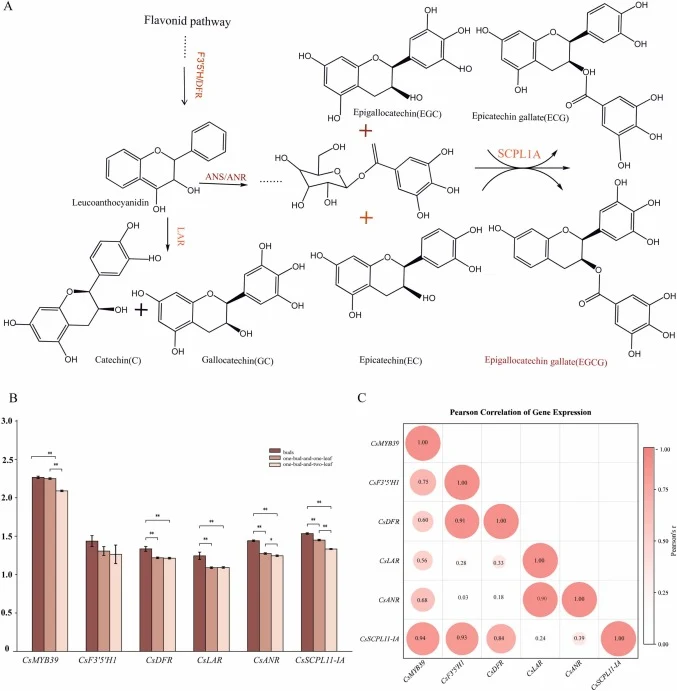
【数据】分析材料:不同发育阶段茶树新梢;目标基因:儿茶素生物合成关键结构基因
讨论与解读
儿茶素生物合成是决定茶叶品质的核心代谢途径,其精准转录调控对茶叶风味和功能成分的形成至关重要。EGCG作为茶树中最重要的没食子酰化儿茶素,其调控机制长期是茶叶品质研究的焦点。本研究以EGCG合成关键酶基因CsSCPL11-IA的启动子区域为诱饵,筛选并鉴定了一个全新的R2R3-MYB转录因子CsMYB39,通过系统的体外和体内实验阐明了该新转录因子调控EGCG合成的功能角色及潜在机制。
Y1H技术是筛选与目标基因启动子互作转录因子的有效方法,已广泛应用于植物次生代谢调控基因的筛选。本研究成功鉴定CsMYB39与CsSCPL11-IA启动子的特异性互作,CsMYB39是R2R3-MYB转录因子家族的新成员。生物信息学分析显示CsMYB39具有典型MYB保守结构域且定位于细胞核,与转录因子的典型结构特征一致。
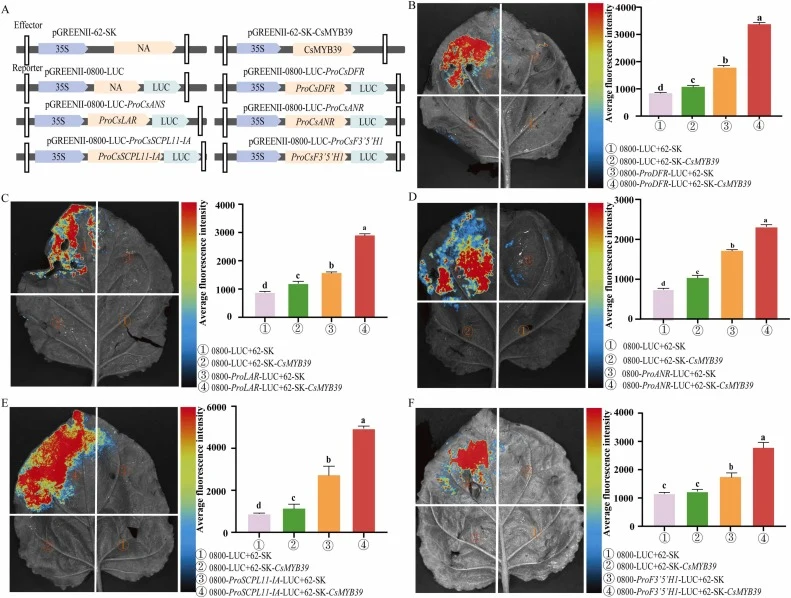
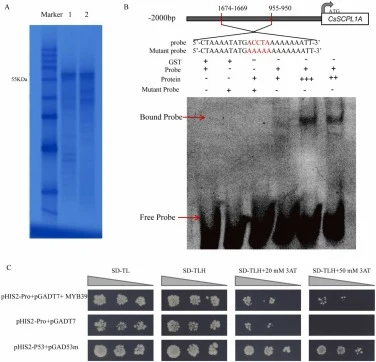
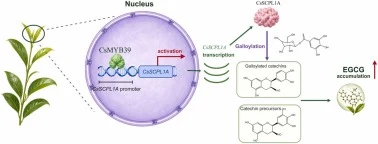
编译者解读
该研究采用"启动子诱饵-Y1H筛选-瞬转/沉默正反向验证-双荧光素酶/EMSA互作确认"的经典转录因子功能解析路线,逻辑链条完整。CsMYB39的发现为茶树EGCG定向调控提供了新的上游调控节点——通过操纵单个MYB转录因子即可实现EGCG含量0.64倍的提升或71%的下降,调控幅度可观。从合成生物学应用角度看,该模块(CsMYB39–CsSCPL11-IA)可作为茶树代谢工程的候选调控元件。局限在于:瞬转和VIGS均属瞬时调控,稳定转基因茶树的遗传效应及田间表现尚待验证;CsMYB39是否直接调控其他结构基因、是否存在翻译后修饰调控,文中未涉及。此外,过表达对C和CG的调控幅度较小,提示该转录因子对不同儿茶素分支的调控存在偏好性,其分子基础值得进一步探究。
参考来源
期刊:Industrial Crops and Products, 2026
DOI: 10.1016/j.indcrop.2026.124251
DOI: 10.1016/j.indcrop.2026.124251